
 English
单细胞全基因组测序解码:伯基特淋巴瘤的趋同演化与"多驱动悖论"
一句话看懂:伯基特淋巴瘤(BL)身上有一个长期未解的悖论——它需要 MYC 易位加上一大批协作突变才能成瘤,却偏偏主要发生在孩子身上,而儿童正常细胞的"年龄相关突变"又极少。荷兰 Princess Máxima 儿童肿瘤中心团队用单细胞全基因组测序(scWGS),对 6 位 BL 患者的 250 个高质量正常/恶性 B 细胞基因组逐细胞测序,并整合 21 份 bulk WGS 与 157 个健康人 B 细胞,第一次把 BL 的驱动突变顺序与时间"摊开"来看。核心结论有三点:① 恶性细胞的突变负荷可达同龄正常 B 细胞的 7.42 倍,突变率在肿瘤发生中被"踩下了油门";② 肿瘤演化不是随机漂变,而是"趋同演化"——不同谱系屡屡独立击中同一批基因与染色体区域;③ 时钟样突变过程能帮我们给肿瘤"纪年":BL 的潜伏期平均长达 5.1 年,且亚克隆驱动突变几乎都在 MRCA 出现后 1–1.5 年内获得。
一、一个萦绕几十年的"悖论"
伯基特淋巴瘤(Burkitt lymphoma, BL)被誉为肿瘤研究史上的"罗塞塔石碑":它是人类第一个被发现与病毒(EBV)相关的肿瘤,第一个被确认携带特征性 MYC 染色体易位的肿瘤,也是第一个被化疗治愈的恶性肿瘤。
BL 的分子标志是 t(8;14) 易位,把 MYC 癌基因置于免疫球蛋白增强子的控制之下,导致 MYC 持续高表达。但问题来了——单靠 MYC 失调并不足以成瘤。BL 还需要一批"协作突变",涉及 B 细胞受体信号(ID3、FOXO1、TCF3)、生存与增殖(MYC、CCND3、TP53),以及 SWI/SNF 染色质重塑(SMARCA4、ARID1A)等多个通路。
矛盾就在这里:BL 主要发生在儿童身上,而儿童正常细胞的"年龄相关突变"本就很少。多个驱动突变,怎么能在如此短的发育时间里累积完成?
更棘手的是,传统 bulk 测序把活检组织里不同类型、不同亚克隆的细胞"搅碎"在一起,信号被平均掉,很难还原出"哪个突变先发生、发生在哪个亚克隆里"。
破局的关键,是把测序精度下探到"单个细胞"。
二、研究设计:250 个单细胞基因组,一层层"叠"出全景
研究团队对 6 位 BL 患者(4–17 岁,中位 13 岁;5 男 1 女)的配对正常 B 细胞与恶性 B 细胞分别做了单细胞全基因组测序。
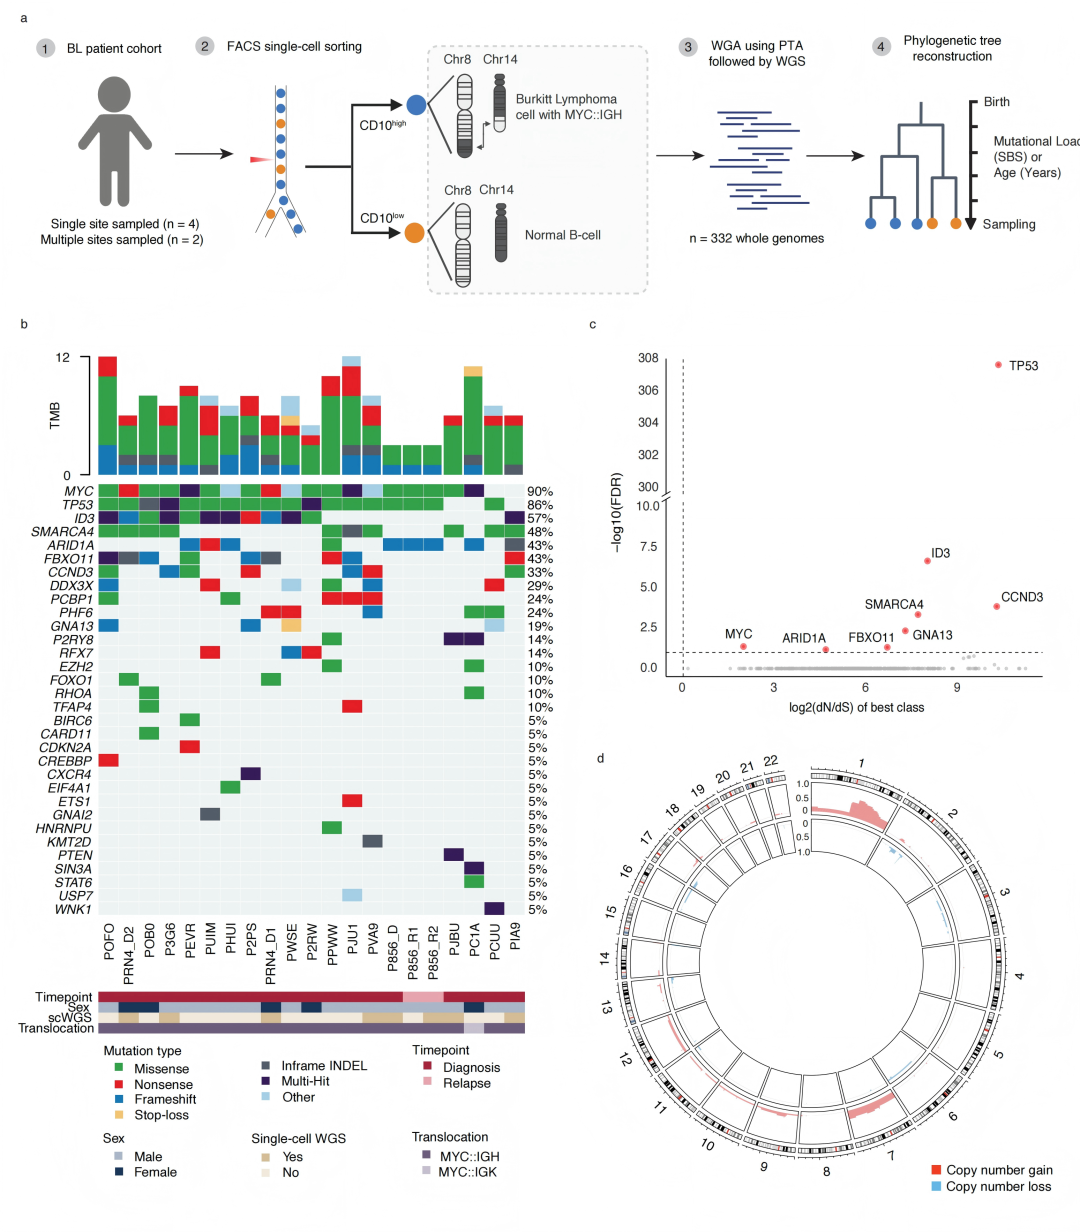
▲ 图1|BL 队列与研究设计。a,实验设计总览与 MYC::IGH(t(8;14))易位示意图:从 BL 队列出发,经 FACS 分选单个细胞,再对每个细胞做 PTA(primary template-directed amplification)全基因组扩增后测序,最终重建系统发育树。b,21 份 bulk WGS 样本(来自 18 位患者)的 SBS/INDEL 驱动突变全景图(oncoplot),下方标注性别、采样时间点、MYC 易位伙伴基因及是否纳入单细胞队列。c,dN/dS 散点图,展示受正选择的基因(FDR < 10%)。d,环状图(circos)展示拷贝数变异,chr1q 增益最为常见。
几个关键的技术选择值得注意:
- 绕过"体外扩增"难题:原发性恶性 B 细胞极难在体外扩增。团队改用 PTA 直接对分选单细胞做生化全基因组扩增,无需预先克隆扩增。 - 规模与质控:332 个单细胞中,82 个因覆盖度不足或等位基因失衡被剔除,最终得到 250 个高质量单细胞基因组;平均每人 42 个全基因组(16–58 个),平均测序深度 11.7X,83% 基因组覆盖度 ≥ 5X。 - 队列的代表性:为避免偏倚,研究者额外分析了 21 份 bulk WGS 样本(来自 18 位 BL 患者),并引入 Machado 等已发表的 157 个健康人克隆扩增 B 细胞基因组作为基线。 - 突变总量:过滤后共鉴定出 283,400 个常染色体 SBS 和 51,164 个 INDEL。
一个有意思的细节:两位患者有多部位累及(一人诊断时取两个部位,一人有诊断-复发配对样本),这为后面研究"空间演化"与"播散"埋下伏笔。
每位样本的驱动基因数为 3–10 个(均值 6.3),MYC、TP53、ID3 突变最频繁;dN/dS 分析显示,所有显著正选择的基因(TP53、ID3、CCND3、MYC、SMARCA4、ARID1A、FBXO11、GNA13)也都落在最常突变的基因之列。CNV 方面,最常见的是 chr1q 增益(14/21 样本),其次为 chr7q(9/21)、chr7p(4/21)、chr1p(3/21)。这说明单细胞队列确实代表了 BL 的整体突变图景。
三、"单克隆长主干":把 6 位患者的演化史画成树
有了逐细胞的基因组,研究者用共享的 SBS 重建了每位患者的系统发育树:内部枝代表被多个后代共享的古老突变,末端枝代表某个细胞独有的新突变,分叉点(coalescence)则标记出推断的祖先细胞。
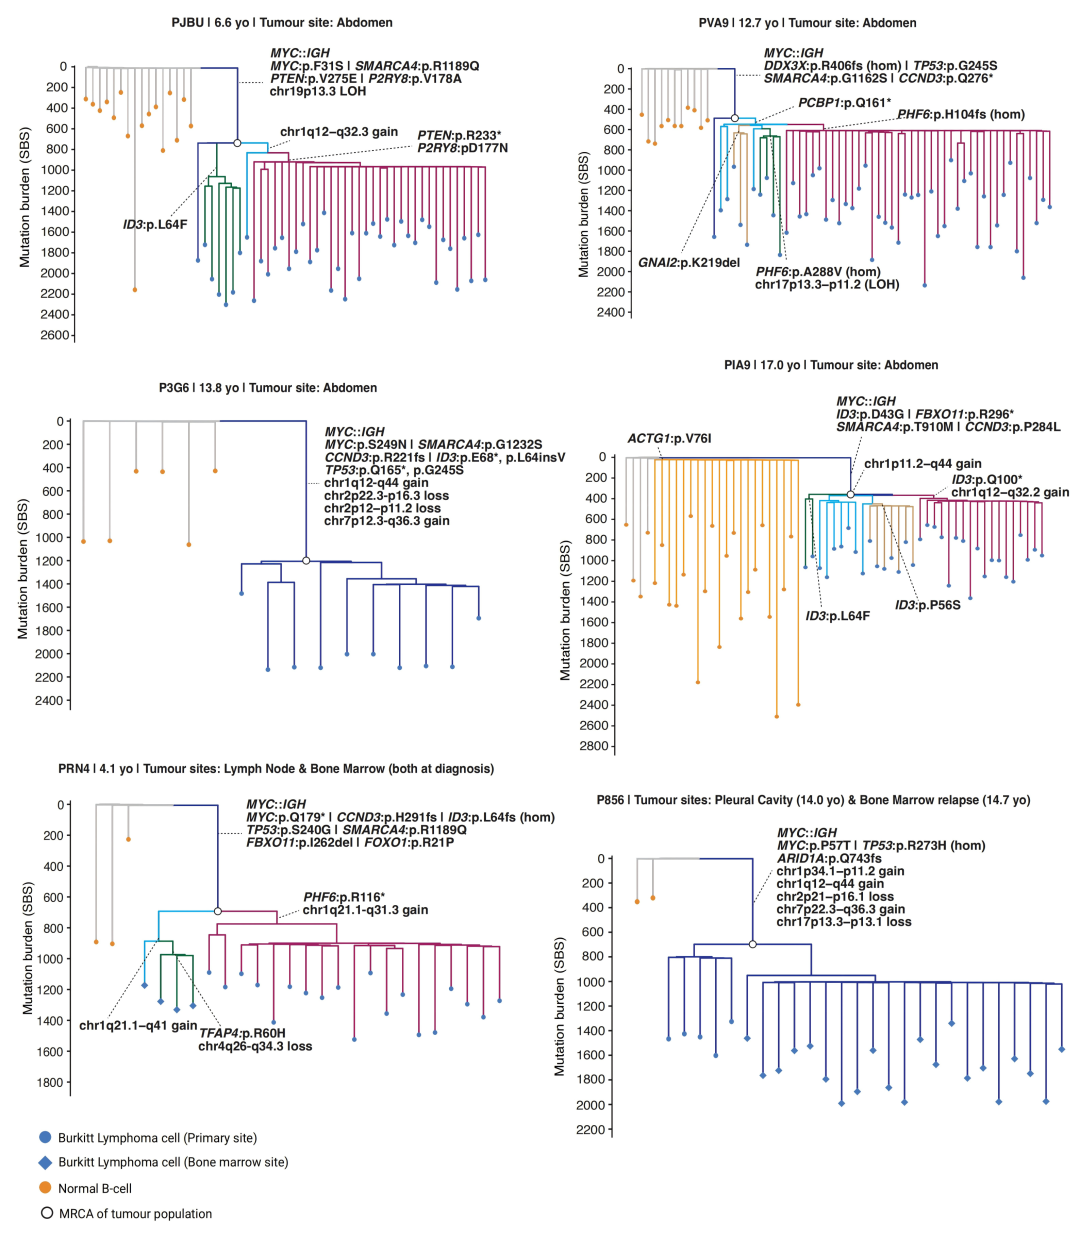
▲ 图2|BL 患者的系统发育树。每棵树展示测序单细胞之间共享体细胞 SBS 的模式,枝长与突变数成正比。私有枝为单细胞独有突变,共享枝为两个及以上细胞共有的突变;分叉点(coalescence)对应发生对称自我更新分裂的祖先细胞,标记着下游谱系的最远共同祖先(MRCA)。树底端点代表单个测序细胞:蓝色为 BL 细胞、橙色为正常 B 细胞;肿瘤细胞进一步按取材部位区分(圆形=原发灶,菱形=骨髓)。每位患者全部肿瘤细胞的 MRCA 以黑色圆圈标出;含不同驱动突变与拷贝数改变的枝以彩色高亮。
树里浮现出三条清晰的规律:
B 细胞谱系"家族树"的密集分叉
:所有树在根部附近都有一簇密集的分叉点,反映 B 细胞前体在早期淋巴生成阶段的快速扩张——这意味着任意两个正常 B 细胞的最远共同祖先(MRCA)要追溯到发育早期。正常 B 细胞的树随后呈"梳齿状"分支。 唯一的例外
:患者 PIA9 的正常 B 细胞出现了克隆扩增的迹象,并且该扩增群体独有一个 ACTG1 错义突变——这是一个此前被报道在健康供者正常 B 细胞中受正选择的基因。 肿瘤"单克隆 + 长主干"
:BL 细胞聚成单一支系,有一条明显的长主干,主干基部就是 MRCA。BCR 重排分析显示所有肿瘤细胞共享同一套免疫球蛋白重轻链重排(单克隆),而正常 B 细胞保持多克隆——这明确指向:BL 的 MRCA 是一个 B 细胞。值得注意的是,5/6 的肿瘤用到了 IGHV3 基因家族。
换句话说,BL 的"起点"是一次 B 细胞在经历 BCR 重排之后获得了 MYC::IGH 易位,随后经历一段快速扩张;而真正的"暴发式增长",却是由 MRCA 之后出现的亚克隆突变推动的。
四、第一个关键结论:突变率被"踩下了油门"
那么,恶性细胞到底积累了多少突变?研究者把每位患者的正常 B 细胞按 SBS9(体细胞高频突变相关)分为 SBS9⁺ 与 SBS9⁻,并用健康供者初始 B 细胞训练的线性混合效应模型,估算出"按年龄期望的突变负荷",进而得到观测/期望比(O/E ratio)。
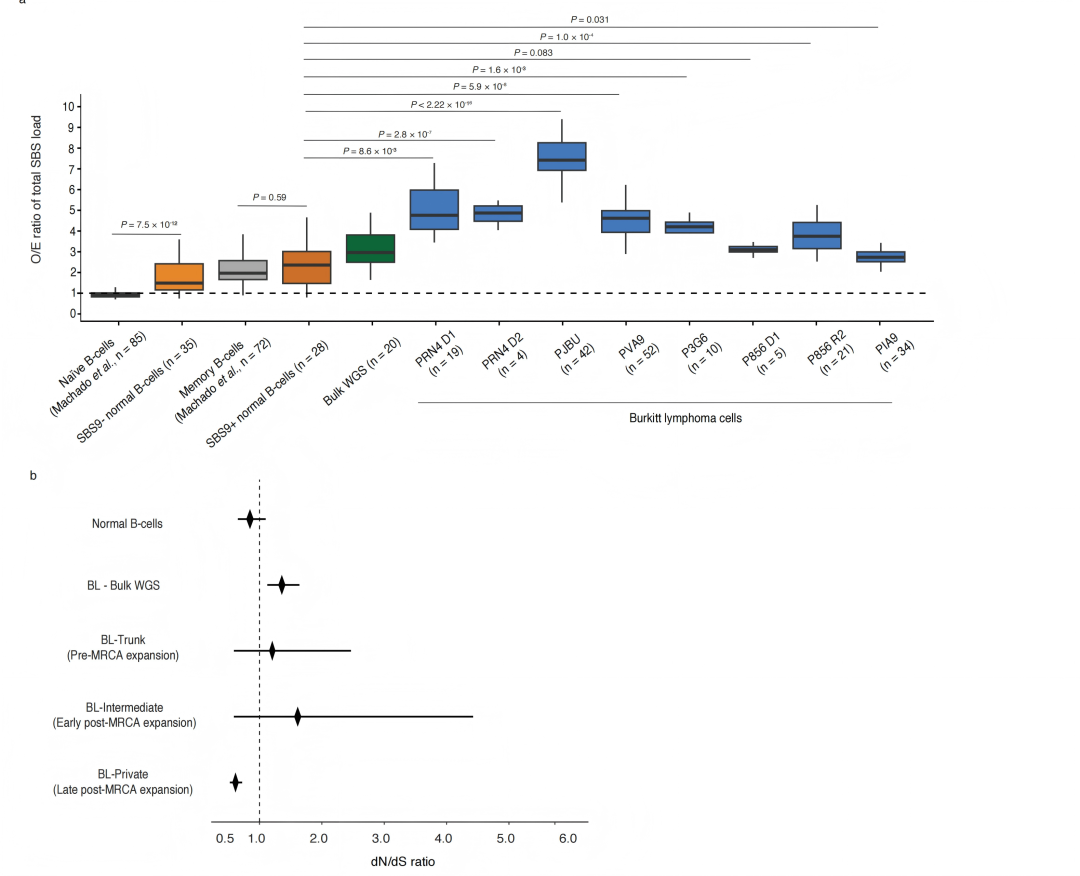
▲ 图3|BL 细胞的体细胞突变负荷与选择动态。a,单细胞与 bulk B 细胞群体的 SBS 负荷 O/E 比值:健康供者的初始与记忆 B 细胞(灰)、BL 患者的 SBS9⁺/SBS9⁻ B 细胞(橙)、BL bulk WGS 的克隆突变(绿)、BL 肿瘤细胞(蓝);虚线为期望负荷(O/E = 1)。b,正常 B 细胞与 BL 不同演化阶段(BL-Trunk 主干、BL-Intermediate 中间、BL-Private 私有)的 dN/dS 比值,菱形为最大似然估计,误差棒为 95% CI,虚线为中性(dN/dS = 1)。
结果十分醒目:
- SBS9⁺ 正常 B 细胞与健康人记忆 B 细胞突变负荷相近(中位 O/E 2.36 vs 1.97,P = 0.59); - bulk 肿瘤的克隆突变中位 O/E 为 2.94,与 SBS9⁺ 正常 B 细胞相当; - 但单个恶性细胞的突变负荷显著更高——最高可达基线的 7.42 倍。
这说明:在肿瘤演化过程中,突变速率发生了"加速",而这在此前基于 bulk 测序的研究中被平均掉了(那些研究曾报告 BL 与正常 B 淋巴细胞突变负荷相当)。
(关于选择压力如何"转向",我们在第七节展开。)
五、趋同演化:不同谱系"殊途同归",反复击中同一批基因
这是全文最核心的发现。研究者发现,BL 的瘤内异质性(ITH)并非随机扩散,而是被趋同演化(convergent evolution)塑形——不同肿瘤谱系会独立地获得相似的遗传改变,要么落在同一驱动基因,要么落在同一染色体区域。
具体证据层层递进:
- PJBU:PTEN 与 P2RY8 在主干和一条中间分支上被独立突变,而这条中间分支后来催生了最大的亚克隆; - PVA9:PHF6 在两个独立的中间分支上被反复改变; - PIA9:三个不同的 ID3 突变在中间谱系中独立出现,各自驱动平行的亚克隆扩张。
研究者进一步用基于读长(read-based)的定相(phasing)验证这些趋同突变是否发生在不同等位基因(trans)上:
- PJBU 中,主干 P2RY8 p.V178A 与亚克隆 p.D177N 定相在 trans; - PIA9 中,主干 ID3 p.D43G 与 p.P56S、p.L64F 均定相在 trans。
"亚克隆突变落在与克隆突变不同的等位基因上"——这条证据强烈提示:这些基因承受着"双等位基因失活"的选择压力。
趋同演化同样出现在拷贝数层面:PIA9 检测到两个独立的 chr1 增益(chr1p11.2–q44 与 chr1q12–q32.2);PRN4 则出现"同区异位"的模式——骨髓里是 chr1q21.1–q41 增益,淋巴结里是 chr1q21.1–q31.3 增益。
一句话总结:肿瘤演化不是纯粹随机的漂变,而是被收敛的选择压力反复"牵引"——反复瞄准同一批基因组区域与通路,推动平行的亚克隆轨迹。
而"空间演化"的证据同样精彩:在 PRN4 中,一个祖先克隆发生分裂——一支迁移到骨髓(携带 TFAP4 亚克隆突变),另一支留在淋巴结(携带 PHF6 突变)。这说明 ITH 不仅存在于"部位之间",也存在于"部位之内"。
六、Bulk 测序的"盲区":主干能看清,私有突变几乎全丢
研究者用单细胞树作为"金标准",去检验 bulk 测序的召回率,结果很能说明问题:
- 主干突变(MRCA 之前):98.4%(5447/5538) 能在 bulk 中检出; - 中间突变(MRCA 之后、私有分支之前):74.4%(1916/2576) 能检出; - 私有分支突变(单个肿瘤细胞特有):仅 0.5%(460/86714) 能检出。
这既证明了单细胞 WGS 的高召回率,也直观揭示了 bulk 测序在捕捉亚克隆与私有变异上的根本局限——大量"私有突变"在 bulk 里几乎完全"隐身"。
再看一位特殊患者的完整故事:P856 是队列中唯一复发者。bulk 数据显示,骨髓肿瘤细胞共有的 305 个突变中有 28 个(9.2%)在诊断时胸腔样本里以低 VAF(中位 0.08)可检出——说明复发相关的骨髓谱系在初诊时就已作为次要亚克隆存在。同时,一部分胸腔特有突变也能在骨髓中检出(7/102,中位 VAF 0.07),提示两个部位之间存在低频迁移或播散。
耐人寻味的是,P856 的诊断与复发样本里都没有找到已知的亚克隆驱动事件——其演化呈一条"单一优势主干谱系",肿瘤扩张可能由非遗传/微环境因素驱动。而 P856 独特的分子特征,是通过错义突变 + chr17p13.3-13.1 局灶缺失导致的双等位(纯合)TP53 R273H 失活——与"复发 BL 常伴双等位 TP53 失活与复杂核型"的既往报道一致。
对比之下,队列中其他未复发的患者都只携带杂合的主干 TP53 突变——唯一的例外是 PVA9,因其 chr17p13.3-11.2 局灶 LOH 而出现了亚克隆纯合 G245S,但仅局限在一个次要克隆中。
这个对比极具临床含义:决定 TP53 缺陷克隆能否取得克隆优势、从而增加复发风险的,可能是"突变发生的时机",而不是"突变本身是否存在"。
七、选择压力会"转向":从正选择到纯化选择
把 dN/dS 分析铺到演化的不同阶段(图3b),一条"选择压力转向"的曲线清晰浮现:
- 正常 B 细胞:dN/dS = 0.85(95% CI 0.65–1.10),接近中性; - BL 主干(MRCA 前扩张):1.40(95% CI 0.82–2.39); - BL 中间(MRCA 后早期扩张):1.95(95% CI 0.72–5.27); - bulk WGS(主要是主干+中间突变):1.36(95% CI 1.12–1.64); - BL 私有分支(晚期):0.62(95% CI 0.52–0.72)——转向纯化(负)选择。
这条曲线讲了一个完整的故事:早中期,肿瘤在"正选择"下拼命累积驱动突变;一旦主要驱动到手、优势克隆站稳脚跟,进一步的非同义突变反而更容易损害适应度,于是被"纯化选择"剔除。
研究者还专门检查了这种晚期约束是否特异针对"必需基因":他们从 5 个 BL 细胞系的 DepMap CRISPR 依赖数据中构建了一个 2,099 个基因的 BL 特异性必需基因集,结果发现必需基因并不比对照被更强地约束(dN/dS = 0.63 vs 0.42,P = 0.86)。也就是说,晚期的负选择是"全基因组层面"的广泛约束,而非特异地保护必需基因。
八、突变过程:没有新的"凶手",只有被踩下的油门
既然突变负荷大增,那"增加的负荷"从何而来?研究者把突变特征(mutational signature)的贡献量化到系统树的每一条分支上。
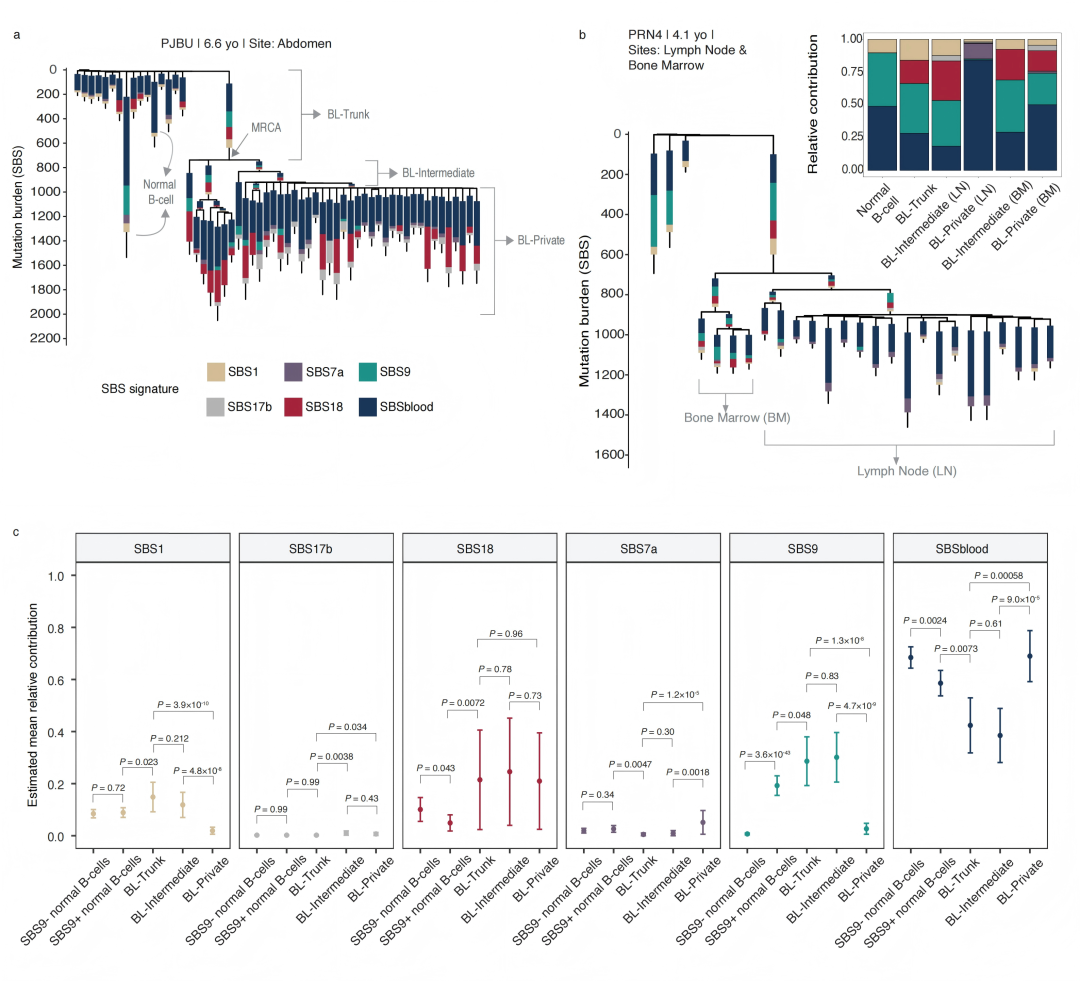
▲ 图4|BL 肿瘤发生过程中的突变过程。a,示例患者 PJBU 的系统树,标注各分支中 SBS1、SBS7a、SBS9、SBS17b、SBS18、SBSblood 的估计比例;分支分为四类:MYC::IGH 阴性(正常 B 细胞)、BL-Trunk(MRCA 前)、BL-Intermediate(MRCA 后早期)、BL-Private(克隆扩张后单个细胞)。b,患者 PRN4 的系统树与各分支类别的 SBS 特征相对贡献,并叠加肿瘤细胞的取材解剖部位信息。c,各签名在不同组别中的边际平均相对贡献(beta 广义线性混合模型,患者为随机截距)。
分析提取出 6 种 SBS 特征:SBS1、SBSblood(时钟样内源过程)、SBS7a(UV 样)、SBS9(体细胞高频突变)、SBS17b 与 SBS18(活性氧 ROS 相关)。
最重要的阴性结果:BL 细胞中没有发现任何"新"的突变特征——也就是说,增加的突变负荷并非来自新凶手,而是已有过程被"加速"。
空间上的差异同样引人注目:
- PRN4 淋巴结与骨髓肿瘤共享的主干以 SBS1、SBSblood、SBS9 为主;但在私有分支上,淋巴结亚克隆的 SBS7a 贡献高达 14.1%,骨髓却只有 1.6%。淋巴结位于头颈区(常暴露于 UV),但 UV 对深层组织的穿透有限,直接照射淋巴结并不现实;类似"UV 样"特征也曾出现在无 UV 暴露的儿童 B-ALL 中,机制仍待阐明。 - ROS 相关的 SBS18 也表现出"部位特异":P856 中 SBS18 特异地出现在胸腔分支,骨髓复发分支缺失;PRN4 中则正好相反,SBS18 出现在骨髓分支。
这提示:局部微环境或组织特异的暴露,可能在塑造空间上分离的 BL 细胞的突变景观。
时间上的动态则揭示了"谁在开油门":SBS9 在主干与中间分支持续活跃,但在晚期私有分支骤降;SBSblood 恰好相反,在晚期私有分支升高——两者此消彼长。
但有趣的是,驱动突变本身主要不是 SBS9 制造的:在 92 个已识别的驱动 SBS 中,只有 6 个有高概率(>70%)归属 SBS9,而大多数(41/92)更可能归属时钟样的 SBS1 与 SBSblood。
九、给肿瘤"计时":潜伏期平均 5.1 年
要把系统树的分支长度换算成"年",得先找出真正"恒速累积"的突变过程。研究者把本队列与 Machado 数据集的正常 B 细胞合并,检验各签名与供者年龄的相关性:
- SBS1(1.3 SBS/年)与 SBSblood(8.9 SBS/年) 均与时间线性相关,是可靠的"时钟"; - SBS18 无年龄依赖累积(且 13% 的正常 B 细胞中检测不到);SBS17b、SBS9、SBS7a 虽呈正相关,但在一部分细胞中缺失(分别 28%、16%、8%)——提示这些过程更随机或阵发。
于是研究者只用 SBS1 与 SBSblood 校准树的时间轴。
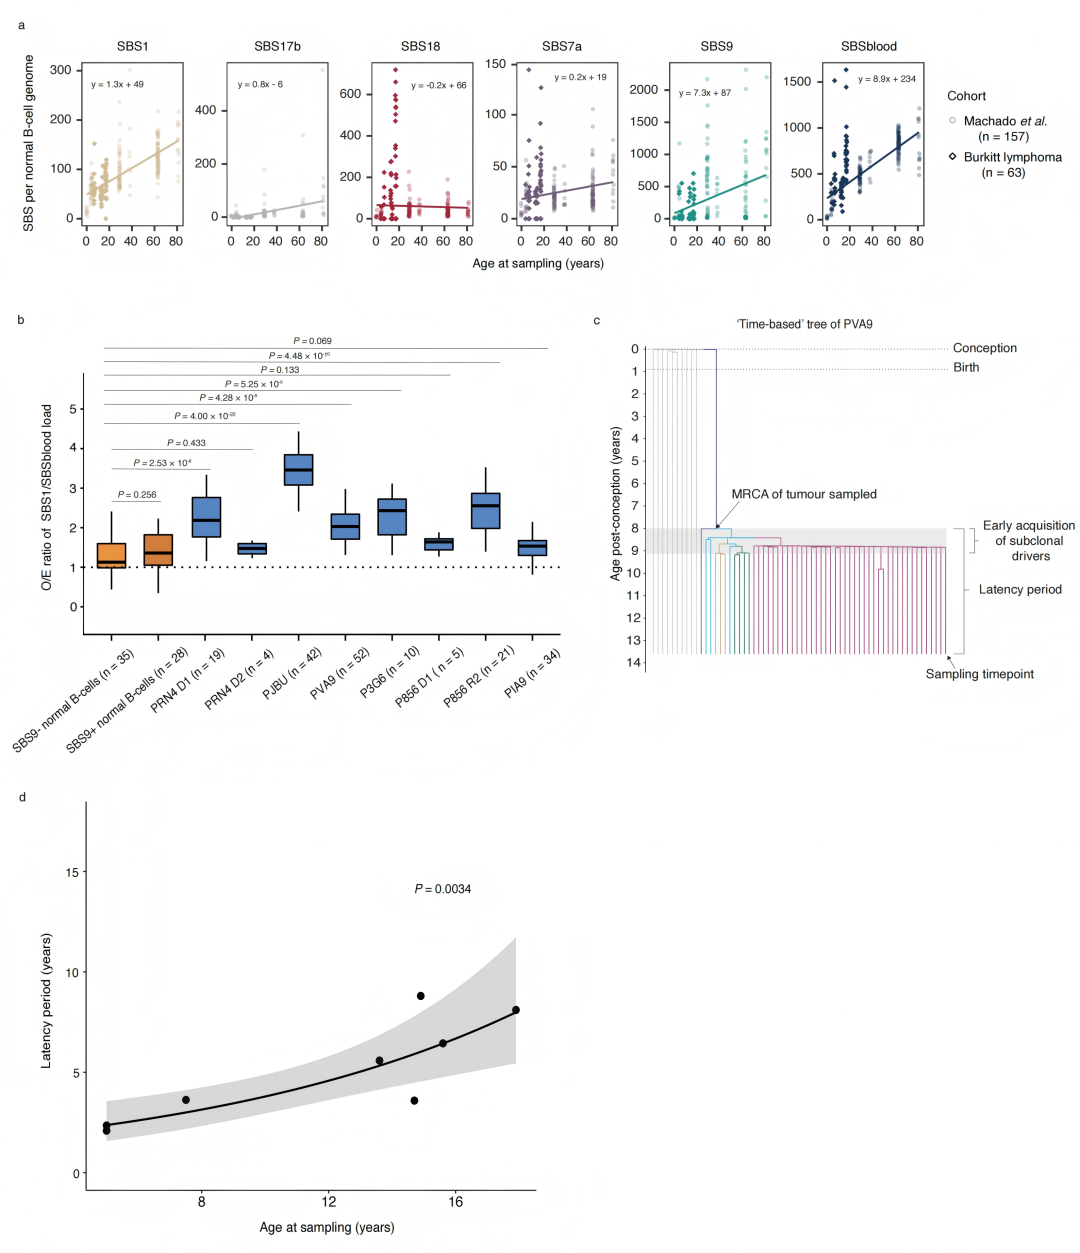
▲ 图5|BL 克隆扩张与播散的时间。a,单个正常 B 细胞基因组的 SBS 突变负荷随供者年龄的变化,按突变特征分开;圆点为 Machado 等数据集细胞,菱形为本队列细胞。b,正常与恶性 B 细胞中 SBS1/SBSblood 负荷的 O/E 比值(橙=SBS9⁺/SBS9⁻ B 细胞,蓝=肿瘤细胞),虚线为期望负荷(O/E = 1)。c,患者 PVA9 的"时间树"(以受孕后天数计),每个获得额外亚克隆驱动突变的支系以不同颜色标出,以展示肿瘤内部独立的演化轨迹。d,潜伏期(MRCA 出现到诊断的时间,年)随采样年龄的变化,实线为对数线性回归拟合,阴影为 95% CI。
有意思的是,限定到 SBS1/SBSblood 后,SBS9⁺ 与 SBS9⁻ 两种正常 B 细胞的 O/E 比值相近——说明这两个时钟过程在两类细胞中以相近速率累积。但恶性细胞的 O/E 比值更高(PRN4 骨髓、P856 诊断、PIA9 除外),意味着这些原本稳定的时钟过程在转化后被"加速"——可能源于细胞周转加快,或 DNA 修复效率下降。
此外,研究者还做了转录链偏倚分析:晚期私有突变中未见变化,提示转录偶联修复通路在肿瘤晚期并未受损。
基于这些,研究者用 rtreefit 包推断了各分叉点的时间,得到几条关键结论:
- 潜伏期平均 5.1 年(范围 2.1–8.8 年)——尽管 BL 临床极具侵袭性,其"从 MRCA 到诊断"的幕后酝酿期却长达数年; - 年轻患者潜伏期更短(趋势与 BCR::ABL1 驱动的慢性髓性白血病类似); - P856 的复发起源可追溯到初诊前约 6 年; - 亚克隆驱动突变几乎都在 MRCA 出现后 1–1.5 年内获得——说明 ITH 是在肿瘤早期就"一次性"形成的,而非随肿瘤生长缓慢累积。
十、这项研究意味着什么?
突变率"加速"是 BL 的关键一环
:恶性细胞的突变负荷可达同龄正常 B 细胞的 7.42 倍——这是单细胞精度才能揭示的差别,bulk 测序会把它平均掉。 趋同演化是 ITH 的"底层逻辑"
:不同亚克隆会独立地击中同一批基因(PTEN、P2RY8、PHF6、ID3)和同一批染色体区域(chr1),并且多落在不同的等位基因上。这说明肿瘤演化被收敛的选择压力牵引,而非随机漂变。 选择压力会"换挡"
:早中期正选择累积驱动,晚期转为纯化选择,且这种约束是全基因组层面的广泛现象。 治疗策略的启示
:靶向"维持肿瘤增殖的亚克隆通路"的联合策略,可能比只针对 MYC 激活等早期事件更有效——后者至今未显示出临床疗效。但由于这些通路只在部分肿瘤细胞中活跃,单打独斗难以带来持久获益,必须放进联合方案中(联合标准治疗或其他靶向药)。 时间,可能比突变本身更重要
:TP53 双等位失活发生在主干(P856,唯一复发者)还是亚克隆(PVA9,未复发),结局截然不同。这提示我们关注驱动突变的"时机",或许比单纯检测"有没有突变"更有价值。 方法学的启发
:单细胞 WGS + 单克隆树重建 + 突变特征/时间校准这一套组合拳,把"肿瘤演化史"从推断变成可读。它对所有"驱动突变多、却发生得早"的儿童肿瘤,都具有范式意义。
十一、写在最后
BL 被称作癌症研究的"罗塞塔石碑",而这项研究又一次印证了它作为"范式模型"的价值。
它告诉我们:一个"突变率被加速、被趋同选择反复塑造"的肿瘤,其致命性并不来自某一个突变,而来自整个演化过程的"节奏与方向"。 从"看清一个突变"到"读懂一整段演化史",单细胞全基因组测序正在把癌症研究推向更精细的尺度。
参考文献:Steemers AS, van Roosmalen MJ, Hagelaar R, et al. Single-cell whole-genome sequencing reveals convergent evolution in Burkitt lymphoma. Nature Communications (2026). DOI: 10.1038/s41467-026-74121-w