
 English
文献解读|Science(47.3):单细胞多组学关联阿尔茨海默病中的 3D 基因组与转录组改变
✦ +
+
论文ID
原名:Single-cell multiomics connects 3D genome and transcriptome alterations in Alzheimer’s disease
译名:单细胞多组学关联阿尔茨海默病中的 3D 基因组与转录组改变
期刊:Science
影响因子:47.3
发表时间:2026.07.23
DOI号:10.1126/science.adz1652
背 景
阿尔茨海默病(AD)是最常见的痴呆病因。既往单细胞研究已经描绘了不同脑细胞中的转录和表观遗传改变,但多数工作集中于基因表达或染色质可及性,仍难回答这些异常为何在特定细胞类型中出现。基因活性不仅取决于 DNA 序列及化学修饰,也受到染色质在细胞核内三维折叠方式的调控。A/B 区室、拓扑结构域和染色质环等 3D 基因组结构一旦发生改变,可能重新组织增强子与启动子的接触关系,进而影响细胞身份和疾病相关基因程序。
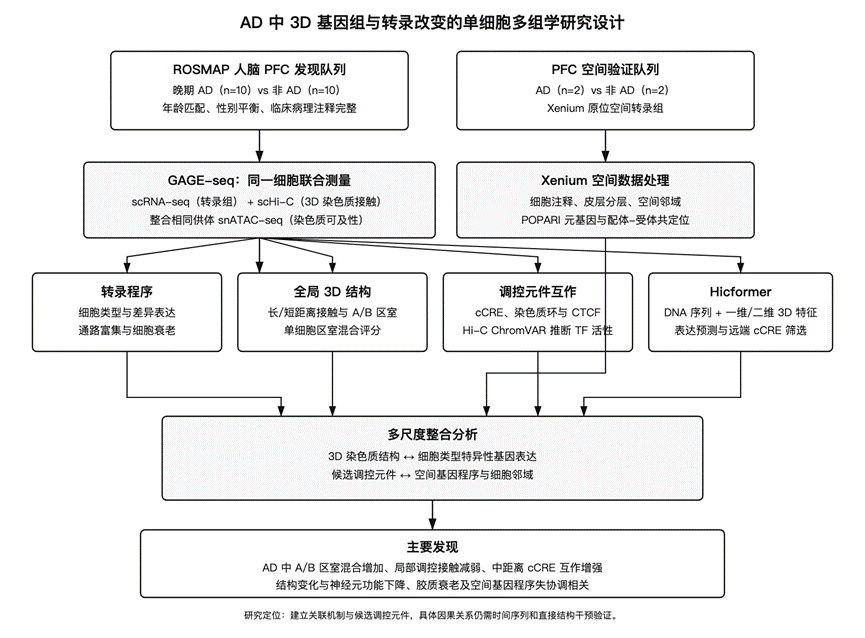
本研究利用基因组结构与基因表达联合测序(GAGE-seq),在同一单细胞中同时获得 RNA 表达与 3D 染色质接触信息,并整合配对的单核染色质可及性测序(snATAC-seq)和 Xenium 空间转录组。研究团队进一步构建深度学习模型 Hicformer,将 DNA 序列和多尺度 3D 基因组特征共同用于基因表达预测,试图从“哪些基因发生改变”推进到“哪些空间结构可能参与调控这些改变”,最后再将分子层面的变化放回完整脑组织的空间环境中。
实验设计
结 果
01
GAGE-seq 在同一细胞中联合解析转录组与 3D 基因组
研究首先验证 GAGE-seq 是否能够在人脑样本中稳定地同时捕获 RNA 和 3D 染色质信息。作者对 10 例晚期 AD 与 10 例非 AD 个体的 PFC 进行 GAGE-seq,并整合配对 snATAC-seq;另以 2 例 AD 和 2 例非 AD 样本进行 Xenium 空间分析。临床信息显示,两组年龄和性别匹配,但 AD 组具有更高的神经原纤维缠结负担、Braak 分期和痴呆诊断比例,并伴随更低的整体认知水平(图1A)。严格质控后共保留 23,825 个细胞核,每个细胞平均检测到 22,704 个 RNA 分子、2477 个表达基因和约 28.9 万个染色质接触,说明两种模态均达到后续单细胞分析所需的覆盖度。依据 RNA 表达和标志基因,研究识别出兴奋性神经元、抑制性神经元、星形胶质细胞、少突胶质细胞、小胶质细胞等 8 类主要细胞及 22 个亚型,降维可视化(UMAP)显示不同神经元与胶质亚群具有清晰边界(图1B)。更关键的是,作者仅使用 scHi-C 接触数据进行 Fast-Higashi 降维,也能够恢复主要神经元和胶质细胞群,其分群与 RNA 定义的细胞身份高度一致(图1C)。这说明 3D 染色质接触本身携带稳定的细胞类型信息,也证明同一细胞内联合测量可以为后续连接基因组结构与表达变化提供可靠基础。
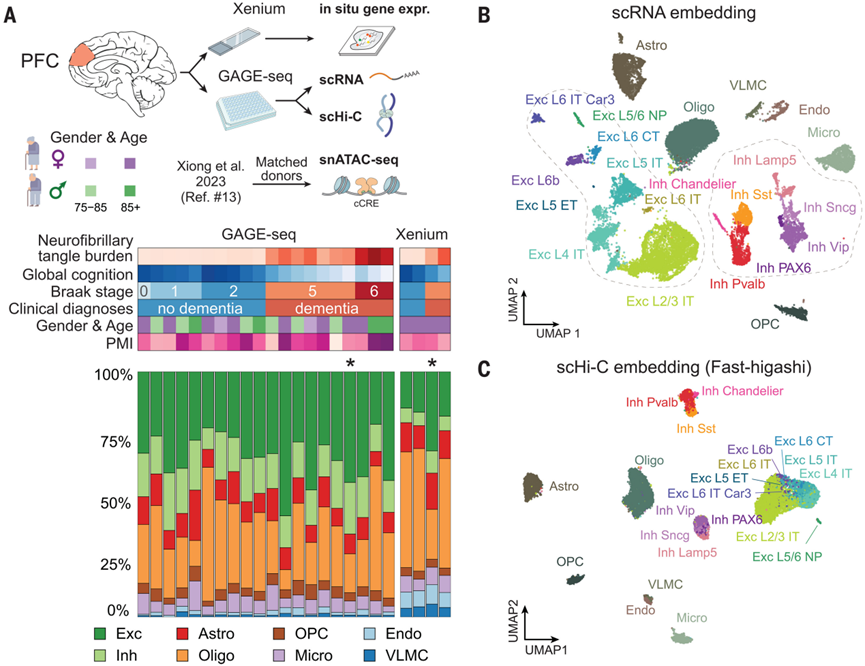
图 1. GAGE-seq 实现 AD 人脑转录组与 3D 基因组的高质量联合测量。
(A) 展示供体组成、临床病理特征及 GAGE-seq、snATAC-seq 和 Xenium 的整体设计;(B) 依据 RNA 表达注释 23,825 个细胞核的主要细胞类型和亚型;(C) 仅使用 3D 染色质接触进行降维,验证其能够独立区分主要脑细胞类型。
02
AD 呈现神经元功能下降与小胶质细胞衰老程序增强
在确认数据质量后,研究团队首先从转录组层面描绘 AD 的细胞类型特异性变化。将 GAGE-seq 的差异表达结果与独立单细胞研究比较后,6 类主要细胞的变化方向和幅度总体一致,相关系数为 0.433 至 0.902;其中兴奋性和抑制性神经元以下调基因为主,而胶质细胞的差异表达基因(DEG)数量相对较少(图2A)。通路分析进一步显示,AD 兴奋性神经元虽然增强部分线粒体和信使 RNA(mRNA)代谢程序,但脂质代谢、氧化磷酸化、突触信号和神经递质相关功能整体下降,提示代偿性应激与神经功能衰退并存;星形胶质细胞则增强氧化应激、脂质储存和程序性死亡程序,同时抑制血管生成。钙调神经磷酸酶/活化 T 细胞核因子(NFAT)信号在多类细胞中普遍降低,也与记忆、突触可塑性和胶质炎症调控受损相符(图2B)。随后,作者聚焦细胞衰老,发现小胶质细胞具有最高的经典衰老评分和最大比例的衰老样细胞(图2C)。AD 衰老小胶质细胞中 ETS2、CDKN1A 和 CDKN2D 表达显著升高(图2D);SERPINE1、PLAUR、ATM 和 CDKN2A 等衰老相关基因上调,而 PRKCA、TLN2 和 JAK3 等基因下降(图2E)。因此,作者不仅复现了 AD 中广泛的神经元转录抑制,也将小胶质细胞衰老确定为突出的胶质反应,为后续分析这些表达变化是否伴随 3D 基因组重塑建立功能背景。
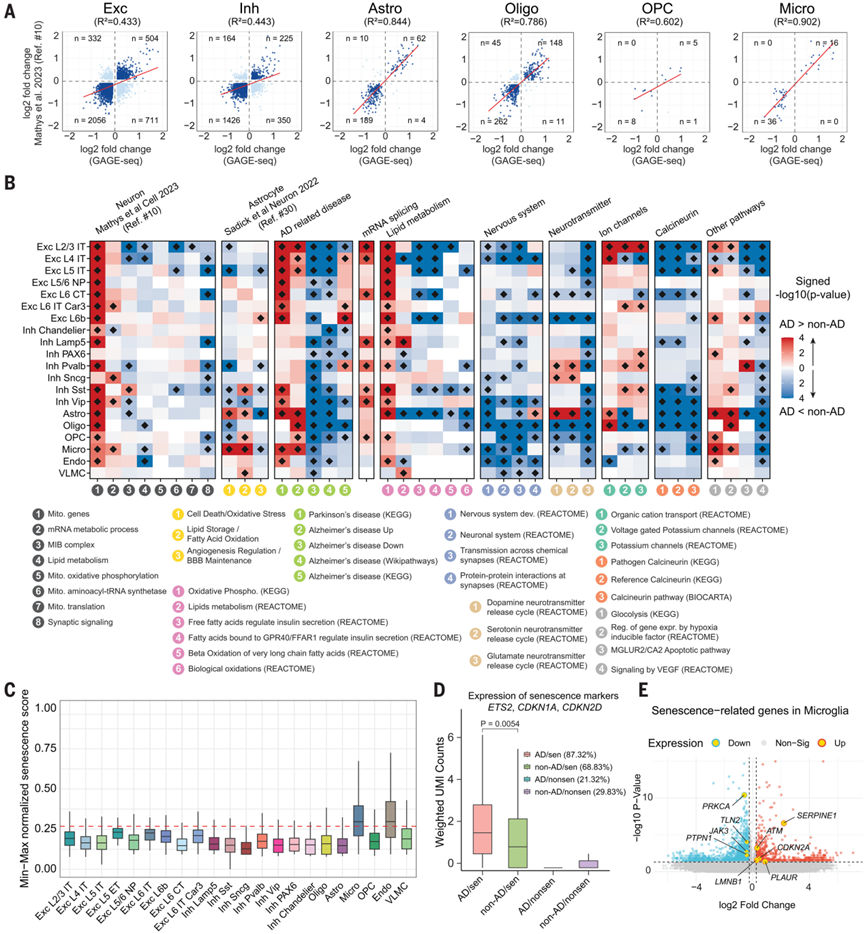
图 2. AD 不同脑细胞类型的转录改变及小胶质细胞衰老特征。
(A) 比较 GAGE-seq 与独立队列的差异表达结果;(B) 汇总各细胞亚型中 AD 相关及经典功能通路变化;(C) 比较不同细胞类型的衰老评分;(D-E) 展示 AD 衰老小胶质细胞中的关键调控基因及整体衰老相关差异表达谱。
03
AD 中远距离染色质接触增加,A/B 区室分隔减弱
研究团队随后从全局尺度分析 AD 是否改变染色质折叠方式。不同细胞类型中,AD 细胞的长距离/短距离接触比值以及染色体间/染色体内接触比值普遍升高,说明染色质接触从局部邻近区域向更远距离重新分配(图3A)。按基因组距离分层后,代表性细胞的接触热图均显示短距离信号减弱、长距离信号增加;chr10 的 Hi-C 图也直接呈现相同方向的变化(图3B-C)。A/B 区室鞍图进一步发现,AD 中活跃 A 区室与抑制 B 区室之间的异型接触增强,而 A-A、B-B 同型接触相对下降,表明原本相互分隔的染色质区域出现更多混合(图3D)。在同一细胞内联合考察 RNA 与结构后,长距离接触比例较高的 AD 细胞通常具有更低的 RNA 分子总量,神经元中的关系尤其明显(图3E)。差异基因的单细胞区室评分也随表达方向变化,上调基因更倾向转向活跃区室,下调基因则呈相反趋势(图3F)。作者据此建立 A/B 区室混合评分,结果再次显示 AD 细胞区室混合增加并伴随整体转录输出降低(图3G)。从通路看,氧化磷酸化和 RNA 代谢与混合评分正相关,而突触传递、神经系统发育及基础维持程序负相关,且这些关系在 AD 中更强(图3H-I)。作者因此提出一种全局结构模型:AD 并非简单发生区室身份翻转,而是区室边界变弱、远距离混合增多,并与疾病相关转录程序协同变化(图3J)。
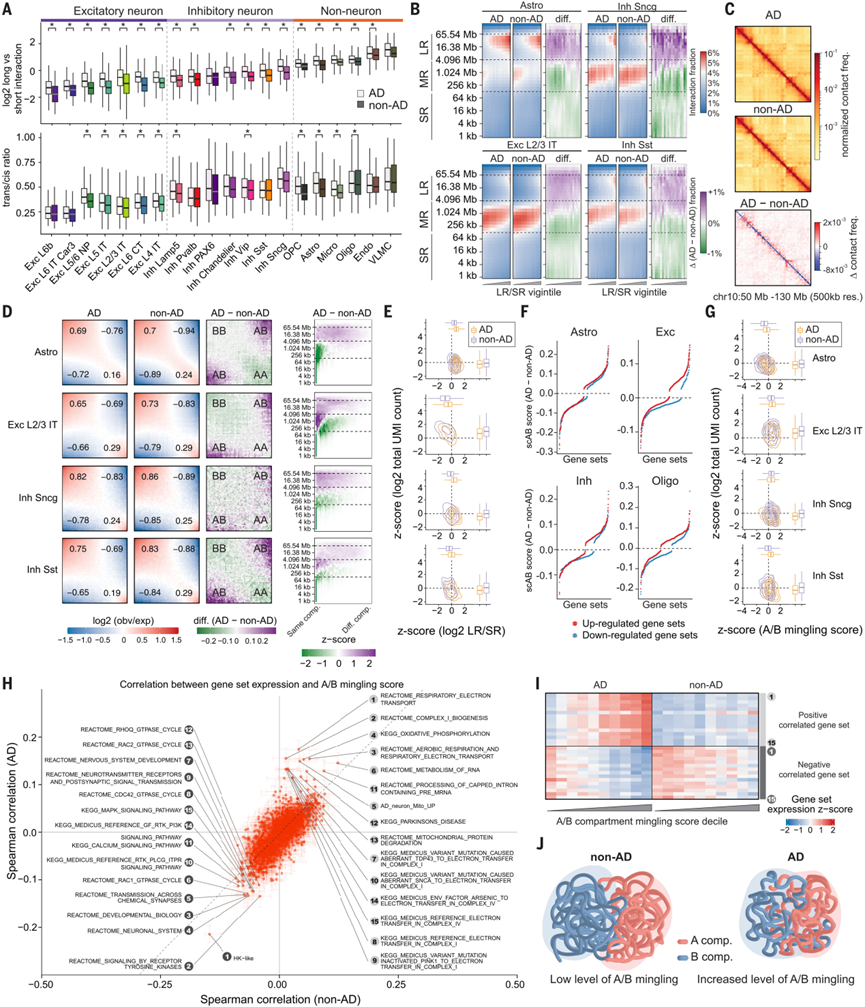
图 3. AD 中全局染色质远距离接触和 A/B 区室混合增加。
(A-C) 从接触比例、距离分层热图和代表性 Hi-C 区域展示 AD 中长距离接触增强;(D) 比较 A/B 区室内部及跨区室接触;(E-G) 关联长短程接触、区室状态及混合评分与单细胞转录输出;(H-I) 分析区室混合相关的功能基因集;(J) 总结 AD 中区室分隔减弱的结构模型。
04
AD 的局部调控接触减弱,同时中距离 cCRE 互作增强
在发现全局区室混合后,作者进一步考察与基因调控直接相关的 cCRE 接触如何变化。将供体匹配的 snATAC-seq 与 GAGE-seq 整合后,研究按两个接触锚点是否落在 cCRE 上进行分层。结果显示,非 cCRE 之间的短距离和中距离接触在 AD 中普遍下降;神经元中的 cCRE-非 cCRE 接触则表现为短距离减少、中距离增加,提示局部调控连接被更远距离的接触部分取代(图4A)。进一步细分增强子、启动子及染色质结构蛋白 CTCF 结合位点后,带有 CTCF 标记的 cCRE-cCRE 接触呈现最明显的中距离增强(图4B)。聚合峰分析也显示,AD 中 cCRE 相关染色质环强度整体升高,星形胶质细胞及兴奋性、抑制性神经元变化最突出,而小胶质细胞改变较小(图4C)。中距离接触增强的基因组区域通常含有更多 cCRE(图4D),转录因子(TF)基序密度也更高(图4E)。作者开发 Hi-C ChromVAR 推断 TF 活性,发现 CTCF 活性与区室混合评分的相关性最强;AD 细胞中 CTCF 活性越高,区室混合越明显、表达输出越低(图4F)。以转录起始位点(TSS)为中心观察发现,TSS 与邻近顺式调控元件(CRE)的接触下降,而与中距离 CRE 的接触增加,无论是否存在 CTCF 峰均可见这一趋势(图4G)。因此,本文形成“局部控制减弱、中距离连接增强、调控特异性下降”的模型(图4H);不过 CTCF 表达和整体结合图谱并未发生明显改变,现有数据尚不能证明是 CTCF 本身直接驱动了这种重连。
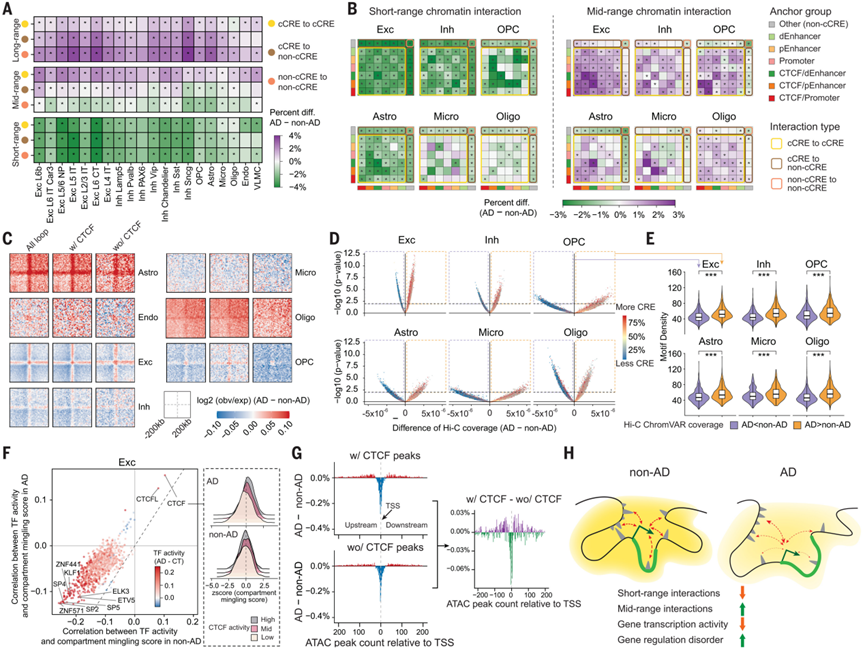
图 4. AD 中 cCRE 锚定的染色质互作发生距离依赖性重塑。
(A-B) 按 cCRE 类型和调控元件类别比较短、中、长距离接触;(C) 以聚合峰分析验证 cCRE 相关中距离染色质环增强;(D-E) 展示差异互作区域的 cCRE 数量和 TF 基序密度;(F) 关联 TF 活性与区室混合;(G) 比较 TSS 与近端或中距离 CRE 的接触;(H) 总结 AD 中局部调控减弱和中距离互作增强的模型。
05
Hicformer 显示 3D 基因组特征可提升 AD 相关表达预测
为评估 3D 基因组是否提供超出 DNA 序列的信息,研究团队开发 Hicformer。模型以每个基因 TSS 上下游 200 kb 为窗口,同时输入 DNA 序列、A/B 区室评分、绝缘度和基因体接触等一维特征,以及局部二维 Hi-C 接触图,最终预测细胞类型特异性基因表达(图5A)。模型在 13 类细胞、AD 与非 AD 两种状态下训练,并分别测试已见或未见的基因和细胞类型。所有测试情景中,Hicformer 均优于仅使用序列的基线模型,即使同时预测未见基因和未见细胞类型也保持优势(图5B)。被 Hicformer 明显改善预测的基因主要富集于 I 型干扰素、免疫激活、细胞因子产生和刺激应答通路(图5C);与 A/B 区室混合相关的 RNA 加工、蛋白翻译、突触信号和神经发育基因也更依赖 3D 特征才能准确预测(图5D)。特征归因显示,AD 状态下模型对 A/B 区室和基因体接触的依赖增加,且不同细胞类型的贡献模式不同(图5E)。在少突胶质细胞中,模型正确预测 SLC5A11 在 AD 中上调,并将其与局部可及性及接触增强联系起来(图5F)。在星形胶质细胞中,高活性远端 cCRE 对模型输出的影响显著高于普通增强子和背景区域(图5G);AQP4 上游约 97.4 kb 的开放 cCRE 同时具有 CTCF 结合和染色质环信号,虚拟扰动该区域会降低预测表达(图5H)。这些结果说明 3D 结构能够提高疾病相关表达的解释和预测,但虚拟扰动仍是模型推断,不能等同于实验删除该元件后的真实功能效应。
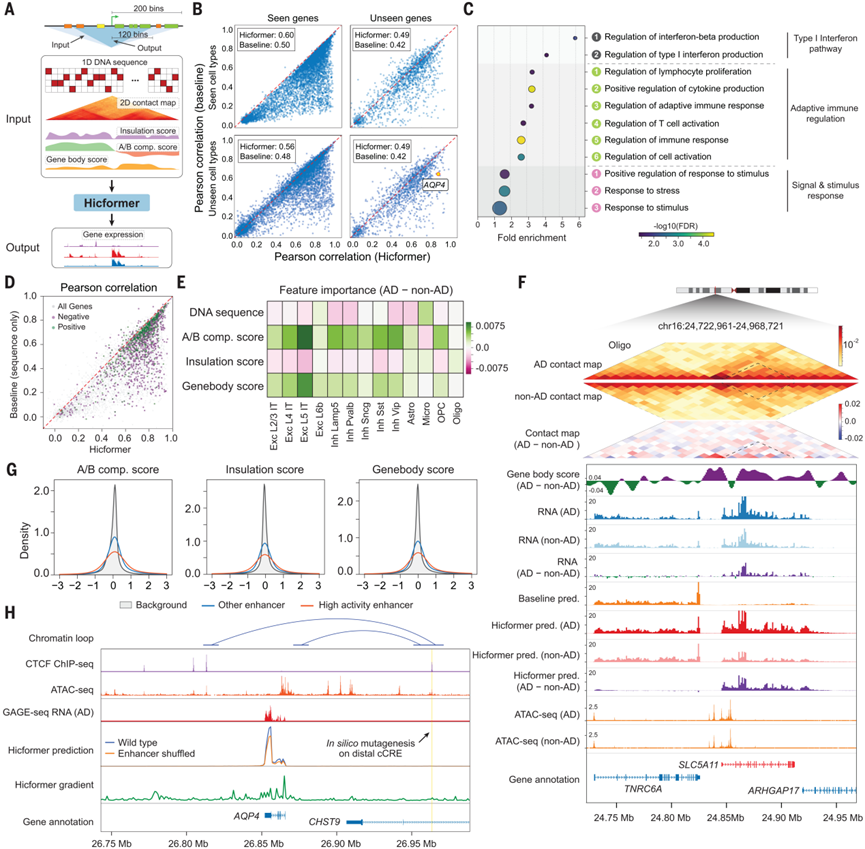
图 5. Hicformer 利用 3D 基因组特征解析 AD 相关转录改变。
(A) 展示 DNA 序列、一维结构特征和二维接触图共同预测表达的模型框架;(B) 比较 Hicformer 与序列基线在不同泛化场景下的性能;(C-D) 分析 3D 特征改善预测的疾病相关基因与通路;(E) 比较 AD 与非 AD 的特征贡献;(F) 展示 SLC5A11 位点;(G-H) 通过特征归因和虚拟扰动筛选 AQP4 远端候选调控元件。
06
空间转录组揭示 AD 中基因程序与 3D 区室协同关系受损
最后,研究团队将分子层面的 3D 基因组改变放回脑组织空间结构中。Xenium 质控后获得 213,271 个细胞,与 GAGE-seq 联合嵌入后主要细胞类型和亚型能够稳定对应(图6A);依据层特异性标志基因,4 张 PFC 切片被划分为皮层 L1-L6 和白质区域(图6B)。两种平台检测到的 AD 差异表达方向总体一致,但主要细胞类型的相关系数仅为 0.12 至 0.33,提示跨平台一致性存在但幅度有限(图6C)。神经元亚型具有更多 DEG,且以下调为主;胶质细胞 DEG 较少,上下调更均衡,与 GAGE-seq 结果相符(图6D)。空间元基因模型 POPARI 进一步识别出一组与具体细胞类型或共享状态对应的基因程序(图6E)。其中,m15 富集与 A/B 区室混合密切相关的基因,m0 则主要对应少突胶质细胞程序,两者在组织中的分布可直接定位(图6F)。非 AD 组织中 m0 与 m15 具有更强空间邻近,而 AD 中两者空间共定位程度明显降低(图6G)。双变量 Moran’s I 分析显示,m0/m15 基因表达与插补的 A/B 区室评分之间,以及两个元基因所含配体-受体基因之间的空间协同在 AD 中普遍减弱(图6H-I)。NCAM1-DPYSL2 这一与细胞黏附和神经突生长相关的基因对,在 AD 中的表达共定位和区室评分共定位均下降(图6J)。
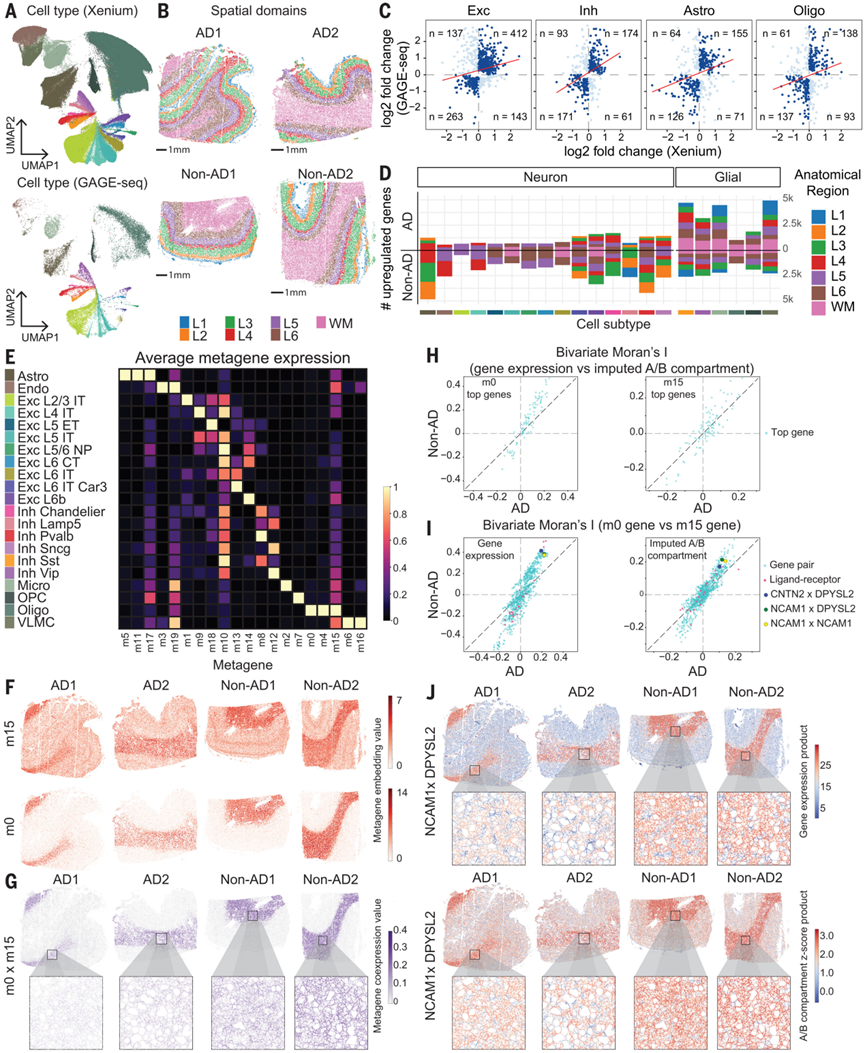
图 6. 空间转录组与 3D 基因组整合揭示 AD 组织生态改变。
(A-B) 验证 Xenium 与 GAGE-seq 的细胞注释并划分皮层空间区域;(C-D) 比较两种平台的差异表达及各细胞亚型变化;(E-F) 识别并定位空间元基因程序;(G) 展示 m0 与 m15 的空间共表达;(H-I) 比较基因表达、插补 A/B 区室及配体-受体基因对的空间协同;(J) 展示 NCAM1-DPYSL2 在 AD 中共定位减弱。
+ + + + + + + + + + +
结 论
本文建立了人脑 AD 单细胞转录组与 3D 基因组的联合图谱。研究发现,AD 中的染色质接触由局部短距离连接转向更多远距离连接,活跃与抑制区室之间的分隔减弱;在调控元件层面,TSS 与近端 CRE 的接触下降,而 CTCF 相关中距离互作相对增强。这些结构变化与神经元功能程序下调、代谢和 RNA 加工程序增强以及小胶质细胞衰老相关。Hicformer 进一步表明,加入 3D 基因组特征能够改善 AD 相关基因表达预测,并可优先筛选 SLC5A11、AQP4 等位点的候选远端调控元件。空间分析则提示,与区室混合相关的基因程序、少突胶质细胞程序及部分配体-受体关系在 AD 组织中的协同定位减弱。这些结果提供了一张多尺度地图,将3D基因组重塑与AD中细胞类型特异性基因表达变化及空间组织联系起来。该研究确立了基因组折叠作为与阿尔茨海默病病理相关的关键调控层,并为机制性假说的生成提供了框架和资源,包括对调控元素的优先排序以及未来功能测试和治疗探索中与阿尔茨海默病相关的基因项目。
+ + + + +