
 English
单细胞全基因组测序:解码抗癌治疗下转移性结直肠癌的克隆演化
一句话看懂:韩国研究团队对 6 位转移性结直肠癌患者的 58 个单细胞来源肿瘤类器官 与 18 份配对肿瘤组织 做了全基因组测序,首次在单细胞分辨率上重建出"抗癌治疗如何塑造肿瘤克隆"的完整演化图谱。核心发现有三点:① 化疗会在"增殖活跃"的克隆里留下特征性突变指纹,而放疗能打到"休眠"克隆;② 晚期肿瘤会持续发生复杂基因组重排、ecDNA 演化与 LINE-1 转座;③ 一些肿瘤甚至会"丢掉"原本的驱动突变——这直接关系到靶向药该不该用。
一、为什么必须"单细胞"地读肿瘤演化史?
结直肠癌(CRC)是全球癌症死亡的主要原因之一。过去二十年,人们已经画出了它的突变全景图,也确认了肿瘤内部存在广泛的遗传异质性。但有一个关键问题始终没有解决:在化疗、放疗和器官微环境的持续选择压力下,肿瘤的"晚期克隆演化"究竟是怎样发生的?
瓶颈出在检测手段上。
传统研究大多依赖整块肿瘤组织测序(bulk sequencing)。它给出的只是"组织平均值"——一份肿瘤组织里成千上万个癌细胞被混在一起测,那些只存在于少数细胞里的晚期亚克隆突变,会被大量正常细胞和主干克隆的信号"淹没",根本看不见。而单细胞全基因组测序虽然理论上能解决问题,但早期技术在基因组覆盖率和错误率上都不理想,点突变和基因组重排都难以准确检出。
这项研究换了一条更聪明的路:用类器官培养把单个癌细胞"养大"成克隆,再对每个克隆做全基因组测序(WGS)。由于每个克隆体都源自一个起始细胞,所有共享的体细胞突变就天然成了内源性"条形码"——用这些条形码,研究者可以重建出亚克隆的演化树,把突变按照"什么时候获得"逐一拆解到时间轴上。
换句话说:既保留了单细胞的"个体信息",又借助"先克隆扩增、再测序"拿到了足够干净、足够深的基因组数据。 这是本项研究在方法学上最关键的一步。
二、研究设计:58 个克隆体 + 18 份组织,搭出高清演化树
研究纳入 6 位转移性结直肠癌患者(MC01–MC06,男女、年龄各异),采集了配对样本:
- 58 个单细胞来源肿瘤类器官(tumoroid)克隆 - 18 份整块肿瘤组织(8 份原发灶 + 10 份转移灶) - 6 份配对正常组织(血液) 作为对照 - 测序平均深度 51×
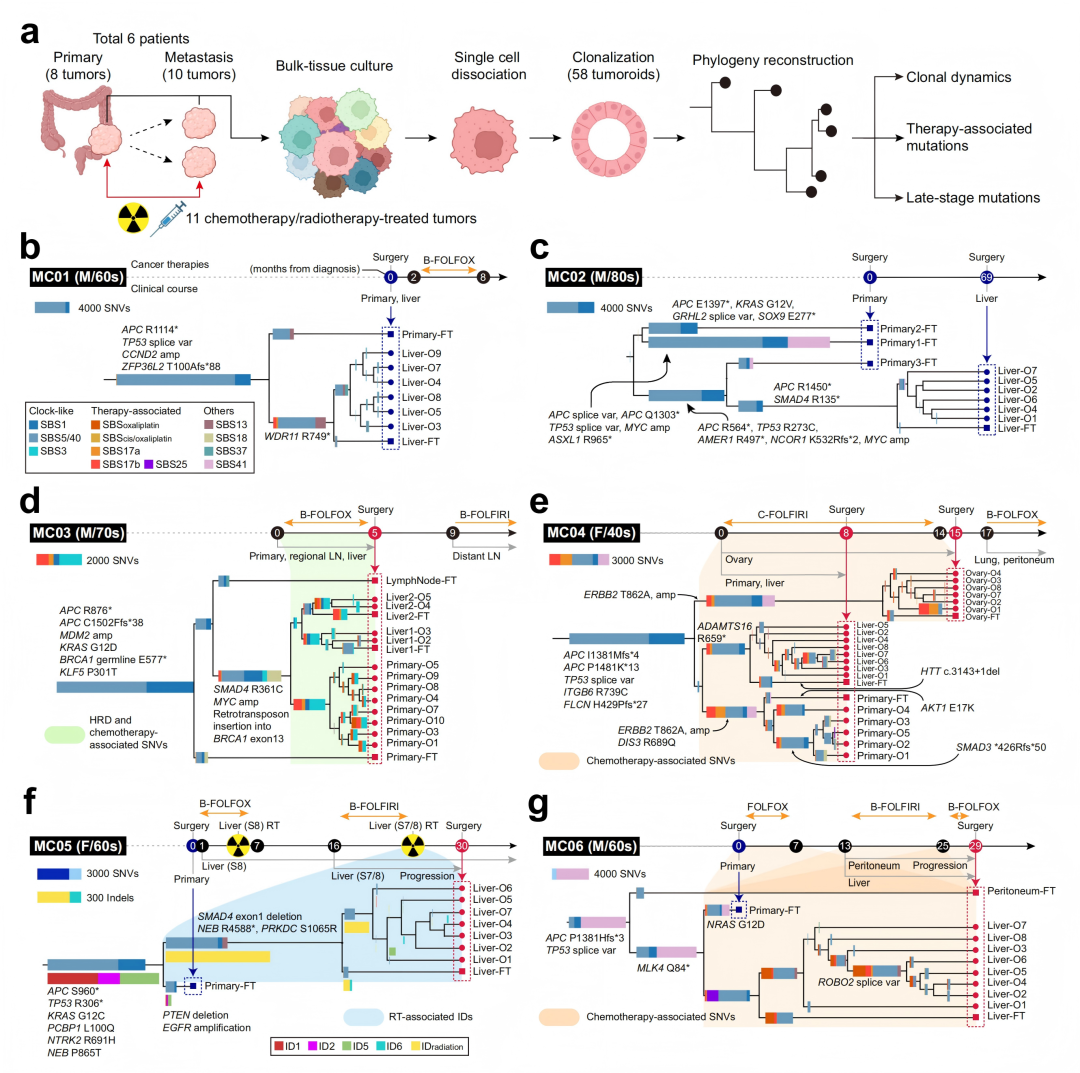
▲ 图1|研究设计与转移性结直肠癌克隆轨迹重建。a,研究流程示意:肿瘤样本经单细胞解离、克隆化培养(58 个肿瘤类器官)后进行全基因组测序与系统发育树重建;b–g,6 位患者(MC01–MC06)的克隆系统发育树与临床时间轴。每根彩色条的长度代表该分支上累积的单核苷酸变异(SNV)数量,颜色代表不同突变特征的相对贡献;蓝色与红色分别表示治疗前与治疗后样本;关键驱动突变被标注到对应分支上。
每个患者的肿瘤样本被一分为二:一半直接做整块组织测序,另一半用于建立肿瘤类器官。76 份肿瘤样本中,有 10 份组织和 46 个类器官属于治疗后样本——涉及 FOLFOX(5-氟尿嘧啶 + 亚叶酸钙 + 奥沙利铂)、FOLFIRI(5-氟尿嘧啶 + 亚叶酸钙 + 伊立替康)以及/或放疗。
分析结果的分辨率相当惊人:每个样本平均检出 13,418 个 SNV(范围 4,917–28,938)、1771 个短插入缺失和 98 个结构变异。用 SNV 作为谱系条形码重建的克隆树,与用结构变异重建的树拓扑一致,互相印证了推断结构的稳健性。
约 56% 突变在"主干",44% 是"晚期"事件
在所有患者的演化树里,平均 56.0% 的体细胞碱基替换是"主干突变"——在患者所有肿瘤样本中共享,代表肿瘤发生早期就已获得;剩下的 44.0% 属于"晚期突变",只局限在系统发育树的下游分支上。
一个符合既有认知的发现是:CRC 的经典驱动突变(TP53、KRAS、APC)绝大多数位于主干,或出现在演化树的第一个节点,说明它们主要参与肿瘤"起始"。但也找到了晚期驱动突变:例如患者 MC05 肝脏转移克隆中特有的 SMAD4 第 1 外显子纯合缺失。
转移,来自"单一的晚期亚克隆"
在 6 位患者的演化树里,转移克隆都共享一个晚期的共同祖先节点。这提示:远处转移很可能由单一亚克隆谱系主导,而不是多个并存克隆各自播散。
患者 MC02 的例子很能说明问题。他有 3 个同时性原发肿瘤,三者彼此只共享 16 个碱基替换,说明这三条谱系早在胎儿发育阶段就已分道扬镳——也就是三次独立的肿瘤发生。但肝脏转移组织和克隆,却只与其中一个原发灶(Primary3-FT,位于结肠肝曲)聚类,从而精准锁定了这个原发灶是唯一的转移来源。
研究还发现,腹膜、卵巢和淋巴结转移的克隆分歧时间,比肝转移更早——这与既往报道一致,提示不同转移部位的演化节奏并不相同。
三、抗癌治疗在癌细胞 DNA 上留下的"突变指纹"
化疗和放疗药物会造成特定类型的 DNA 损伤,从而在肿瘤基因组里留下可识别的突变特征(mutational signature)。这项研究用 COSMIC v3.2 等已知特征库,拆解了演化树主干和各个分支的突变构成。
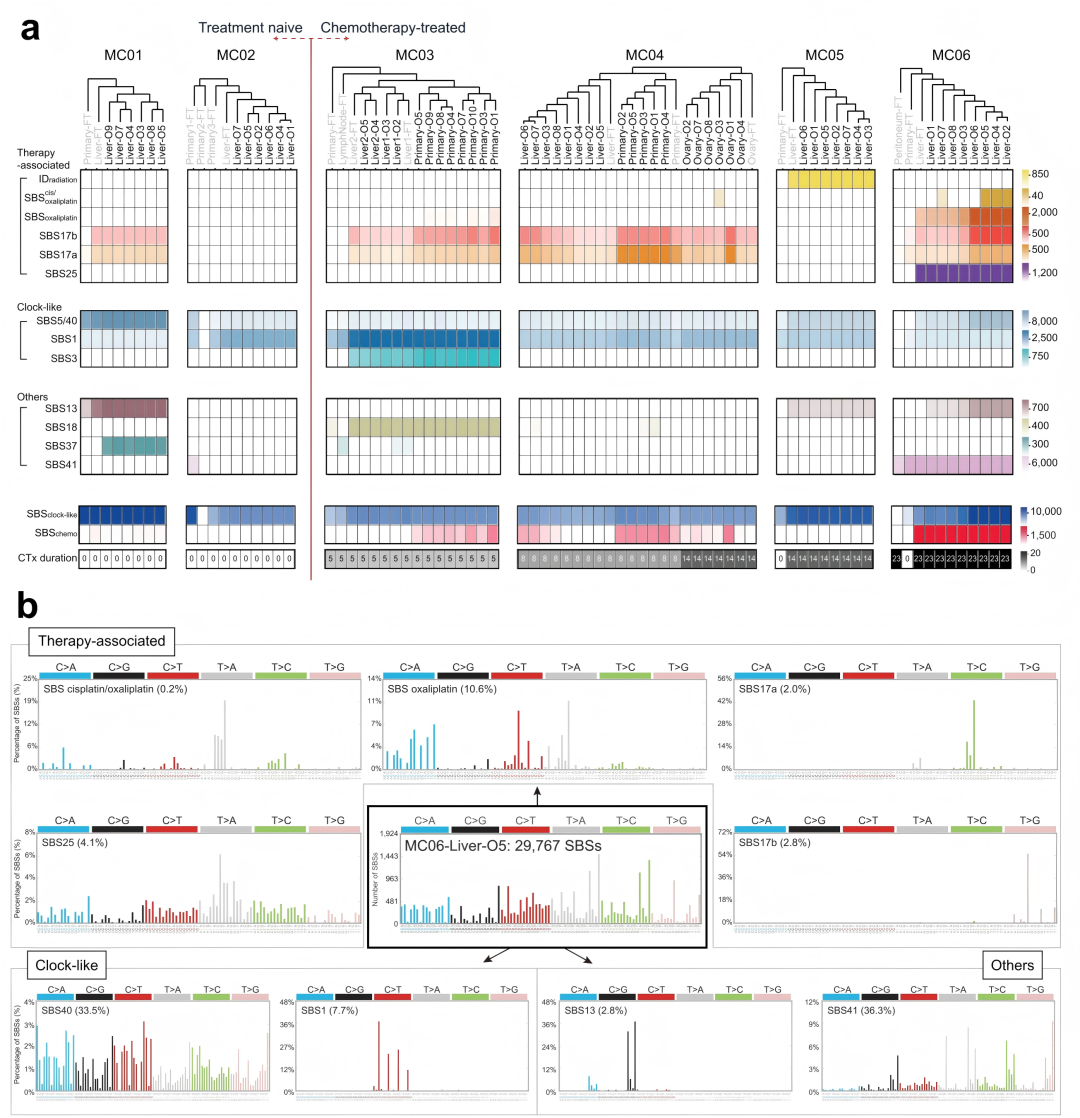
▲ 图2|抗癌治疗相关突变特征谱。a,热图显示各突变特征所对应的突变数量:前六行为治疗相关特征,其后为"时钟样"特征(SBS5/40、SBS1、SBS3)和其他特征(SBS13、SBS18、SBS37、SBS41);颜色深浅对应右侧色标的突变计数,并区分"初治(Treatment naive)"与"化疗后(Chemotherapy-treated)"样本。b,克隆 MC06-Liver-O5(居中)的突变谱与特征拆解结果,化疗相关特征(SBScisplatin/oxaliplatin、SBSoxaliplatin、SBS17a、SBS17b、SBS25)位于上/中两侧,"时钟样"特征(SBS40、SBS1)位于左下,其他特征(SBS13、SBS41)位于右下。
结果非常清晰——治疗会在基因组里"签名":
- 5-氟尿嘧啶(5-FU)→ SBS17a / SBS17b:在接受 5-FU 暴露的肿瘤中显著升高(SBS17b 平均 398 vs 149,P=9.885e-05;SBS17a 平均 233 vs 85,P=0.0001),与肿瘤所在部位无关。 - 奥沙利铂 → SBSoxaliplatin / SBScisplatin/oxaliplatin:在奥沙利铂暴露的类器官中常见。 - 放疗 → IDradiation:这是一种此前从受辐照细胞基因组中建立的插入缺失特征,出现在接受放疗的患者 MC05 的类器官中。 - 意外发现:SBS25:这一特征此前只在接受烷化剂(如丙卡巴肼、达卡巴嗪)治疗的霍奇金淋巴瘤中被观察到,本次却在接受 FOLFOX + FOLFIRI 的患者 MC06 治疗后类器官里检出。 - 未检出伊立替康(拓扑异构酶 I 抑制剂)特异特征。
一个反直觉的细节:这些"化疗相关突变"几乎只出现在演化树的下游分支,在整块组织里很少见——正因为克隆化类器官把晚期亚克隆"放大"了,我们才得以敏感地捕捉到治疗相关突变。这恰恰说明单细胞克隆方法的独特价值。
综合起来,研究者把 SBS17a/SBS17b(5-FU)、SBSoxaliplatin、SBScisplatin/oxaliplatin(奥沙利铂)和 SBS25 归为化疗相关碱基替换特征(SBSchemo)。平均而言,每个克隆携带约 1400 个 SBSchemo 碱基替换,占其总突变负荷的约 8.0%(范围 0.1–17.3%)。
四、克隆之间的"不平等":增殖越旺,化疗"伤痕"越深
治疗相关突变的总量,整体上与化疗暴露时长正相关——平均每月化疗对应约 142 个 SBSchemo 突变(95% CI 116–167)。但这只是平均值,真正有意思的是克隆之间的巨大差异。
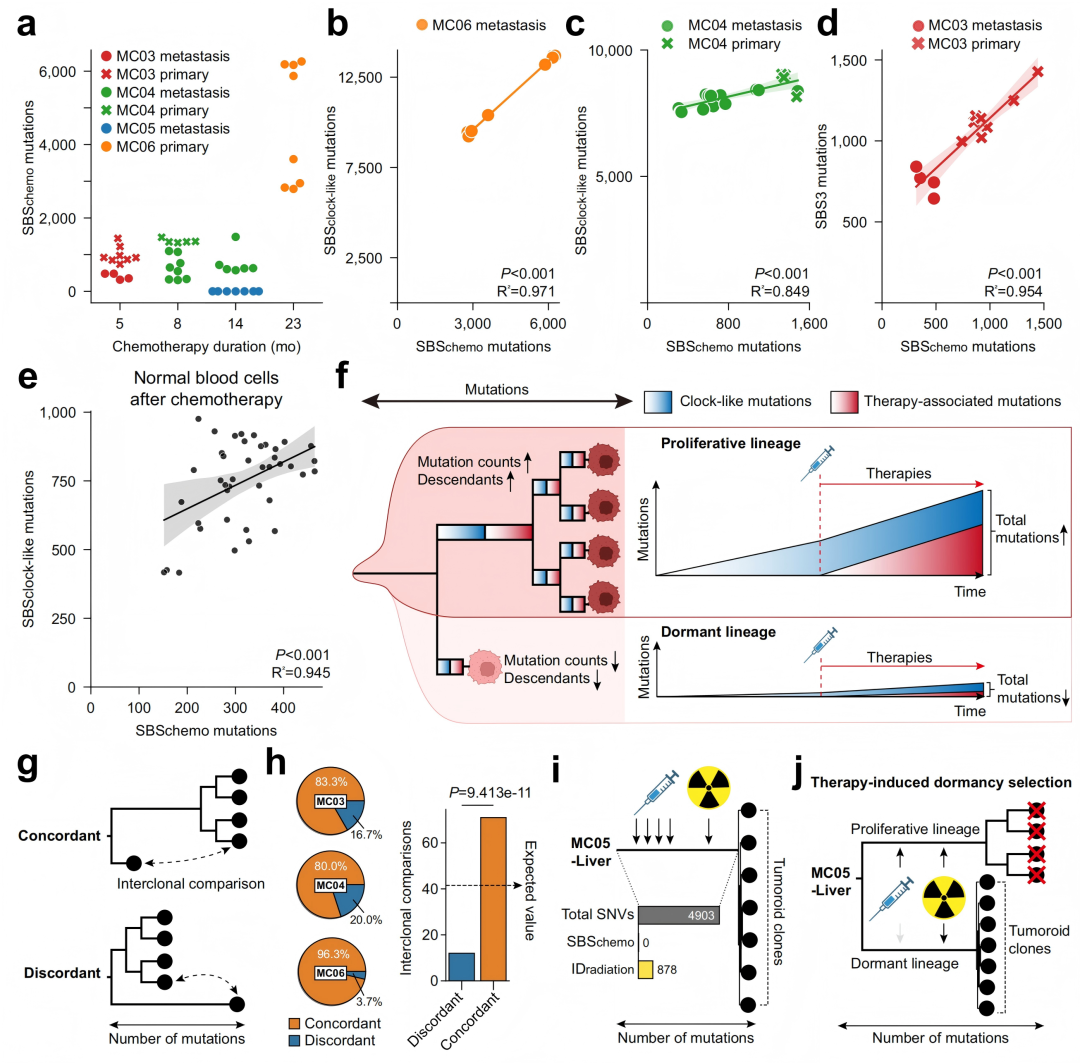
▲ 图3|抗癌治疗下的不对称克隆演化。a,每样本 SBSchemo 突变数与化疗时长的关系(颜色代表不同患者)。b/c,患者 MC06(n=8,P=7.614e-07)与 MC04(n=19,P=5.090e-09)中 SBSchemo 与"时钟样"突变数的相关性。d,患者 MC03 中 SBSchemo 与 SBS3 突变数的相关性(n=12,P=6.831e-09)。e,外部队列(经化疗的正常血液细胞,n=41,P=5.972e-27)中两者的相关性。f,化疗对"增殖谱系"与"休眠谱系"突变影响的差异示意。g,克隆间比较的"一致(concordant)"与"不一致(discordant)"定义。h,三位患者中一致/不一致节点的饼图与汇总柱状图(P=9.413e-11)。i,患者 MC05 肝转移类器官克隆的系统发育树。j,MC05 中"治疗诱导休眠选择"的示意。
例如,SBScisplatin/oxaliplatin 特征只出现在 27 个接受奥沙利铂暴露类器官中的 5 个;来自 MC03 的 12 个类器官中,有 2 个克隆完全检测不到 SBSoxaliplatin;同一个体来源的治疗后类器官之间,SBS17b 负荷也差异悬殊。
为什么有的克隆"伤痕累累",有的却"毫发无伤"? 答案指向了细胞分裂次数。
研究者发现,SBSchemo 的多少,与克隆中"时钟样"内源突变(SBS1、SBS5/40)的数量高度正相关——而这两类特征正是与细胞增殖和年龄密切相关的。在 MC04、MC06 中,SBSchemo 负荷高的克隆,其 SBS1/SBS5/40 突变数也显著更高(如 MC06:n=8,P=7.614e-07;MC04:n=19,P=5.090e-09)。
这一规律在外部数据集中也成立:275 个来自 4 位正常血液供者的克隆、12 个来自 2 位正常结肠上皮供者的克隆,都呈现同样的趋势。
结论直白地说:分裂越多、越"活跃"的癌细胞,化疗后累积的突变越多;而处于静止或细胞周期阻滞状态的"休眠"癌细胞,则更不容易被化疗"刻伤"。
这从演化树结构上也能看出来:产生更多子代克隆的"姐妹谱系",倾向于累积更多突变——即所谓的"优势亚克隆"。在 MC03、MC04、MC06 中,"突变负荷更高、且产生了更多子代克隆"的一致(concordant)节点显著多于不一致节点(P=9.413e-11)。
一个反向验证:MC05 的"休眠选择"
最有力的反例来自患者 MC05。他接受了长时间的 FOLFOX + FOLFIRI,但所有克隆里都检测不到 SBSchemo 突变,取而代之的是 878 个 IDradiation(放疗相关)插入缺失,且水平与既往报道的辐照正常细胞相当(约 12 个 indel/Gy)。
研究者给出的解释是"治疗诱导的休眠选择":如果化疗对增殖旺盛或易受损的癌细胞施加了强烈的负向选择,那么治疗后残留的肿瘤组织就会以休眠谱系为主——而电离辐射是物理诱变剂,能穿透细胞核损伤 DNA,无论细胞是否在分裂。因此,治疗后存活下来的休眠克隆会带有辐射相关突变、却缺少化疗相关突变,并在演化树上失去不对称性。
五、晚期驱动突变:趋同演化与"丢失"的癌基因
在克隆演化过程中,研究者观察到了大量驱动突变的获得与丢失,其中最具启发性的是趋同演化(convergent evolution)——不同谱系独立、反复地改变相同基因。
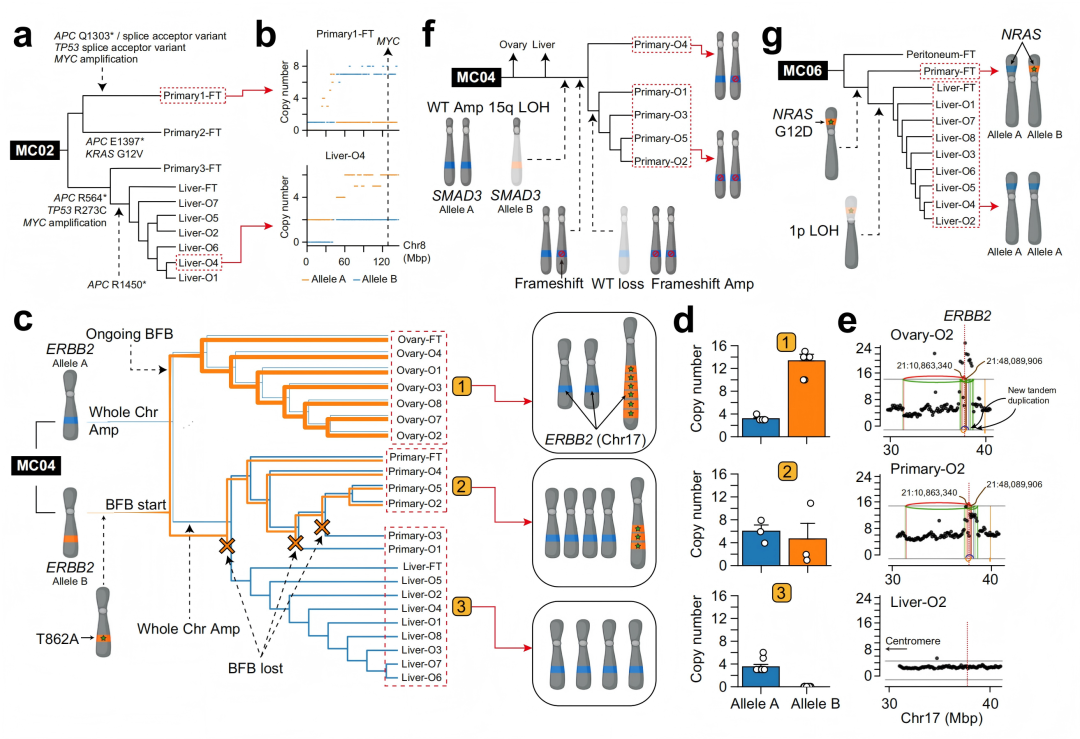
▲ 图4|克隆演化过程中的晚期驱动突变。a,患者 MC02 三个同时性原发肿瘤中驱动突变的趋同演化(APC、KRAS、TP53、MYC 标注在演化树上)。b,Primary1-FT(上)与 Liver-O4(下)第 8 号染色体的等位基因特异性拷贝数图谱,MYC 位点由虚线标出。c–e,患者 MC04 中 ERBB2 突变的演化:等位基因特异性拷贝数变化映射到演化树上(等位基因 A 橙色、B 蓝色),标注了拷贝数扩增、T862A 热点突变(绿星)与断裂-融合-桥(BFB)事件(c);不同部位的 ERBB2 等位基因平均拷贝数(d);ERBB2 位点的拷贝数-重排断点图(e)。f,患者 MC04 原发肿瘤克隆中 SMAD3 的逐步功能丧失。g,患者 MC06 中 NRAS 突变的丢失。
- MC02 的"平行剧本":三个同时性原发肿瘤独立地获得了 TP53、APC 等抑癌基因的功能丧失突变,还各自发生了独立等位基因的 MYC 癌基因扩增——说明早期肿瘤发生时就存在对相似致癌驱动的平行选择。 - MC04 的 ERBB2 三重打击:肿瘤至少独立发生了 3 次 ERBB2 改变——包括丝氨酸/苏氨酸激酶结构域热点突变 T862A 和两次扩增事件:① 断裂-融合-桥(BFB)循环把 T862A 突变等位基因局部扩增到 6–17 个拷贝;② T862 野生型等位基因的全染色体扩增。有趣的是,BFB 扩增子常在肝转移及部分原发克隆中丢失,且这种丢失在演化树上至少独立发生了 3 次,可能源于两种扩增事件之间的功能冗余。 - 逐步的功能丧失:SMAD3 先在 15q 臂发生拷贝数中性杂合性缺失(LOH),随后在扩增等位基因上获得移码突变,野生型等位基因进一步丢失,最终在部分原发肿瘤克隆中实现纯合失活。
最颠覆的一笔:肿瘤会"丢掉"驱动突变
在患者 MC06 中,原发灶存在 NRAS G12D 突变,但肝脏转移克隆却通过一次染色体臂的大片段缺失把该突变丢掉了。
这具有直接的临床意义:NRAS 突变是"anti-EGFR 单抗(如西妥昔单抗)"的用药禁忌——MC06 正是因为原发灶检出 NRAS 突变而放弃了抗 EGFR 治疗。但如果转移克隆已经丢失了 NRAS 突变,它是否本可以从抗 EGFR 治疗中获益?这提示——治疗策略需要跟着肿瘤的克隆演化动态调整,而非只看一次活检的结果。
六、复杂基因组重排:一次"灾难"之后,还会继续演化
复杂基因组重排(CGRs,如染色体碎裂 chromothripsis)通常被认为是单次灾难性事件。但得益于克隆类器官的高分辨率,研究者发现:有些重排在晚期克隆演化中会继续"加码"。
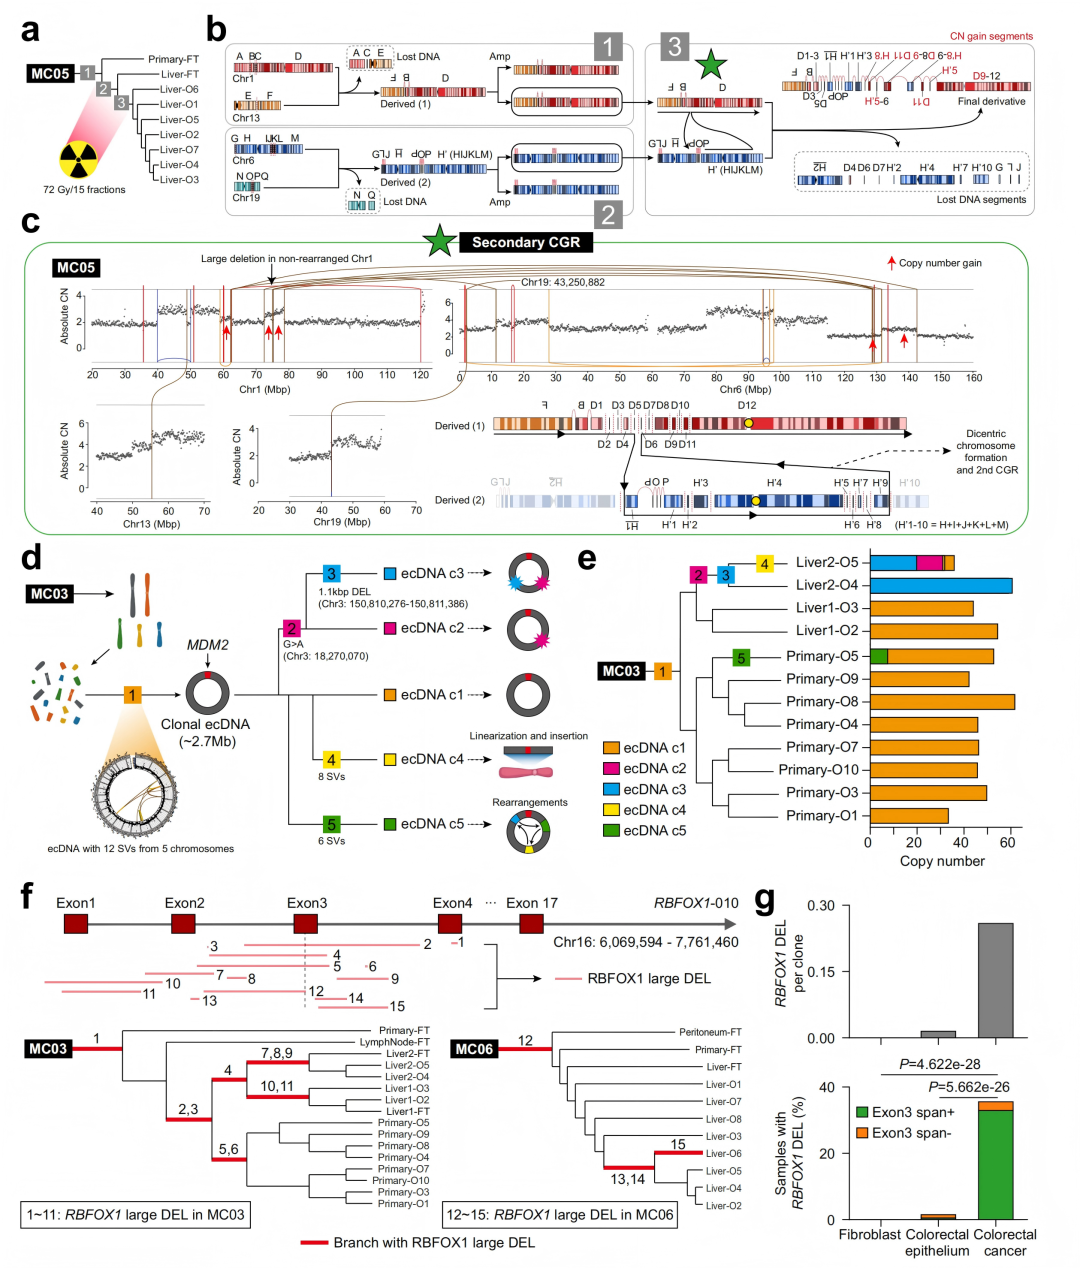
▲ 图5|复杂基因组重排的演化。a–c,患者 MC06 中 CGR 的逐步重建:演化树上的灰色编号框表示各次事件,受放疗影响的事件已标注(a);各分支特异的重排以示意图呈现(b);二次染色体碎裂对应的拷贝数图谱与重排断点(c)。d–e,患者 MC03 中携带 MDM2 的染色体外 DNA(ecDNA)的演化,编号彩框表示定义 ecDNA 亚克隆的突变(d),各克隆的 ecDNA 拷贝数(e)。f,患者 MC03 与 MC06 中 RBFOX1 位点的反复大片段缺失。g,不同队列中 RBFOX1 大片段缺失的发生率(成纤维细胞 n=332、正常结肠上皮类器官 n=406、转移性 CRC 类器官 n=76)。
- MC05 的"重排叠加":早期演化中发生两次独立 CGR(1 号与 13 号染色体;6 号与 19 号染色体),形成的两条衍生染色体在各自复制后,又重排成一条双着丝粒染色体,随后发生二次 CGR,产生新的聚集性断裂点和拷贝数改变。类似的"重排之后再生重排"也见于 MC03 和 MC06,提示经历过 CGR 的基因组区域,在克隆演化中更易发生再次重排。 - ecDNA 的动态演化:在 MC03 中追踪到驱动 MDM2 局部扩增的染色体外 DNA(ecDNA)演化——它很可能源自多染色体染色体碎裂。虽然原发灶与肝转移的整体 ecDNA 拷贝数一致(P=0.8375),但克隆间发生了序列层面的替换:在 Liver2-O4 与 Liver2-O5 中,旧的 ecDNA 池被新的突变型 ecDNA 取代,提示 ecDNA 组成会在克隆演化中"动态漂移"。 - RBFOX1 反复缺失:研究在两个患者(MC03、MC06)、7 个肿瘤病灶、17 个 CRC 样本中发现 RBFOX1 大片段缺失(发生率 22.4%,显著高于正常结肠克隆的 1.5%,P=5.662e-26)。缺失片段大小 2 kbp–470 kbp,常跨越 RBFOX1-010 转录本的第 3 外显子;15 个样本(19.7%)甚至出现3–4 个并发的 RBFOX1 缺失——这超出了抑癌基因"二次打击"假说的预期,提示该基因组区域在 CRC 中天生脆弱。RBFOX1 编码一个参与可变剪接的 RNA 结合蛋白,具有单倍剂量不足特性,有望成为 CRC 特异性的候选驱动基因。
七、LINE-1"跳跃基因":跟着细胞分裂一起累积
最后,研究者考察了长散在核元件-1(LINE-1 或 L1) 这种人类基因组里的"跳跃基因"在克隆演化中的活动。
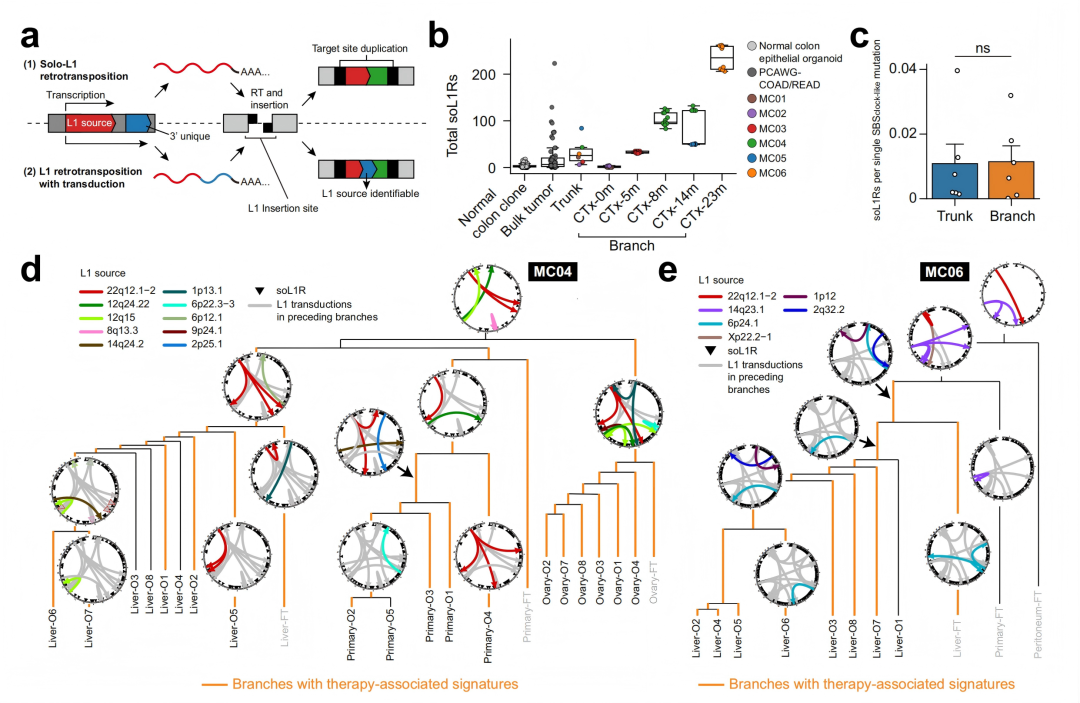
▲ 图6|克隆演化中的 L1 逆转座。a,L1 逆转座机制示意(含转导)。b,各克隆的体细胞 L1 逆转座(soL1R)总负荷。c,每个 SBSclock-like 突变对应的 soL1R 率在主干与分支间无显著差异(ns)。d–e,患者 MC04(d)与 MC06(e)中不同 L1 来源元件的活跃情况,右侧环形图标注各 L1 来源。
- 研究共检出 1138 个体细胞 L1 逆转座(soL1R)事件,平均每个克隆 104 个(范围 8–291)——远高于正常结直肠类器官的"每个克隆 3 个",说明肿瘤中 L1 活性显著增强。 - 其中 224 个(20%)是发生在"主干"上的早期事件。 - 分支 soL1R 负荷与化疗暴露呈广泛正相关,但个体间和克隆间差异巨大(例如 MC04 中 soL1R 负荷并不随化疗时长明显上升)。 - 关键规律:soL1R 负荷同样与时钟样内源突变正相关。若把 soL1R 归一化到时钟样突变数(即"每个细胞分裂对应的 soL1R 率"),会发现主干与分支之间没有显著差异(11.5 vs 10.9,P=0.9409)。
这意味着:化疗后看似"暴增"的 soL1R,本质上反映的仍是化疗期间新增的细胞分裂次数,而不是化疗直接诱发了 L1 跳跃。 与之呼应,MC05 这种"化疗+放疗消灭了大部分增殖细胞"的患者,其分支 soL1R 占比明显更低(43.6% vs 84.4%,P=2.017e-07)。
研究还捕捉到一些同一 L1 来源元件在不同时间/个体间"开关切换"的现象:例如 22q12.1-2 这一来源,在 MC04 中于化疗后分支被"激活",而在 MC06 中却在主干活跃、分支沉寂——说明每个 L1 来源的活性会在克隆演化中随时间变化。
八、这项研究对临床意味着什么?
精准量化了治疗相关突变
:以往基于 bulk 组织的研究估计每月化疗累积"数百个"突变,但单个细胞层面的真实负荷一直不清楚。本研究首次在单细胞水平量化了每个克隆约 1400 个化疗相关碱基替换(约占总负荷 8%),并揭示其在不同克隆间极不均衡。 "休眠"可能是化疗耐药的关键
:更多分裂的克隆累积更多化疗突变,而休眠克隆几乎"免疫"于化疗突变。这为肿瘤休眠作为化疗耐药机制提供了基因组层面的直接证据,也提示"诱导或打破休眠"可能成为新的治疗思路。 驱动突变的"动态得失"要求动态用药
:像 MC06 那样转移灶丢失 NRAS 突变、却因此错失 anti-EGFR 治疗机会的案例,说明仅凭原发灶或单次活检决定靶向治疗可能并不充分,需要结合克隆演化的时间维度。 新候选靶点与脆弱位点
:RBFOX1 反复缺失、ecDNA 的克隆漂移、CGR 的持续演化,都为理解 CRC 的晚期侵袭与耐药提供了新的切入点。
九、方法学启示:为什么"单细胞 + 类器官"值得关注
这项研究最值得国内同行借鉴的,是它的方法学组合拳:
- 单细胞分离 + 类器官克隆扩增 + 全基因组测序,用共享突变作"内源条形码",把"看不见的晚期亚克隆"变成"看得见、测得到"的独立个体; - 突变特征拆解(signature decomposition) 把治疗暴露"翻译"成基因组语言; - 整块组织与单细胞克隆互为对照,既能验证克隆谱系在组织中的真实存在,又能识别组织测序"看不见"的少数谱系。
值得一提的是,该研究大量依赖多组学检测与深度测序策略的协同:从 WGS 到突变特征分析、拷贝数-重排联合解析,多层数据相互印证,才拼出了这幅完整的演化图景。这也正是当前肿瘤精准医学研究的主流范式——单一检测维度难以窥见全局,多组学整合才是破局之道。
十、写在最后
从"组织平均值"到"单细胞个体",我们对肿瘤的理解正在从快照走向电影。这项研究告诉我们:肿瘤不是一个静止的整体,而是一个在治疗压力下不断分化、竞争、甚至"丢弃"自身驱动突变的动态生态系统。
理解了这套"演化规则",我们才可能真正回答那个临床难题——为什么有的癌细胞被彻底杀死,有的却能"潜伏"多年后卷土重来。
参考文献:Lee WH, Kim B, Nam CH, et al. Clonal evolution and mutational trajectories of metastatic colorectal cancer shaped by anticancer therapies. Nature Communications, 2026, 17:7509. DOI: 10.1038/s41467-026-74384-3