
 English
文献解读|Cell Metab(37):棕色脂肪通过重塑循环代谢组来抵抗肝脏氧化应激
✦ +
+
论文ID
原名:Brown fat protects against hepatic oxidative stress by remodeling the circulating metabolome
译名:棕色脂肪通过重塑循环代谢组来抵抗肝脏氧化应激
期刊:Cell Metabolism
影响因子:37
发表时间:2026.07.14
DOI号:10.1016/j.cmet.2026.06.020
背 景
棕色脂肪组织(BAT)是一种代谢活跃的器官,能够保护人类和啮齿动物免受心血管代谢疾病的侵害。由于BAT是一种产热器官,其产热机制依赖于BAT特异性蛋白——解偶联蛋白1(UCP1)。因此,目前普遍接受的模型认为,UCP1介导的产热能够增加全身能量消耗,降低体重,从而改善葡萄糖稳态和胰岛素敏感性。虽然许多动物研究支持这一线性理论,但也有一些观察结果对这一观点提出了挑战。例如,关键棕色脂肪调节因子(如PRDM16-EHMT1复合物)的脂肪组织特异性缺失会导致肝脏胰岛素抵抗、脂肪纤维化和炎症,即使在环境温度下,这些症状也先于体重变化出现。而UCP1缺陷小鼠只有在温度中性(TN)条件下饲养时才会出现肥胖或胰岛素抵抗。此外,虽然BAT的产热作用和全身能量消耗得以保留,但BAT中支链氨基酸(BCAA)分解代谢的选择性缺陷却导致肝脏氧化应激升高和全身胰岛素抵抗。重要的是,大规模人群队列研究表明,活跃的BAT与较低的2型糖尿病、血脂异常和心血管疾病患病率显著相关——所有这些关联均独立于体重指数(BMI)而显著。BAT的代谢益处远远超出其明确的产热作用和全身能量消耗。一个关键问题:是什么介导了 BAT 在控制代谢健康方面的代谢有利作用?
实验设计
结 果
01
棕色脂肪组织对体内循环代谢组和脂质组的影响
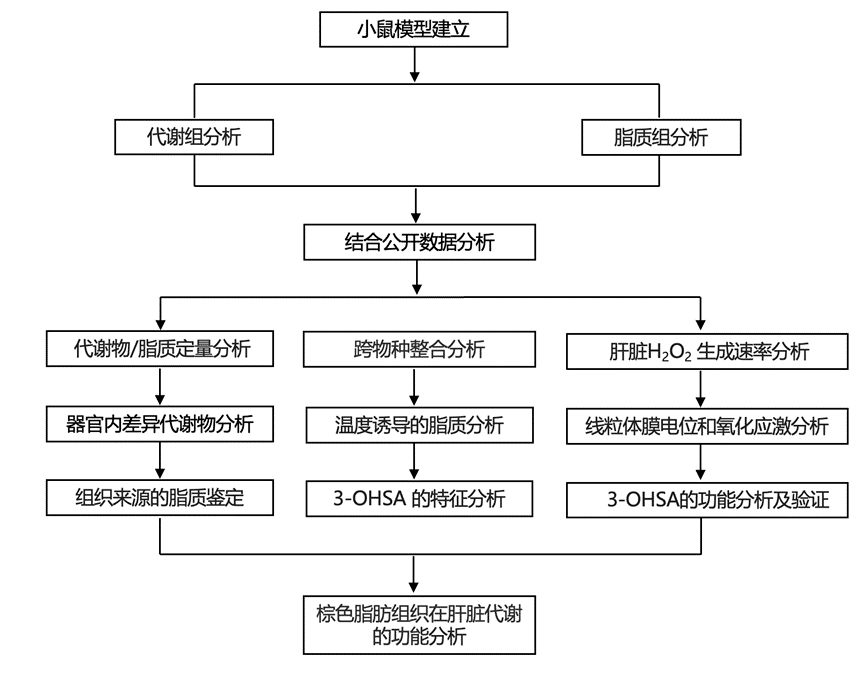
为了研究BAT如何影响体内循环代谢物和脂质谱,研究团队设计了以下策略(图1A)。首先,构建了BAT缺陷小鼠模型,其中过氧化物酶体增殖物激活受体γ(Pparg)在表达UCP1的脂肪细胞中敲除(Ucp1 -Cre;Pparg flox/flox,以下简称BAT−小鼠)(步骤1)。与同窝对照组(Pparg flox/flox,以下简称BAT+小鼠)相比,BAT−小鼠的肩胛间棕色脂肪组织(iBAT)大部分由单房脂肪细胞和纤维化组织所取代。与BAT+小鼠相比,BAT−小鼠的iBAT重量在雄性中减少了约4倍,在雌性中减少了约2倍,而室温(RT)下常规饮食喂养时,小鼠的总体重保持不变。与BAT+小鼠相比,BAT−小鼠中棕色脂肪组织(BAT)标志基因(包括Ucp1、Cidea、Elovl3、Cox7a和Pparg)的表达显著降低。这些小鼠先在室温下饲养,然后分别暴露于低温(6°C,1小时和3小时)和慢性低温(6°C,3天),随后在自由摄食条件下适应常温(28°C,3天),并采集其血清样本(步骤2)。需要注意的是,他们调整了实验方案,以避免BAT−小鼠出现体温过低的情况,而不是直接将小鼠从常温转移到低温环境。随后,他们采用液相色谱-质谱联用(LC-MS)技术对这些样本进行代谢组学和脂质组学分析(步骤3)。
分析鉴定出206种代谢物和249种脂质,它们的循环谱因BAT缺失而发生改变。这些代谢物和脂质分为不同的动态模式(代谢物分为I至IV类,脂质分为I至VI类),代谢相关的分子聚集在一起。前三个代谢物类群和前四个脂质模式在BAT缺失小鼠中积累(步骤4)。例如,在寒冷暴露期间,BAT−小鼠循环中的支链氨基酸(BCAA)(缬氨酸、亮氨酸和异亮氨酸)水平高于同窝对照小鼠(I类)(图1B)。这一结果与之前的研究一致,即BAT在寒冷暴露下会主动摄取BCAA,而BAT中BCAA分解代谢的缺陷会导致循环BCAA水平升高。同样,在TN条件下,与对照组小鼠相比,BAT缺失小鼠体内谷胱甘肽相关代谢物[包括谷氨酰谷氨酸(γ-Glu-Glu)、焦谷氨酸(Pyro-Glu)、S-腺苷甲硫氨酸(SAM)和氧化型谷胱甘肽(GSSG)]水平升高(聚类III)。在脂质方面,较大、疏水性较强的分子,包括脂蛋白衍生的脂质[如甘油三酯(TG)、甘油二酯(DG)、胆固醇酯(CE)、神经酰胺(CER)和磷脂],归类为前四个聚类,这些脂质在BAT缺失小鼠体内的循环水平高于对照组(BAT+)小鼠。相比之下,较小、更亲水的游离脂质,如酰基肉碱(CAR)和羟基脂肪酸(OHFA),聚集在最后两组中,并且在 BAT+小鼠血清中的含量比在 BAT−小鼠血清中的含量更高(图 1 C)。
这些聚类的定量分析结果如下。在冷暴露期间,BAT−小鼠循环中的BCAA,包括缬氨酸、亮氨酸和异亮氨酸)水平仍高于对照组小鼠(图 1D)。值得注意的是,BAT缺失降低了小鼠在冷暴露后的谷胱甘肽(GSH)水平。相反,在正常体温(TN)下,BAT缺失小鼠的氧化型谷胱甘肽(GSSG)水平高于对照组小鼠(图 S1E)。这些结果与之前的研究一致,表明 BAT 中的 BCAA 分解代谢有助于 GSH 合成和氧化还原稳态。已有报道指出,BAT 通过降低循环TG水平在循环脂质代谢中发挥关键作用。一致地,在冷暴露期间,BAT−小鼠的循环 TG (例如,TG 14:0/16:0/18:1)和 DG(例如,DG 18:2/18:2)水平高于对照小鼠(图 1 E)。
与对照组小鼠相比,BAT−小鼠的循环血清素水平升高。考虑到之前的研究表明 BAT 会主动摄取血清素,而血清素是产热的负调控因子,这一结果令人关注。此外,BAT−小鼠的循环 AMP 水平也升高(图 1F)。在冷暴露后,BAT−小鼠血清中几种脂质的含量显著低于对照组小鼠。这些脂质包括中链 CAR(例如 CAR 8:0)、羟基硬脂酸(OHFA 18:0)和二羟基十八碳二烯酸(DiHODE)(图 1F)。另一方面,两组小鼠血清中包括棕榈酸、硬脂酸、油酸、亚油酸和花生四烯酸在内的脂肪酸水平无显著差异。这与既往研究结果存在明显差异,既往研究表明,在空腹状态下,急性寒冷暴露会增加循环脂肪酸水平。这种差异可能是由于本研究是在为期3天的慢性寒冷适应过程中,小鼠处于自由摄食状态所致。二十二碳六烯酸(DHA)是一个例外,与对照组小鼠相比,BAT−小鼠在寒冷暴露后DHA水平出现轻微但显著的降低。此外,12,13-二羟基维生素D3(12,13-diHOME)在BAT缺失小鼠中也呈现降低的趋势,但未达到统计学意义。总之,利用BAT−小鼠模型进行的全面血清分析鉴定出一些已知和未知的代谢物和脂质,它们的循环谱与体内BAT相关。
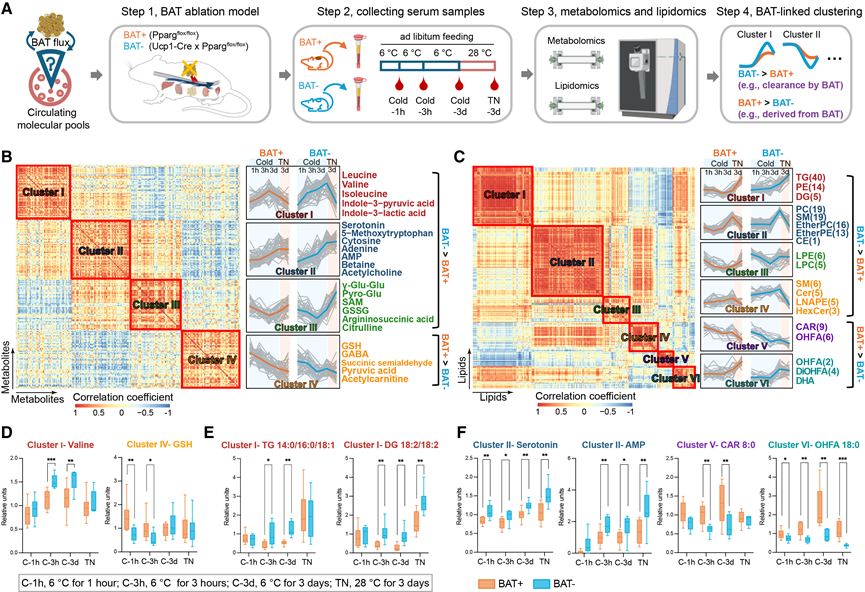
图1. 棕色脂肪组织对体内循环代谢组和脂质组的影响。
(A) 研究棕色脂肪组织(BAT)如何影响体内系统代谢物和脂质谱的策略示意图。(B-C) BAT缺失后循环代谢物和脂质的相关性聚类分析。(D-E) 已知BAT调控代谢物和脂质的代表性定量分析图。(F) 本研究中新鉴定的受BAT调控的代谢物和脂质的代表性定量分析图谱。
02
棕色脂肪组织相关循环代谢物和脂质的组织来源
为了确定BAT和其他器官对循环中 BAT 相关代谢物的贡献,他们建立了 12 种小鼠组织中这些代谢物和脂质的定量谱(图 2A)。随后,检测了以下物质中是否检测到这些代谢物和脂质:(1)离体培养的 iBAT 外植体的条件培养基;(2)从 iBAT 和附睾白色脂肪组织 (eWAT) 中分离的细胞外液(EF),作为对照;(3)培养的棕色脂肪细胞的条件培养基。
分析结果得出两点观察。首先,大多数与BAT相关的代谢物在BAT以外的多种组织中均有检测到。例如,BAT在寒冷刺激下会主动吸收BCAA;然而,其向血液循环中分泌BCAA的作用微乎其微。这与近期一项分析BAT动静脉血清代谢组学特征的研究结果一致。同样,BCAA衍生的代谢物,例如谷胱甘肽(GSH),也会进入血液循环,而肝脏是GSH的主要来源,且其含量最高。其次,他们发现许多与BAT相关的脂质,尤其是OHFA,在BAT中高度富集,此外还有其他脂质,例如溶血磷脂酰胆碱(LPC)、TG、磷脂酰乙醇胺(PE)和溶血磷脂酰乙醇胺(LPE)(图2 B)。在分析除BAT相关循环脂质以外的所有组织脂质类别时,观察到了类似的富集模式。虽然某些组织中富集了相同的脂质类别,但碳链长度和饱和度的分布却存在显著差异:心脏中含有高水平的OHFA,但这些OHFA主要为中链OHFA,例如C8:0和C10:0。另一方面,长链OHFA,尤其是C18,在BAT中的富集程度显著高于其他组织(图2 C)。肠道中富集了饱和的脂质LPE,而BAT中含有高度不饱和的脂质,包括C18:2、C22:5和C22:6(图2 C)。同样,在BAT中富集的PE往往含有一条单不饱和链,例如C16:1和C18:1。
为了验证这些循环脂质是否来源于BAT,他们接下来收集了体外培养的BAT组织块的条件培养基。体外培养的BAT组织块会大量分泌OHFA(例如18:0、10:0和12:0),而培养基中的TG(例如18:0/16:1/20:4、16:0/17:1/18:1和17:0/18:1/18:1)在培养12小时后经BAT组织块吸收(图2D)。接下来,按照先前报道的方法分析了BAT和eWAT来源的EF中的脂质。eWAT来源的EF主要含有TG,而BAT来源的EF中磷脂含量更高,包括PC和PE。值得注意的是,与eWAT来源的EF相比,BAT来源的EF中OHFA 16:0、18:0和18:1显著富集(图2E)。由于BAT由多种细胞类型组成,包括祖细胞和免疫细胞,他们接下来探究这些脂质是否来源于分化的棕色脂肪细胞。为此,他们分化了人棕色脂肪细胞和白色脂肪细胞作为对照,并收集了它们的条件培养基。与白色脂肪细胞相比,棕色脂肪细胞会主动释放几种脂质到培养基中,例如PC(例如C16:1/C16:1和C16:0/C16:1)、脂磷壁酸(LPE)(C16:0和C18:1)以及OHFA(C18:0和C18:1)(图2F)。综合分析发现,在 BAT-的小鼠体内循环的 OHFA 显著减少,但在 BAT 和分泌介质中高度富集,这支持了它们可能是 BAT 衍生脂质的观点。
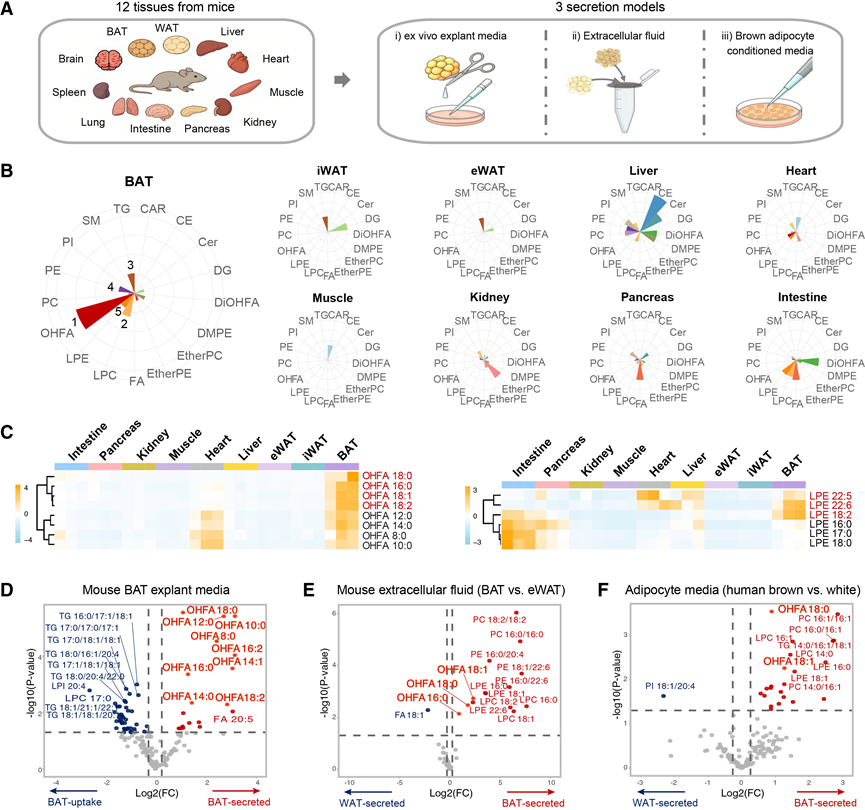
图2. 棕色脂肪组织反应性循环脂质的组织来源。
(A) 示意图。(B) 对小鼠九种组织中BAT反应性循环脂质的来源进行定位。(C) 九种组织中棕色脂肪组织反应性循环OHFA和LPE脂质种类的碳链长度和不饱和度分布。(D) 小鼠棕色脂肪组织外植体培养12小时后培养基与新鲜培养基中脂质的火山图。(E) 小鼠棕色脂肪组织和附睾白色脂肪组织中EF脂质的火山图。(F) 分化的人类棕色和白色脂肪细胞12小时条件培养基中脂质的火山图。
03
BAT连接脂质在小鼠和人类中的跨物种整合
接下来,他们研究了上述已鉴定的BAT来源的循环脂质是否也与人体内的BAT活性相关。为此,采集了84名健康青年(男性65名,女性19名,平均年龄23.2岁)的血清样本,分别在27°C和19°C轻度冷暴露1小时后(空腹状态)采集(图3A)。采血1小时后(冷暴露2小时后),使用18F -FDG PET-CT(18F -FDG-PET)的标准化摄取值(SUV)来确定受试者的BAT活性。根据SUV的中位数,将44名受试者平均分为高BAT组和低BAT组(图3B)。对于受试者分类,他们采用了中位数分割二分法,这是一种无偏统计方法,已广泛应用于基于FDG-PET的BAT研究中。SUV ≥ 3.4的截断值与先前一项研究使用的SUV > 4.0的截断值一致。他们首先采用甲醇提取法结合液相色谱-质谱联用(LC-MS)法,以乙腈为洗脱溶剂,分析了亲水性脂质。他们还采用氯仿提取法结合LC-MS法,以异丙醇为洗脱溶剂,分析了疏水性脂质。
在亲水性脂质中,他们发现寒冷暴露显著提高了血清中OHFA(包括14:0、18:0和18:1)以及脂肪酸22:6(FA 22:6)的水平(图3C)。另一方面,寒冷暴露降低了血清中脂肪酸(FA 10:1、12:0、14:1和14:2)的水平。寒冷暴露显著降低了血清中LPE(包括18:1、18:2和20:1)和溶血磷脂酰胆碱(LPC,包括15:1、18:2、14:0、18:0和18:1)的水平,而寒冷暴露则轻微提高了N-酰基乙醇胺(NAE 14:0)的水平。同样,冷暴露后血清中CAR(CAR 3:0、4:0、5:0、6:0、8:0、14:0、18:0、18:2和20:4)水平降低。对于疏水性脂质,冷暴露后血清中DG(18:1/20:4、18:1/18:1和16:0/18:2)、TG(16:0/18:0/18:0、16:0/18:1/22:1和16:0/22:0/18:1)和PC(18:1/18:2和18:0/18:2)水平降低。相比之下,PE (16:0/22:6)、磷脂酰肌醇 (PI) (18:0/22:6)、LPE-N (16:0/22:6) 和 DMPE (16:0/22:6) 在寒冷暴露下均升高(图 3D)。随后,他们探究了这些脂质的温度依赖性变化与BAT活性之间的关联程度。为此,他们分析了高 BAT 组和低 BAT 组中寒冷诱导的血清脂质变化(图 3E)。寒冷诱导的 OHFA 18:0 升高在高 BAT 组中显著,但在低 BAT 组中不显著。同样,寒冷暴露后,NAE 14:0 水平在高 BAT 组中选择性升高。另一方面,高 BAT 组的血清 LPE(20:5、22:4、22:5 和 22:6)水平在寒冷暴露下显著降低,但在低 BAT 组中未观察到这种降低(图 3E)。
为了整合所有脂质数据集,他们将人类与BAT活性相关的循环脂质与小鼠中鉴定的脂质进行了比较。虽然与BAT完整的对照组相比,BAT缺陷小鼠血清中53种脂质含量降低,但OHFA 18:0是两种物种中均存在的与BAT相关的常见脂质(图3F)。随后,基于三分位数(低、中、高,每组n =28)进行了亚组分析,以确保各组样本量相等。发现冷诱导的OHFA 18:0与BAT活性之间存在显著的正相关性(图3G)。在SUV < 1的个体中,冷诱导的OHFA 18:0存在显著的个体间差异,这提示在BAT活性极低的个体中,其他组织可能补偿了循环中的3-OHSA。小鼠和人类血清脂质谱的总体保守性有限,这可能反映了物种特异性的脂质代谢、冷暴露方案、饮食和体型差异,以及寒战产热与非寒战产热对冷适应贡献的差异。尽管如此,在小鼠和人类中,冷暴露均以BAT依赖的方式持续升高OHFA 18:0,这代表了与冷诱导的BAT活性相关的循环脂质种类,且这种关联跨越多个物种。
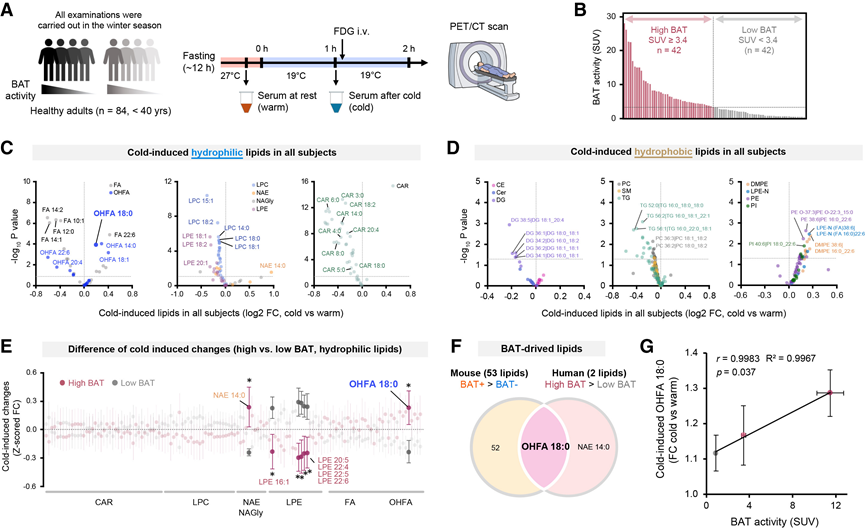
图3. 小鼠和人类中BAT连接脂质的跨物种整合。
(A) 人类队列样本信息。(B) 将84名BAT活性各异的健康成年人分为高BAT组和低BAT组。(C) 火山图显示了所有受试者中冷诱导的亲水性脂质变化。(D) 所有受试者中冷诱导疏水性脂质变化的火山图。(E) 高棕色脂肪组织组和低棕色脂肪组织组亲水性脂质在冷刺激下的变化差异。(F) 高 BAT 人类与低 BAT 人类中升高的脂质,以及 BAT 完整对照小鼠与 BAT 切除小鼠中升高的脂质的重叠分析。(G) 棕色脂肪组织 (BAT) 中 FDG 摄取与循环 OHFA 18:0 中冷诱导的相关性。
04
3-OHSA 是一种冷诱导产生的棕色脂肪组织衍生脂质,可释放到血液循环中
鉴于OHFA 18:0在BAT来源脂质中的独特特征,他们接下来旨在确定OHFA中的羟基的位置。为此,将OHFA 18:0的保留时间和MS/MS谱图与标准品(2-羟基硬脂酸、3-羟基硬脂酸、9-羟基硬脂酸和12-羟基硬脂酸)进行了比较。分析结果显示,OHFA 18:0与3-羟基硬脂酸(3-OHSA或3-OHFA 18:0)完全匹配(图4A)。
3-OHFA通过线粒体中的活性脂肪酸氧化(FAO)生成(图4B)。在寒冷刺激下,硬脂酸(C18:0)激活为硬脂酰辅酶A(CoA),并通过肉碱穿梭系统转运至线粒体基质。每个β-氧化循环均由以下步骤完成:(1)酰基辅酶A脱氢酶(例如ACADL)催化生成反式-2-烯酰辅酶A;(2)烯酰辅酶A水合酶(例如ECH)催化生成L-3-羟基硬脂酰辅酶A(即直接的3-OH中间体);(3)L-3-羟酰基辅酶A脱氢酶(例如HADH)催化NAD +依赖性氧化生成3-酮酰基辅酶A;(4)硫解酶(例如ACAA2和HADHB)催化缩短酰基链。在寒冷刺激下,FAO通量时,脱氢酶步骤可能暂时成为限速步骤(例如,局部NAD+/NADH或CoA限制),导致L-3-羟基硬脂酰辅酶A(L-3-OHSA)的积累。该L-3-OHSA可由线粒体酰基辅酶A硫酯酶转化,释放游离酸3-OHSA,或由酯交换为3-羟基酰基肉碱以进行输出。与此一致的是,BAT中所有四种FAO酶的mRNA表达水平均高于其他九种组织。对十二种组织中3-OHFA的定量分析发现,BAT中3-OHFA的含量最高,包括3-OHFA 18:0,尤其是在寒冷刺激后,但是心脏在室温和正常体温下也会积累一些3-OHFA(例如,中链C8-C12)。
在室温下,BAT中3-OHFA 18:0(3-OHSA)的含量仅次于3-OHFA 18:1,位列第二;然而,在冷暴露后,其含量显著增加,而在适应高温环境后则有所下降(图4C)。接下来,他们使用化学合成的标准品绘制了标准曲线,并定量分析了组织和血清中3-OHSA的绝对浓度。值得注意的是,BAT中3-OHSA的组织浓度最高,约为其他代谢器官的20倍,并且表现出最强的温度依赖性上调(图4D)。由于在分化的鼠和人棕色脂肪细胞中,去甲肾上腺素(NE)处理后培养基中3-OHSA的释放量显著增加(图4E),因此BAT中冷诱导的变化是由NE信号通路介导的。在循环系统中,3-OHSA 是最丰富的 3-OHFA 种类:经过 3 天的寒冷暴露后,小鼠血清中 3-OHSA 的水平显著高于适应常温的小鼠,而其他 OHFA 种类在饱食状态下并未表现出这种变化趋势(图 4F)。对小鼠血清进行绝对定量分析发现,在饱食状态下,经过 3 天的寒冷暴露后,3-OHSA 的浓度达到约 0.5 μM(图 4G)。值得注意的是,血清中的 3-OHSA 在冻融循环后不稳定,因此,冷冻血清样本中 3-OHSA 的绝对浓度低于新鲜制备样本中的浓度。对独立队列的分析一致表明,经过 3 小时或更长时间的寒冷暴露后,血清中 3-OHSA 的水平会升高,但这种诱导作用在 BAT−小鼠中抑制(图 4H)。小鼠在TN下适应3天后,血清3-OHSA水平下降,并在1周后进一步下降至基线水平。常温适应1周后,BAT+小鼠和BAT−小鼠的血清3-OHSA水平无差异。在人血清中,3-OHSA的绝对定量分析显示,寒冷暴露显著提高了高BAT个体的3-OHSA浓度,而低BAT个体则未观察到这种寒冷诱导的变化(图4 I)。与小鼠的结果一致,两组在温暖条件下的基线3-OHSA浓度无差异。这些结果表明,3-OHSA是一种寒冷诱导的脂质,其诱导与BAT活性相关,而其在常温下的基础水平无法区分高BAT活性和低BAT活性的个体。
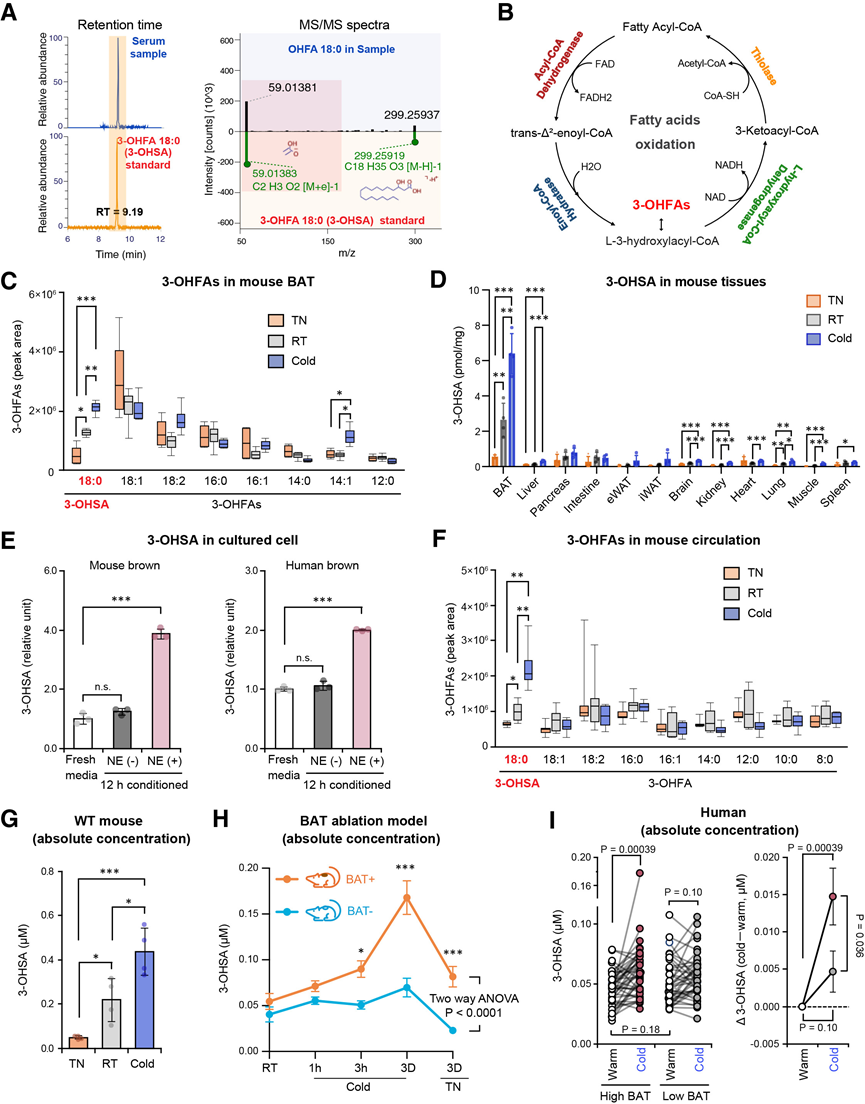
图4. 3-OHSA 是一种冷诱导的棕色脂肪组织衍生脂质,可释放到血液循环中。
(A) 通过将保留时间和 MS/MS 光谱与化学合成的标准品进行匹配,确定羟基硬脂酸中羟基的位置。(B) FAO示意图。参与FAO四个步骤的酶用四种不同的颜色突出显示。(C) TN(2周)、RT和冷(3天)条件下棕色脂肪组织中3-OHFA的相对水平。(D) 小鼠在TN(4周)、RT和寒冷(3天)条件下,指定组织中3-OHSA的绝对浓度。(E) 小鼠和人棕色脂肪细胞新鲜培养基和培养12小时后的培养基中3-OHSA的定量水平。(F) TN(2周)、RT和寒冷(3天)条件下循环3-OHFA的相对水平。(G) 小鼠暴露于高温(4周)、室温和寒冷(3天)后血清中3-OHSA的绝对浓度。(H) 在自由摄食条件下,BAT 缺失小鼠及其同窝对照小鼠在适应寒冷(1 小时、3 小时和 3 天)和高温(3 天)过程中 3-OHSA 的绝对浓度。(I) 健康成年人在温暖(27°C)和寒冷(19°C)条件下血清中3-OHSA的水平。
05
肝脏中3 -OHSA线粒体H2O2的产生
3-OHSA 仅仅是寒冷诱导的BAT活性的循环指标,还是具有任何生物学作用。由于 3-OHSA 是活性FAO的副产物,而非通过特定的酶促途径产生,因此靶向 ACADL 或 ECH 会破坏整个 FAO 系统。作为一种替代方法,他们研究了 BAT缺失在室温和寒冷条件下对肝功能的影响程度。BAT缺失导致肝脏中氧化标志物显著增加,包括脂质过氧化[以丙二醛 (MDA) 衡量和蛋白质氧化(以蛋白质羰基含量衡量)](图 5A)。接下来,他们探究 BAT 来源的 3-OHSA 是否是调节肝脏氧化应激的 BAT 来源介质的一部分。有趣的是,向从肝脏分离的线粒体中添加3-OHSA可显著降低线粒体H2O2的生成速率,其程度与FCCP相当(图5B)。值得注意的是,这种降低呈剂量依赖性,半数有效浓度(EC50)为0.51 μM,该浓度在生理循环浓度范围内(图5C)。随后,他们通过检测3-OHSA在包括肝脏、骨骼肌、肾脏和BAT在内的代谢器官中的作用,评估了3-OHSA降低H2O2生成速率的组织特异性(图5D)。与溶剂对照组相比,3-OHSA显著降低了肝脏和肾脏中的线粒体H2O2生成速率(图5E)。这种作用并非由于肝脏线粒体含量的变化所致。3-OHSA也能降低肌肉中线粒体H2O2的生成速率,尽管其作用程度低于肝脏,而对棕色脂肪组织(BAT)线粒体则无影响。此外,3-OHSA还能增强线粒体呼吸作用;然而,影响线粒体呼吸作用所需的浓度远高于降低线粒体H2O2生成所需的浓度,其EC50约为5.5 μM。这些结果表明,尽管超生理浓度的3-OHSA可以像其他脂肪酸一样增强线粒体呼吸作用,但其生理作用更可能是降低线粒体活性氧(ROS)的生成。
接下来,他们探究了线粒体H2O2生成减少的这种作用在多大程度上是3-OHSA所特有的。为此,将其活性与三类对照进行比较:非羟基化脂肪酸(硬脂酸、棕榈酸和油酸)、不同碳链长度的3-OHFA(12:0、14:0和16:0)以及不同羟基位置的OHFA(2-OHSA、12-OHSA和9-OHSA)(图5F)。这些脂质种类与BAT活性无关,因为BAT切除并不影响其体内循环水平。鉴于其EC50值和在循环中观察到的生理浓度范围,他们使用0.5μM的浓度进行检测,并以3-OHSA作为对照,观察到以下结果:首先,3-OHSA降低H2O2水平的作用显著强于非羟基化脂肪酸(图5G)。其次,该效应的大小取决于脂肪酸链长,其顺序为 3-OHFA 18:0 (3-OHSA) > 16:0 > 14:0 > 12:0(图 5H)。最后,羟基的位置至关重要,3-OHSA的效应强于 12-OHSA、9-OHSA 或 2-OHSA(图 5I)。这些结果表明,3-OHSA以一种依赖于羟基的存在和位置以及脂肪酸链长的方式降低肝脏线粒体H2O2的产生。
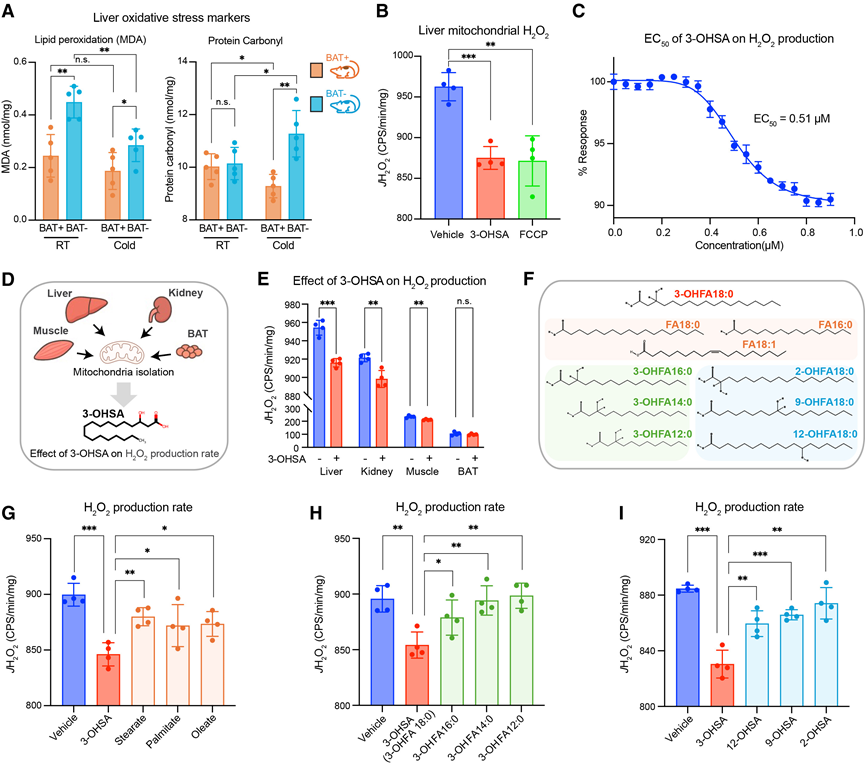
图5. 3-OHSA降低肝脏线粒体ROS的产生。
(A) BAT缺失小鼠及其同窝对照小鼠暴露于室温或低温(3天)后肝脏氧化应激标志物的变化。(B-C) 用载体(乙醇)、3-羟基硬脂酸(3-OHSA)或FCCP刺激肝线粒体产生H2O2的速率和EC50值。(D) 示意图。(E) 3-OHSA 对指定器官分离线粒体中 H2O2生成速率的影响。(F) 3-OHSA 和其他脂质种类对肝线粒体 H2O2生成的功能特异性。(G) 定量分析肝脏线粒体在 0.5 μM 浓度下对载体、3-OHSA 或非羟基化脂肪酸的H2O2生成速率的反应。(H) 定量分析肝脏线粒体在 0.5 μM 浓度下对载体、3-OHSA 或所示 3-OHFA 的反应中H2O2的生成速率。(I) 定量分析肝脏线粒体在 0.5 μM 浓度下,对载体、3-OHSA 或具有不同羟基位置的 OHFA 的反应中H2O2 的生成速率。
06
3-OHSA降低肝脏线粒体膜电位和氧化应激
接下来,他们研究了3-OHSA降低肝脏ROS生成的潜在机制。由于线粒体ROS生成通常伴随着线粒体去极化程度的降低,他们检测了3-OHSA是否会改变线粒体膜电位(ΔΨm)。为此,他们从肝脏中分离出线粒体,并在苹果酸、谷氨酸、丙酮酸和琥珀酸存在的情况下,使用番红染料测量了ΔΨm的极化速率。需要注意的是,番红染料强度的降低代表膜去极化(图6A)。正如预期的那样,化学解偶联剂FCCP显著降低了ΔΨm的极化速率。出乎意料的是,3-OHSA也以类似的方式降低了ΔΨm的极化速率,其程度与FCCP相当(图6A)。这种效应呈剂量依赖性,EC50为0.57 μM(图 6B)。3-OHSA 诱导的 ΔΨm 去极化的剂量反应关系与其对线粒体H2O2生成的影响密切相关,且在循环中 3-OHSA 的生理浓度范围内。随后,他们通过比较 3-OHSA 与非羟基化脂肪酸(硬脂酸、棕榈酸和油酸)、短碳链 3-OHFA(12:0 和 14:0)以及具有不同羟基位置的 OHFA(2-OHSA)的效应,评估了 3-OHSA 对 ΔΨm 极化速率的特异性。与对线粒体H₂O₂生成的影响类似,0.5 μM的3- OHSA比相同浓度下测试的其他脂质更有效,尽管某些脂质,例如油酸和棕榈酸,也能降低ΔΨm,但效力较弱(图6C)。这些结果表明,羟基的位置和脂肪酸链的长度对于3-OHFA降低ΔΨm极化的作用至关重要。此外,3-OHSA还能增强线粒体状态4呼吸并降低ATP合成速率,从而降低P/O比值,但这种作用需要更高的剂量。
为了研究体内代谢后果,他们接下来以8 mg/kg/天的剂量,腹腔注射BSA偶联的3-OHSA给高脂饮食诱导的肥胖(DIO)小鼠,持续2周。作为对照,他们使用了BSA偶联的硬脂酸盐和未偶联的BSA(溶剂)。首先,采用绝对定量法验证了3-OHSA处理使循环中3-OHSA水平升高至0.43 ± 0.04 μM,与冷暴露后观察到的水平相当(图6D)。3-OHSA给药导致肝脏中3-OHSA水平升高约3倍,略高于生理范围(图6E)。另一方面,在心脏或骨骼肌中未观察到这种诱导作用,虽然在肾脏中发现轻微升高。经过两周的治疗,接受载体、3-OHSA 或硬脂酸盐治疗的小鼠体重无显著差异(图 6F)。各治疗组之间的脂肪量、瘦体重和组织重量也无显著差异。然而,3-OHSA 降低了 DIO 小鼠的肝脏氧化应激:与载体组相比,3-OHSA 治疗组小鼠肝脏中氧化应激标志物水平显著降低,包括脂质过氧化(MDA)(图 6G)和蛋白质氧化(图 6H)。另一方面,相同剂量的硬脂酸盐治疗未观察到肝脏氧化还原状态的变化。随后,他们计算了 BAT 切除、冷暴露和 3-OHSA 治疗后肝脏氧化标志物 MDA 的相对变化,并以室温下 BAT 保留小鼠作为参考。分析结果显示,在BAT+(对照)小鼠中,冷暴露显著降低了肝脏氧化应激水平24%,而BAT缺失则使室温下的氧化应激水平升高了83%。在BAT缺失的小鼠中,冷暴露引起的肝脏氧化应激水平降低发生显著消除。重要的是,3-OHSA治疗显著降低了氧化应激水平28%,与冷暴露后观察到的结果几乎相同(图6I)。
最后,他们研究了3-OHSA如何降低肝脏线粒体膜电位。腺嘌呤核苷酸转位酶(ANT)与调节线粒体膜电位有关,从而降低ROS的产生。ANT有三种形式(ANT1、ANT2和ANT3),其中ANT2是主要形式,在肝脏和肾脏中高表达。鉴于肝脏是3-OHSA的主要靶器官,他们检测了ANT2在多大程度上介导了3-OHSA对肝脏线粒体ΔΨm极化速率的影响。此外,还检测了3-OHSA是否通过线粒体通透性转换孔(mPTP)发挥作用,mPTP受亲环蛋白D(CypD)调控,并促进质子泄漏。为此,他们使用 CypD 抑制剂环孢素 A (CsA) 急性抑制 mPTP,并使用其抑制剂羧基阿曲西苷 (CATR) 和邦克列酸 (BA) 阻断 ANT(图6J)。向肝源性线粒体中添加线粒体底物(苹果酸、丙酮酸、谷氨酸和琥珀酸)会导致 ΔΨm 极化,而添加 0.5 μM 的 3-OHSA 则能显著降低极化速率(图 6K)。值得注意的是,这种效应是可逆的,因为添加 CATR 可以恢复 ΔΨm。结果表明,3-OHSA 对肝线粒体的作用并非毒性非特异性效应;相反,它发挥着特定的生物学作用来调节ΔΨm。剂量滴定研究进一步表明,低剂量 (0.1–5 μM) 的 CATR 以剂量依赖的方式阻断 3-OHSA 对 H2O2生成的影响,即使在没有 3-OHSA 的情况下,1μM 的 CATR 也不会影响基础线粒体H2O2生成。与此一致的是,添加 BA 显著地(尽管只是部分地)逆转了 3-OHSA 诱导的 ΔΨm 极化率降低(图 6L)。相比之下,CsA 并不能恢复 3-OHSA 的作用。随后,他们检测了其他脂质,例如 2-OHSA 和 3OHFA12:0,是否具有类似的机制;然而,使用 CATR 或 BA 抑制 ANT 并未改变 2-OHSA 和 3OHFA12:0 对降低 ΔΨm 的影响,表明这些脂质对线粒体的作用独立于 ANT2。作为一种补充方法,他们使用小干扰 RNA (siRNA) 在原代肝细胞中急性敲低了 ANT2。与药理学抑制结果一致,siRNA介导的ANT2基因敲低部分但显著地减弱了3-OHSA诱导的ΔΨm变化。这些结果表明,3-OHSA在降低肝脏ΔΨm和氧化应激方面具有独特的作用,并且这种作用至少部分是通过ANT2介导的,可能还涉及其他机制。
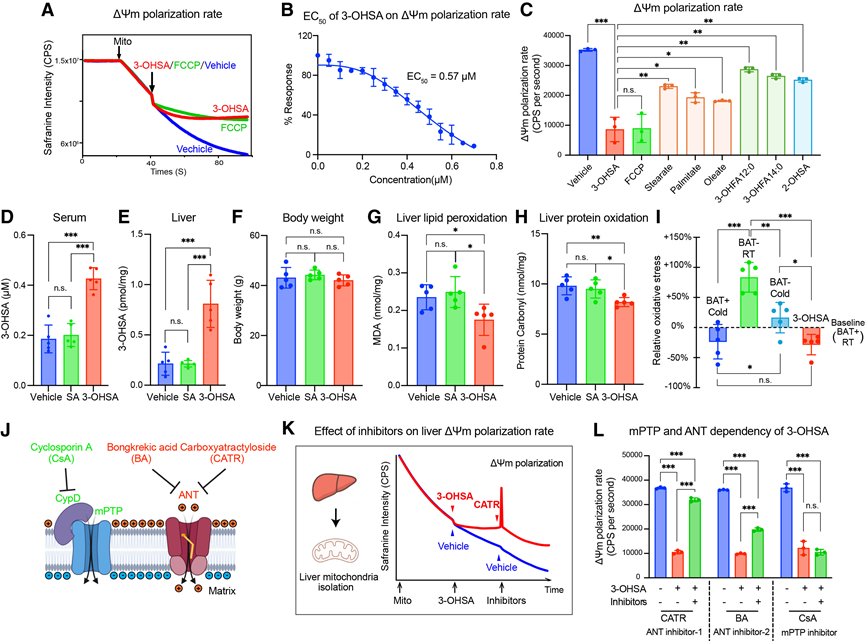
图6. 3-OHSA 降低肝线粒体膜电位和氧化应激。
(A) 肝脏线粒体膜电位(ΔΨm)极化对载体、3-OHSA 或 FCCP 的代表性反应轨迹。(B) 3-OHSA 对肝脏 ΔΨm 极化率的EC50值。(C) 3-OHSA 对肝脏 ΔΨm 极化率的作用特异性。(D-E) 高脂饮食诱导肥胖(DIO)小鼠补充载体、硬脂酸或 3-OHSA 2 周后,血清和肝脏中 3-OHSA 的绝对浓度。(F) 补充载体、硬脂酸或 3-OHSA 两周后小鼠的体重。(G) 补充载体、硬脂酸或 3-OHSA 2 周后,小鼠肝脏中脂质氧化应激标志物 MDA 的含量。(H) 补充载体、硬脂酸或 3-OHSA 2 周后,小鼠肝脏中蛋白质氧化标志物羰基的水平。(I) 各组肝脏氧化应激标志物(MDA)的百分比变化。(J) 靶向 3-OHSA 作用的潜在介质通道的抑制剂示意图。(K) 肝脏 ΔΨm 极化对 3-OHSA、CATR 或载体(用箭头指示)的代表性反应轨迹。(L) ANT抑制剂BA(20 μM)和CATR(1 μM),或mPTP抑制剂CsA(1 μM)对3-OHSA诱导的肝脏ΔΨm极化率的影响。
+ + + + + + + + + + +
结 论
本研究对BAT缺失小鼠和BAT活性不同的人类队列进行了全面的血清代谢组学和脂质组学分析,以阐明BAT活性如何影响循环代谢组。通过整合血清、组织、细胞外液和条件培养基的数据集,构建了与BAT相关的循环分子特征。分析结果表明,BAT在清除循环支链氨基酸和甘油三酯方面发挥着关键作用。本研究还发现了一种冷诱导代谢物——3-OHSA,它主要由BAT产生并释放到血液循环中。3-OHSA可作为冷激活BAT的循环标志物,作用于肝脏,降低ΔΨm和活性氧的产生,从而限制氧化应激。这项工作为识别 BAT 衍生的介质提供了一个框架,并揭示了 BAT-肝脏轴,该轴协调对代谢压力的适应。
+ + + + +