
 English
人脸为什么千人千面?Nature Genetics 多组学图谱把答案指向胚胎早期的增强子
一句话看懂:2026 年 10 月 Nature Genetics 上线的人类胚胎面部多组学图谱,把「基因变异」和「长相差异」之间那段落了很久的空缺补上了——决定脸型大局的不是成年后的软组织,而是孕后 6 到 12 周里一群早期外胚间充质祖细胞,以及只在特定时间、特定位置、特定细胞里打开的增强子。 更反直觉的是:连外周神经都参与了上颌骨的塑形;而唇腭裂的遗传信号,主力竟然不在间充质,而在上皮。
一、先把结论摆出来
同卵双胞胎的脸高度相似,家族成员的轮廓一眼能认出来,这件事说明 face shape 的遗传基础相当扎实。过去十几年,全基因组关联研究(GWAS)已经找出成千上万个与鼻宽、下颌形状、眼距等 60 多项面部性状相关的位点。但一个尴尬的事实始终没解决:超过九成的关联位点落在非编码区,它们到底通过哪种细胞、在哪个发育窗口、以什么方式改变了脸?
这篇由瑞典卡罗林斯卡学院与维也纳医科大学等团队合作完成的研究,给出的回答可以拆成四条:
时间窗口前移
:细胞状态对面部形态的影响力随发育递减。越早期的间充质祖细胞,越能影响全脸尺度的大性状;越到分化后期,影响越局限于局部小性状。 作用载体是增强子
:不是基因编码区被改写,而是候选顺式调控元件(cCRE)的开放程度、时空特异性和靶基因连接发生了群体层面的差异。 位置密码真实存在
:用空间自相关筛出的 396 个「空间基因」,其表达位置与邻近 GWAS 位点的性状特异性高度吻合,这解释了为什么某个变异只改鼻子、不改下巴。 还有非骨骼玩家
:外周神经通过 Neuregulin、Pleiotrophin 等信号微调上颌骨;唇腭裂风险则集中在一群表达 IRF6 与 GRHL3 的上皮细胞。
一句话概括这项工作的分量:它不是又画了一张细胞图谱,而是把细胞类型、空间位置、开放染色质、增强子靶基因、GWAS 性状、小鼠在体验证六层信息串成了一条可检验的因果链。
二、研究怎么做的:给胚胎人脸做一次单细胞级「三维普查」
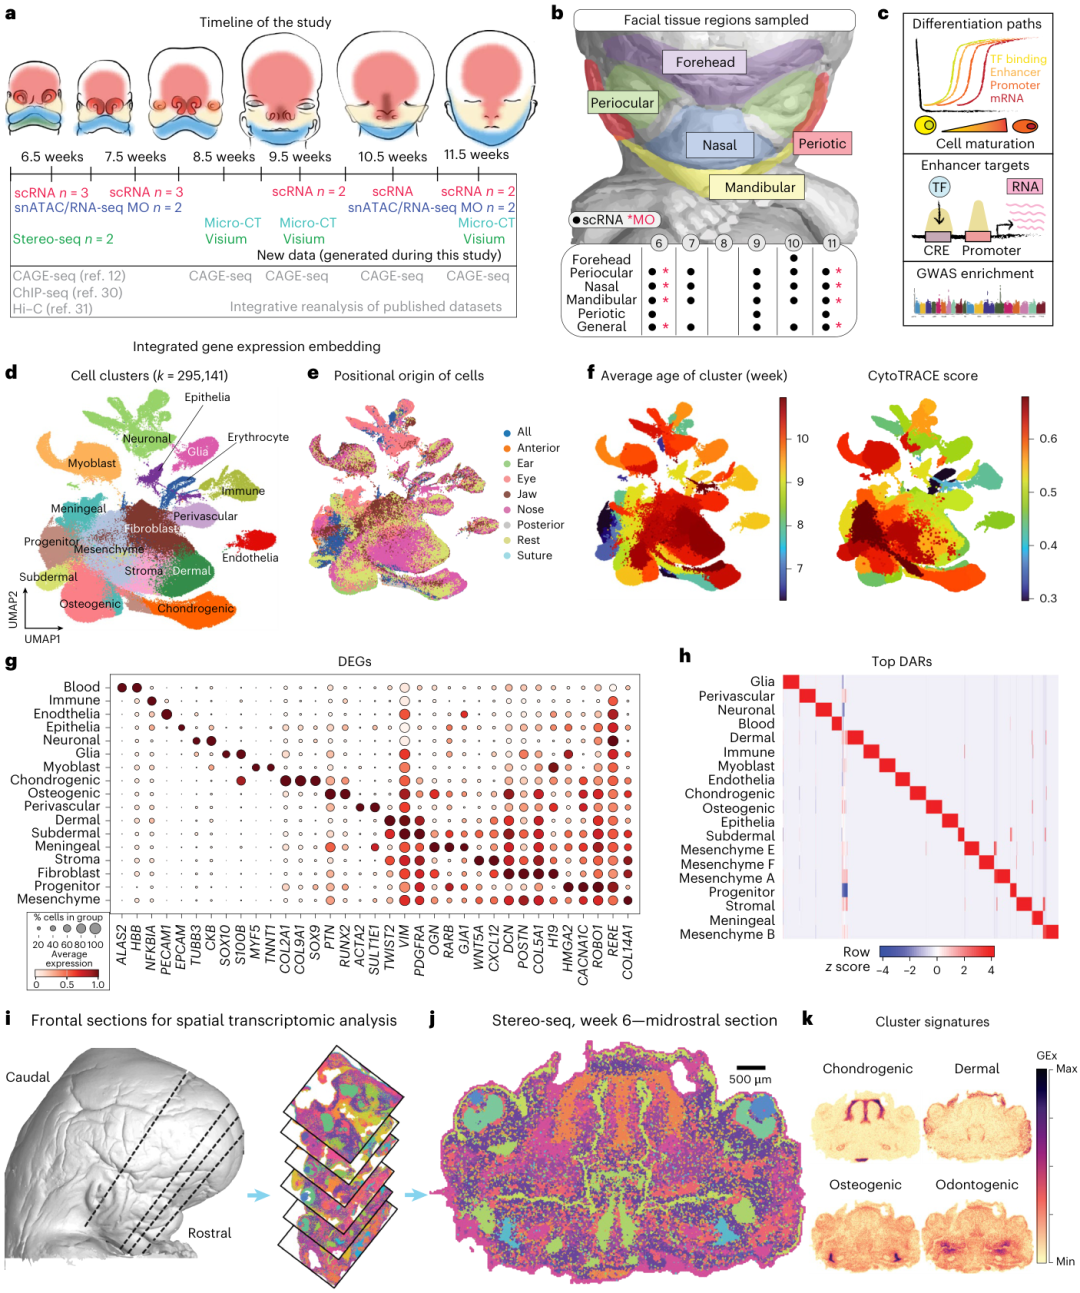
▲ 图1 人类颅面发育的多模态单细胞图谱:采样时间轴、分区策略、细胞聚类与 Stereo-seq 空间定位(改编自原文 Fig. 1)
先看设计。人类面部主要源自颅神经嵴细胞(CNCC)与中胚层祖细胞,它们分化出软骨、骨、肌肉、脂肪、真皮、血管与神经。问题在于:这些间充质亚群的转录组高度重叠、动态又强,单靠一支 scRNA-seq 根本分不清「这是不同的细胞类型」还是「同一类细胞长在了不同位置」。
研究团队的方案是把三种分辨率叠在一起:
样本与时间轴
覆盖孕后第 6 至 12 周(PCW)这一颅面形态建成的关键窗口,胚胎经显微解剖分成额、鼻、上颌、下颌、眼周、耳周等解剖亚区后分别建库。 scRNA-seq:11 个胚胎,30 个样本。 配对 snRNA-seq 加 snATAC-seq 多组学:4 个个体,12 个样本。 Stereo-seq 空间转录组:2 个约 6.5 周胚胎,8 张额状切面;另用 10x Visium 做矢状与额状切面补充。 micro-CT 提供同一时期的三维骨骼形态参照。
数据整合与注释
用基因表达构建统一 UMAP 嵌入,注释出 17 个粗粒度簇、56 个细粒度细胞状态。 CytoTRACE 评分与细胞簇平均胎龄显著负相关(r = −0.5867,P = 2.015 × 10⁻⁶),说明多能性随发育递减;软骨谱系最早出现,与神经嵴细胞优先启动软骨发生程序的既有认识一致。 用 Stereo-seq 把每个簇「放回」它在面部的真实位置,解决了间充质亚群因取样部位不同而产生的表达漂移。
调控层
用 Signac 的 LinkPeaks 把开放染色质峰与基因表达做相关性配对,整合已发表的 H3K27ac、CAGE(eRNA)、Hi-C 与颅面增强子数据。 论文讨论部分提到,最终构建了一张包含约 5 万个 cCRE 的区域分辨、细胞类型分辨的「峰—基因」连接图谱。
这一步的关键价值在于:后续所有关于「哪个变异影响哪块脸」的推断,都有了一个可以落地的中间层——不是拿 SNP 直接猜基因,而是 SNP → 增强子开放 → 靶基因表达 → 特定细胞状态 → 特定面部区域。
三、找到「位置密码」:396 个空间基因,划出 9 个面部结构域
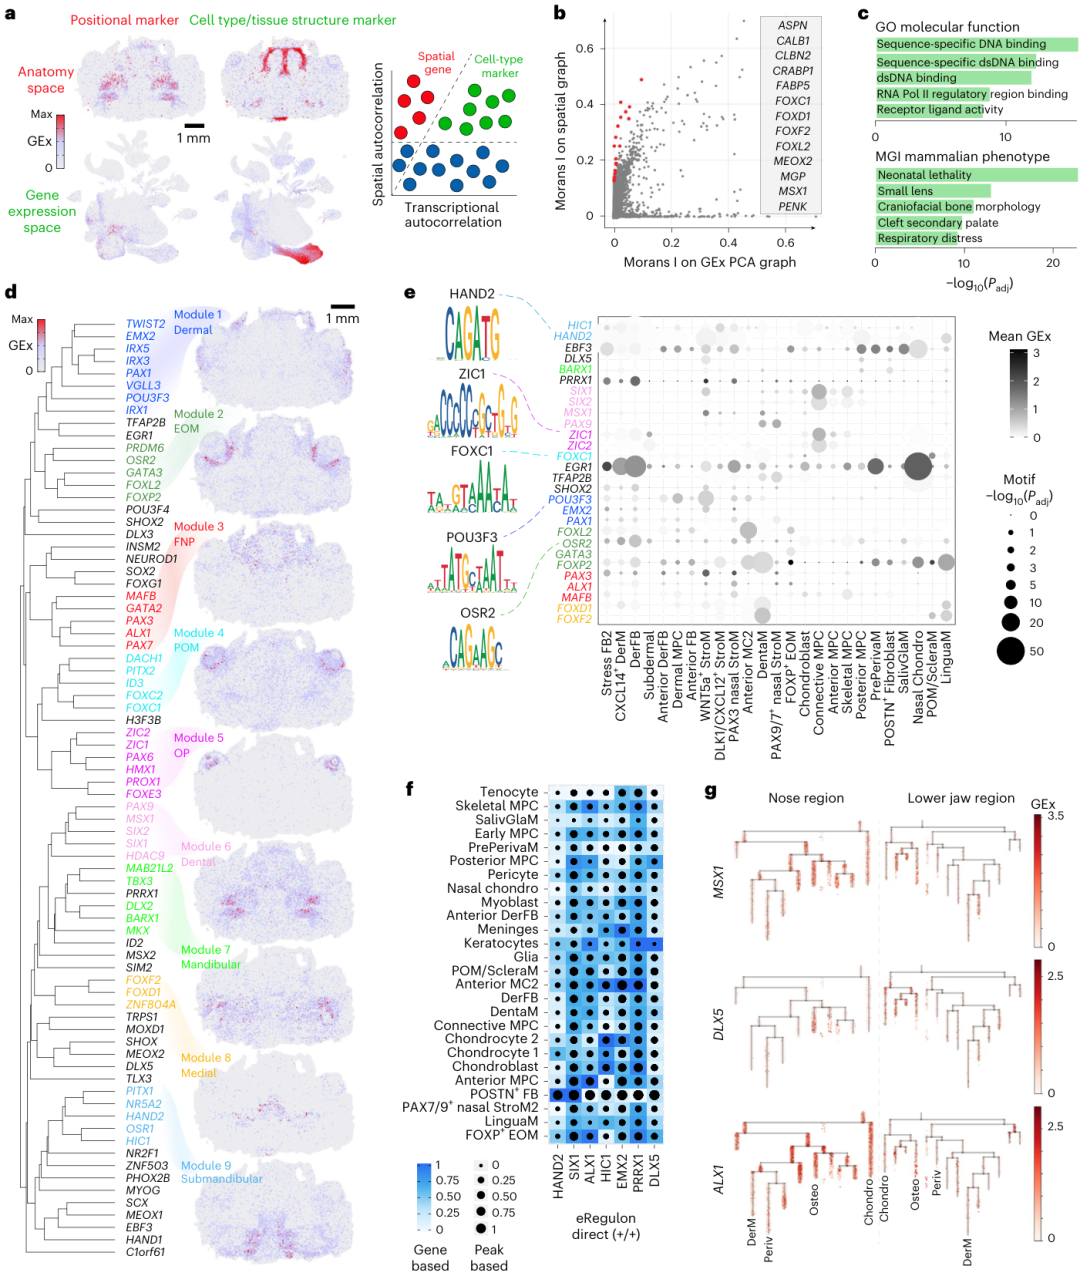
▲ 图2 发育中人脸的位置密码:Moran's I 空间自相关筛选、空间基因富集、转录因子模块与增强子驱动的调控网络(改编自原文 Fig. 2)
这一节是整篇论文方法学上最值得细读的地方。
研究者想找的不是「在鼻子里高表达」的基因,而是具有位置特异、但不一定具有细胞类型特异的基因——也就是类似 Hox code 那种「地址标签」。做法是同时计算每个基因在两种空间里的 Moran's I 自相关:
解剖空间:在 Stereo-seq 切片上,相邻位置的表达值是否相似。 转录空间:在 PCA 或 UMAP 表达空间里,相邻细胞的表达值是否相似。
一个基因如果在解剖空间自相关高、在转录空间自相关低,说明它的表达由「长在哪」决定,而不是由「是什么细胞」决定。设定空间 Moran's I > 0.1 且空间与转录自相关比值 ≥ 5 的阈值后,筛出 396 个空间基因。
结果很有意思:
基因集富集分析里,排在最前的分子功能是转录因子活性;表型层面则显著富集颅面疾病。也就是说,这 396 个基因既像「布局指令」,又恰好是致畸敏感的那一批。 对空间转录因子做共表达层次聚类,得到 9 个模块,分别标记前真皮、形成中的眼睑、鼻区、眼区、晶状体、牙区、下面部、舌表面与颌下区。 这些转录因子的结合基序,在多种间充质细胞类型的差异开放区域(DAR)中显著富集;SCENIC+ 推断的增强子驱动基因调控网络(eGRN)进一步显示,模块活性在间充质簇中广泛存在。 鼻与下颌的拟时序轨迹中,ALX1、DLX5、MSX1 等已知模式形成基因呈现区域特异的表达动力学。
为什么这一步重要:它给「变异的性状特异性」提供了机制解释。如果一个增强子只在鼻区的祖细胞里开放,那么落在它里面的常见变异,理论上就更可能只改鼻形。下一节的统计结果正是来验证这件事。
四、把 GWAS 位点放回细胞:越早期的祖细胞,管得越「宽」
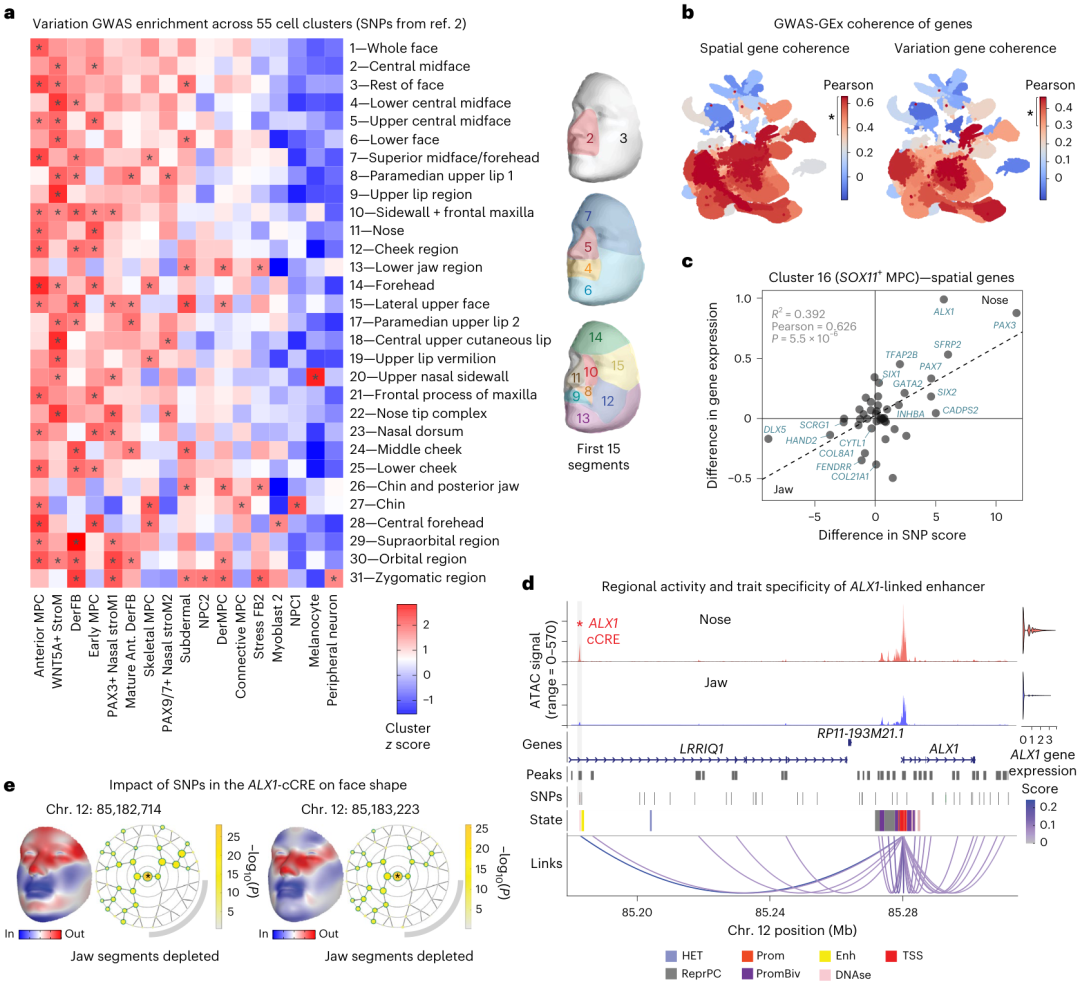
▲ 图4 面部性状的细胞基础:性状富集热图、空间基因表达与 SNP 性状特异性的一致性、ALX1 增强子的区域活性(改编自原文 Fig. 4)
团队把大规模面部 GWAS(White 等,2021,> 60 项面部性状)的显著位点叠加到自己的细胞图谱上,用了一个距离加权的性状富集分数:由于绝大多数 SNP 在非编码区、且增强子与启动子的互作概率随基因组距离下降,他们按「靠近显著 SNP 的基因在特定细胞类型中的表达量」做距离加权聚合,得到每个细胞簇对每项性状的富集 z 分数。
三条结论层层递进:
第一,影响力随时间衰减。 在 30 项主要性状里,间充质祖细胞对前 19 项全局大尺度性状的富集显著高于其他细胞类型;而更次要、更局部的性状,富集出现在分化程度更高的细胞中。这在胚胎学上说得通:早期间充质凝集与软骨雏形为后续的软骨内成骨、膜内成骨提供了模板,哪怕软骨颅早已退化,它的几何形状仍长期影响骨形态。
第二,表达位置能预测变异的效应位置。 研究者构造「鼻—颌评分」,对比 SNP 显著性与邻近基因表达在鼻与颌之间的偏向。若纳入所有基因,相关性很弱甚至没有;但只看那 396 个空间基因,或只看与含变异峰相连的基因时,几乎所有细胞类型都出现强正相关。在 PCW6.5 富集的 SOX11 阳性间充质祖细胞(cluster 16)中,相关性达到 r = 0.626,R² = 0.392,P = 5.5 × 10⁻⁶。
第三,个案能落到具体碱基。 ALX1 是常染色体隐性额鼻发育不良的致病基因,本身标记上面中部空间域。研究者在 LRRIQ1 内含子中、ALX1 上游约 80 kb 处找到一个鼻区特异开放、带增强子标记的 cCRE,其中携带与上面部性状相关的变异。区域特异的 DAR 与 100 多个空间基因相连;结合千人基因组数据的分析提示,关键发育基因专属增强子内的变异,很可能是现代人面部多样性产生的热点。
五、增强子才是「执行董事」:三个能落地验证的案例
案例一:PAX1-cCRE,删掉 276 bp,小鼠颅骨就出问题
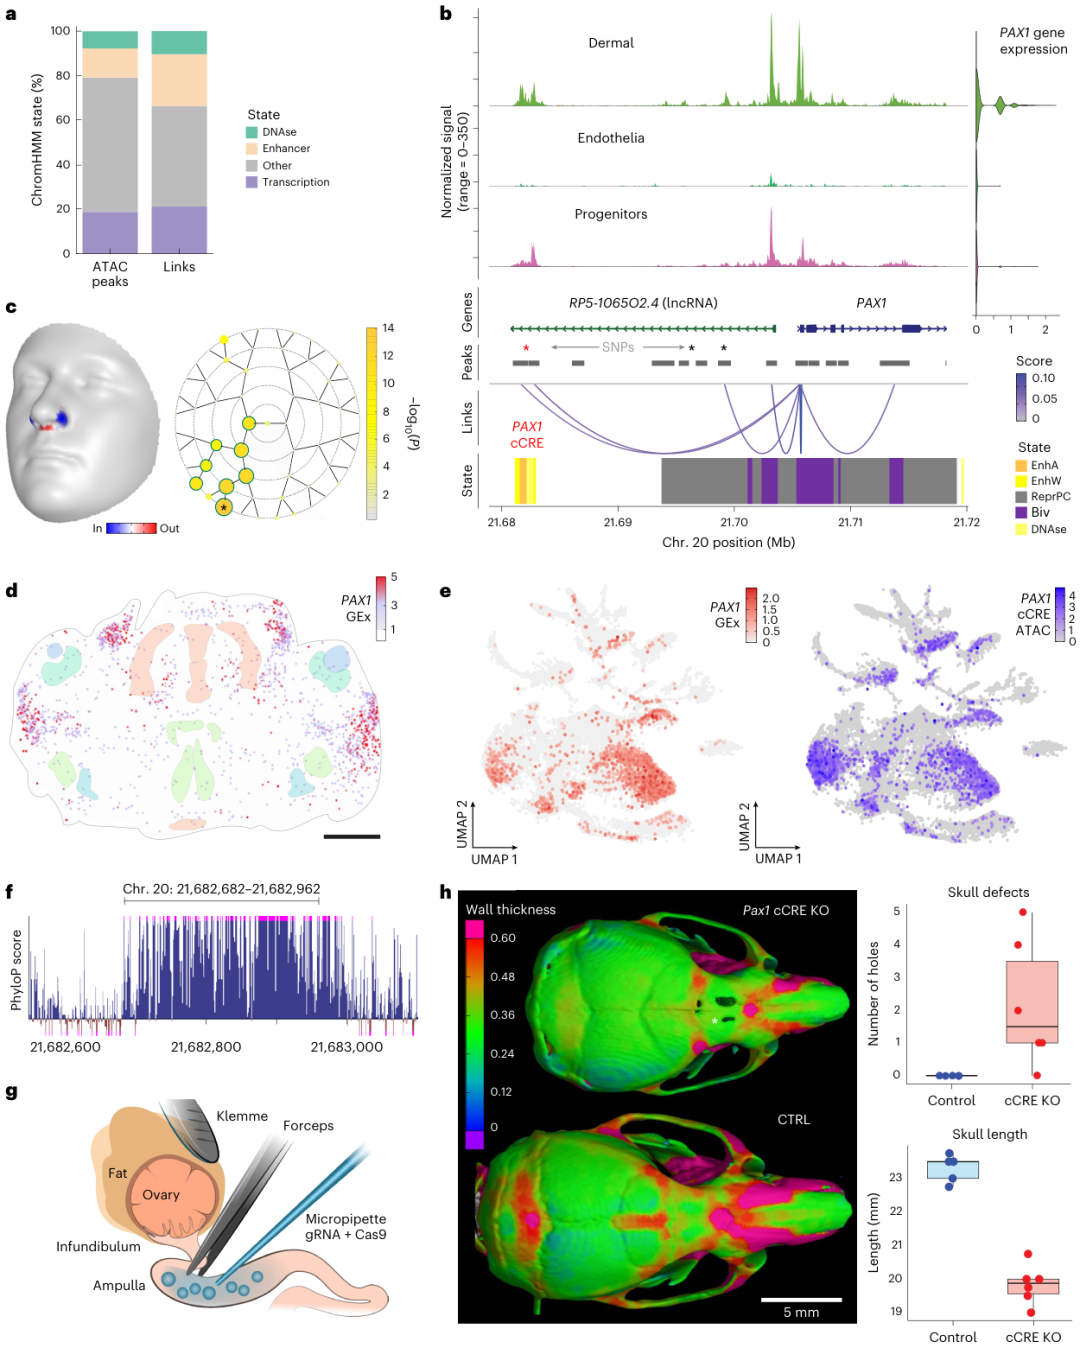
▲ 图3 增强子与靶基因连接锁定面部骨骼发生新驱动:PAX1-cCRE 的表观特征、细胞类型特异性、保守性及敲除小鼠的颅面表型(改编自原文 Fig. 3)
论文挑了一个在小鼠中保守、与空间转录因子相连、且含 GWAS 全基因组显著 SNP 的峰做概念验证。它位于一条长链非编码 RNA 内部、PAX1 上游约 20 kb。PAX1 是耳面颈综合征 OTFCS2 的致病基因,全敲小鼠以长鼻为特征,患者则可见鼻梁窄等面部畸形。这个 cCRE 带增强子标记,内含与鼻宽关联的位点 rs6047572,并在早期间充质祖细胞与真皮间充质中特异开放;空间上,PAX1 表达集中在正在形成的鼻软骨邻近的前真皮域。
团队找到其中一段约 276 bp、人鼠一致性 94% 且跨脊椎动物高度保守的序列,用 iGONAD 体系做 CRISPR 删除。结果:突变小鼠体型更小、头更短、出现明显的颅盖骨缺损,颅骨孔洞数与颅长与对照差异明确(6 只突变、5 只同窝对照)。有意思的是,这些小鼠并没有出现 Pax1 全敲典型的脊柱侧弯或扭结尾——恰好说明被删掉的是一个组织特异的调控开关,而非基因功能整体失活。
作者也坦承:LinkPeaks 只能给出相关,无法单独证明这段序列与 PAX1 启动子直接互作,后续需要染色质构象或位点特异性操作来确认。
案例二:MSX1,一个基因、多个增强子、各管一块脸
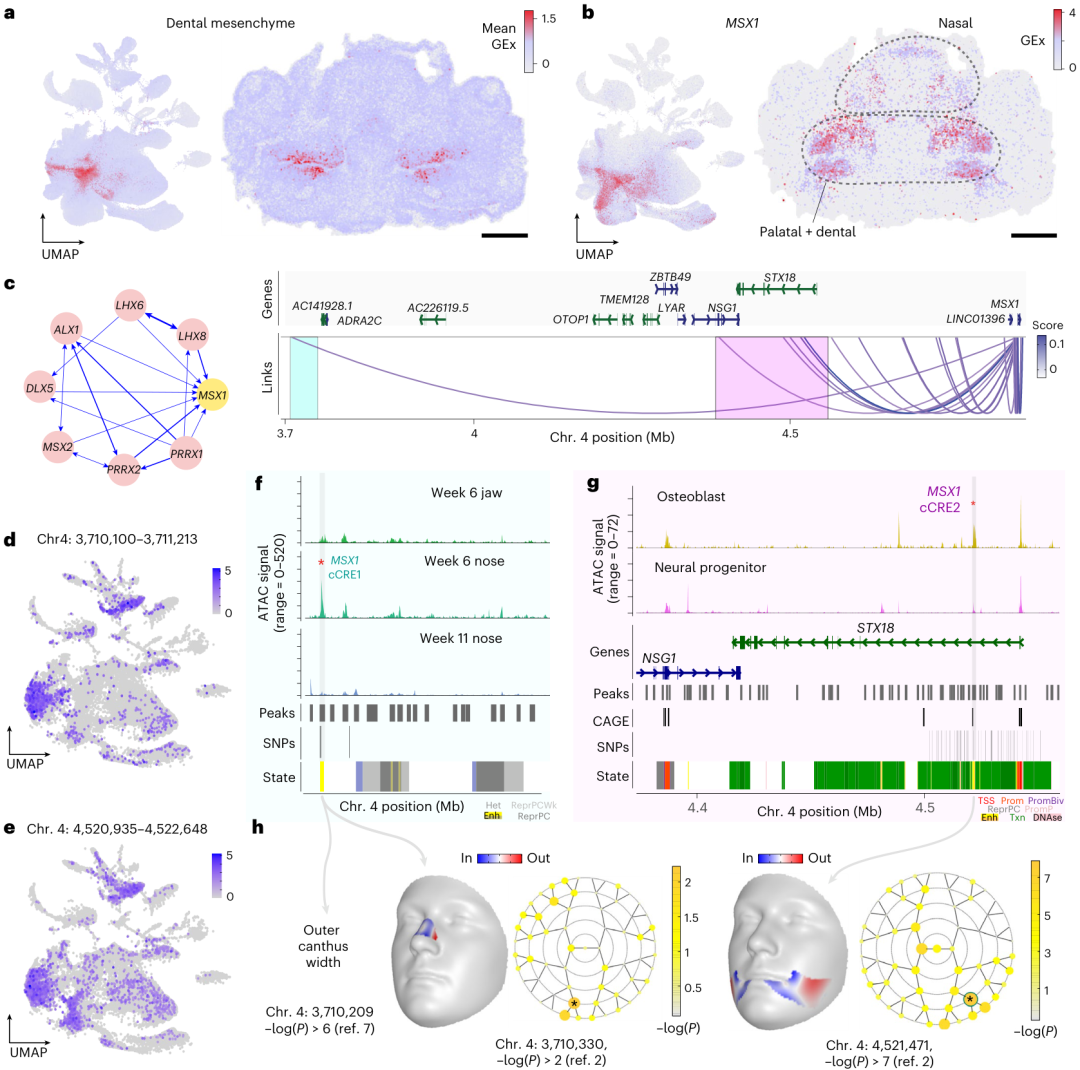
▲ 图5 多个 MSX1 相关增强子的时空与细胞类型特异性:远程互作、区域开放差异与对应面部性状(改编自原文 Fig. 5)
MSX1 与少牙、腭裂、Witkop 综合征相关。Wolf–Hirschhorn 综合征由 4 号染色体短臂部分缺失引起,临床上有个长期费解的现象:部分患者 MSX1 编码区完好,颅面严重程度却仍随缺失片段增大而加重。增强子病(enhanceropathy)是自然解释,这篇论文给出了具体坐标。
MSX1 既标记牙间充质簇与前牙空间域,也在上面中部与鼻区表达,且相对其他面部软骨高度特异地出现在鼻软骨。 上游 eGRN 同时包含前部与后部模式形成因子,提示它受多套区域特异调控输入支配。 4 号染色体上约 3.7 Mb 与 4.5 Mb 两处峰群与 MSX1 相连。cCRE1(chr4: 3,710,100–3,711,213)在 PCW6 鼻、PCW6 颌与 PCW11 鼻的样本间呈现区域加时间双重差异,内含与外眦宽度、鼻梁相关的变异;cCRE2(chr4: 4,520,935–4,522,648)在成骨细胞与神经祖细胞间呈现细胞类型特异开放,携带与下颌形状显著关联的位点。
换句话说,同一个基因的不同增强子,像多个独立开关,各自对应一块脸、一个时间窗、一类细胞。这也解释了为什么仅看基因表达谱,很难还原非编码变异的性状特异性。
案例三:唇腭裂的信号主力在上皮,一个 cCRE 连了三个基因
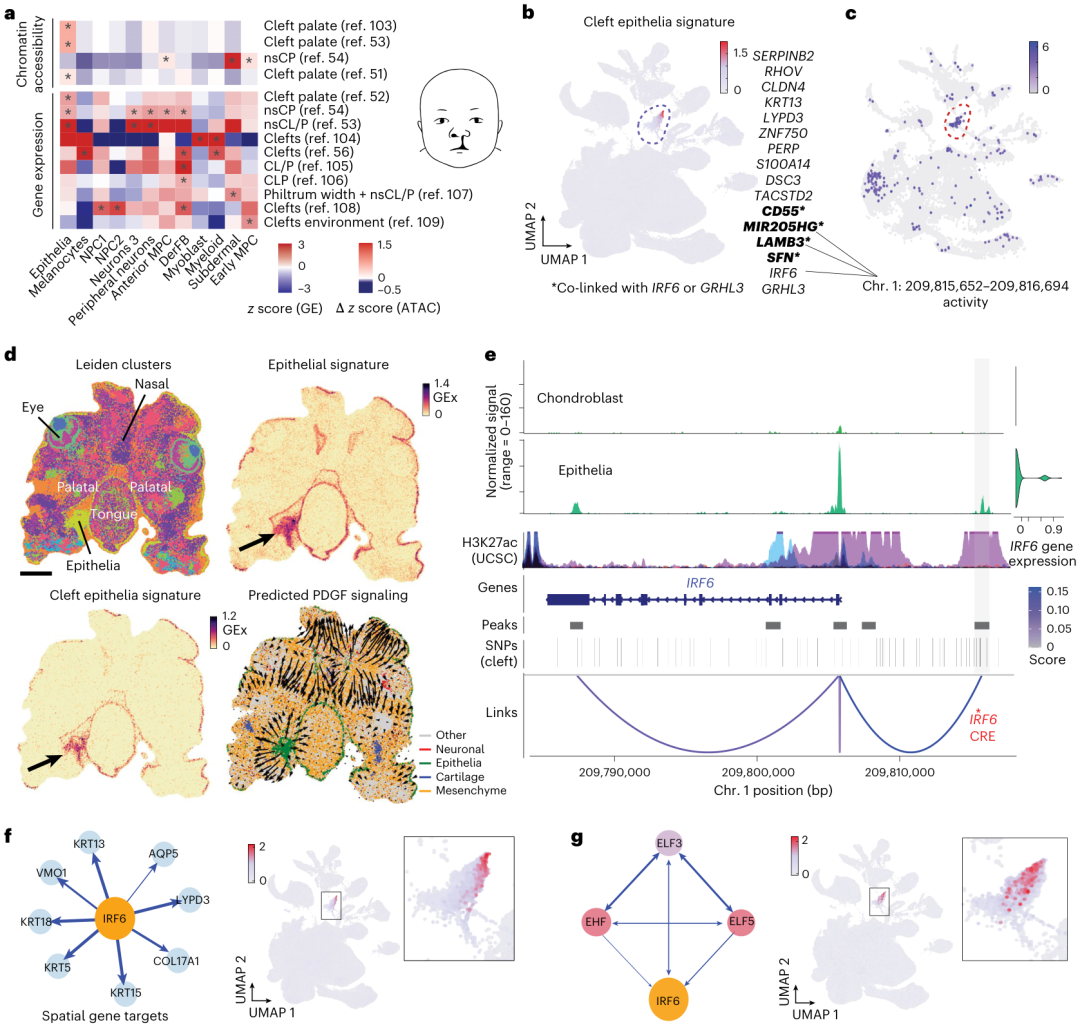
▲ 图6 唇腭裂相关上皮基因特征及其增强子:GWAS 富集、IRF6 与 GRHL3 共表达网络、PDGF 信号与一因多效 cCRE(改编自原文 Fig. 6)
研究者原本预期病理相关变异同样富集在间充质祖细胞,结果并非如此:多项口面裂 GWAS 的信号在上皮细胞中通过表达与染色质开放两个维度都最显著。
数据里存在一群共表达 IRF6 与 GRHL3 的上皮细胞;这两个基因构成的回路对腭发生过程中周皮(periderm)的及时分化与清除必不可少。 由 IRF6 和 GRHL3 共表达基因构成的特征,在 PCW6 覆盖正在形成的腭与唾液腺上皮,并与 COMMOT 预测的 PDGF 信号中心部分共定位。 1 号染色体上的 IRF6-cCRE(chr1: 209,815,652–209,816,694)带 H3K27ac 标记、叠加多个唇腭裂关联 SNP,且开放具有上皮特异性。它此前被报道为 IRF6 增强子,本研究进一步把它与 LAMB3、MIR205HG 连在一起——一个元件、多个靶基因,是典型的一因多效。 SCENIC+ 重建出 IRF6 下游的部分网络(含 LAMB3 与多种基底、周皮角蛋白)以及 ELF3、ELF5、EHF 等有限的上游调控因子。
对做机制研究的人来说,这段的价值不在结论,而在示范:图谱型数据可以用来重新分配疾病风险的细胞归属,并顺手提出新的靶基因与上游调控子。
六、最意外的发现:外周神经在「微调」上颌骨
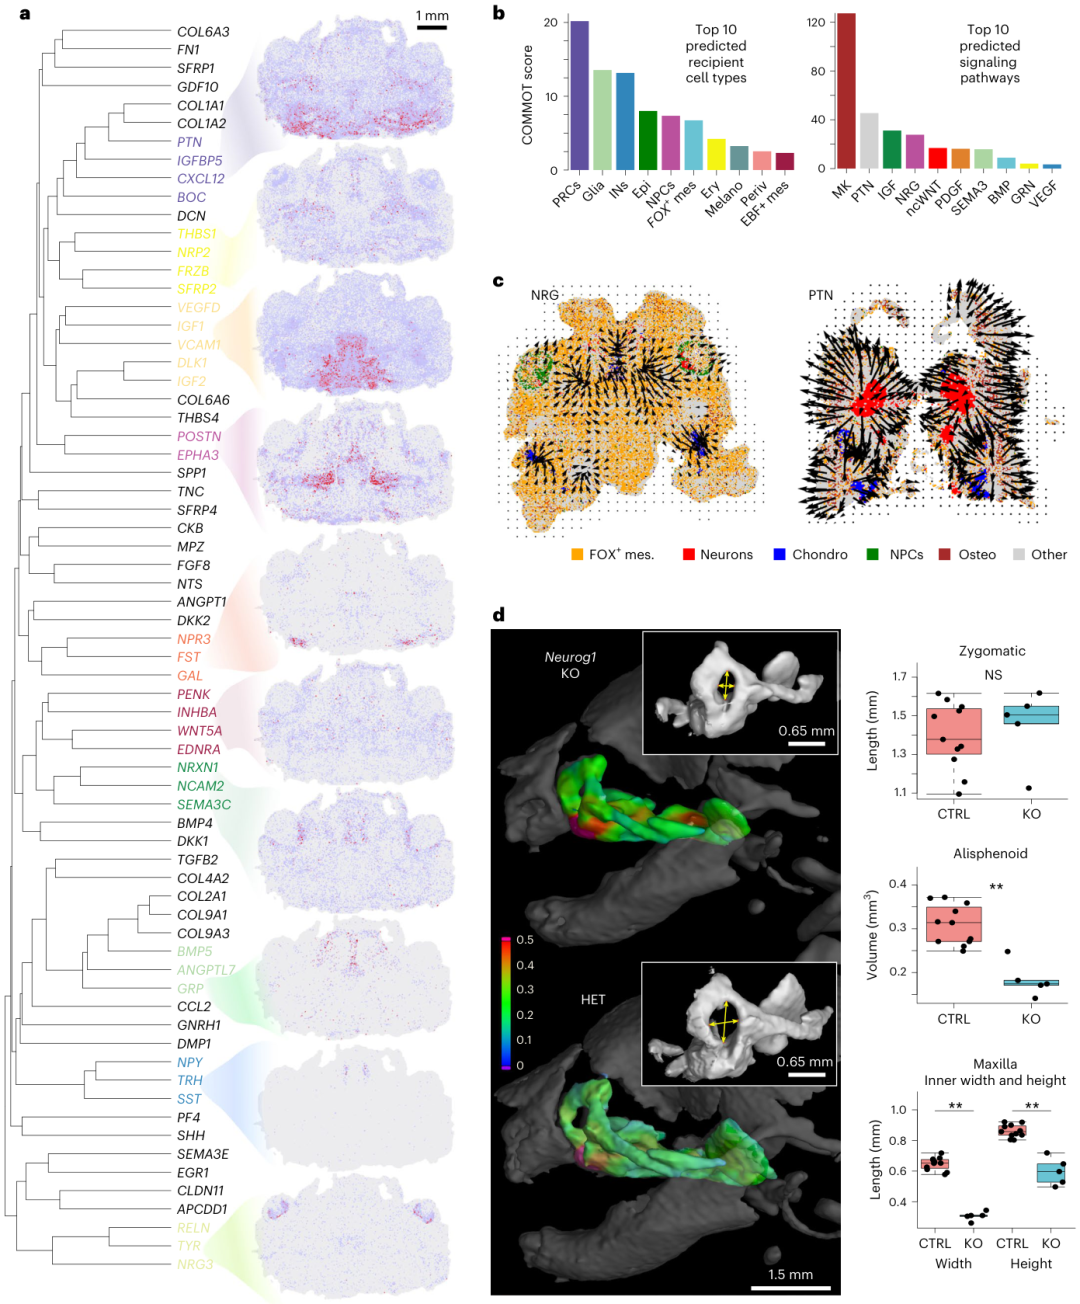
▲ 图7 外周神经可能微调颅面骨塑形:信号模块、神经元到间充质的通讯预测与 Neurog1 敲除小鼠的上颌骨表型(改编自原文 Fig. 7)
空间基因的分子功能里,受体—配体信号排名靠前;把分泌信号分子单独做共表达模块,得到的空间域与转录因子模块高度相似,而其中不少信号分子主要表达于外周神经元。再叠加前面性状富集中的线索——外周神经元在颧骨形状变异与唇腭裂信号里都排得靠前——团队决定追一下神经在面部生长中的角色。
COMMOT 分析在非经典 Wnt、内皮素、IGF、PDGF 等已知颅面通路上复现出高活性,并预测出 DLX5 被内皮素信号激活等已知关系。聚焦「神经元作为信号发送方」时,Neuregulin 与 Pleiotrophin 两条通路被预测从外周神经元指向多种间充质亚型;其中 Pleiotrophin 的传入信号与一批空间基因及 RUNX2、ZFHX3 等促骨骼标志物的激活相关。
功能验证用的是 Neurogenin 1 敲除小鼠——该模型因缺少颅感觉神经节而被用于剥离神经输入。micro-CT 显示:颧骨长度没有差异(NS,P = 0.497),但上颌骨形态与蝶骨体积出现清晰且显著的改变(5 只突变、11 只同窝对照,P = 0.002)。
结论措辞很克制:外周神经参与哺乳动物胚胎颅面骨骼塑形,但缺陷究竟源于信号改变还是其他机制,仍需后续实验区分。这种「先算后验、但不过度宣称」的写法,值得做组学解读时借鉴。
七、方法学延伸:读这类图谱,该抓住哪几根线
站在技术服务与数据解读的角度,这篇论文有几个特别值得沉淀的思路:
1. 多模态不是堆数据,是三层对齐。 表达层回答「是什么细胞」,开放染色质层回答「哪些开关可用」,空间层回答「在哪、什么时候可用」。少了任何一层,间充质亚群都会被误判。论文用空间转录组去校正「取样部位造成的表达漂移」,是整篇最实用的一招。
2. 关联和因果要分层标注。 LinkPeaks 是开放度与表达的相关,COMMOT 是配体受体表达加空间邻近的预测,GWAS 富集是统计信号。只有 CRISPR 删除与敲除小鼠才算踏进因果门槛。写报告或做客户沟通时,把「预测」「相关」「验证」三个词分开,能省掉后面大量返工。
3. 空间自相关是个被低估的工具。 Moran's I 同时跑解剖空间和表达空间,把「位置特异」从「细胞类型特异」里拆出来,这个思路对任何有空间坐标的组学数据都成立,不局限于转录组。
4. 从核酸层往下还有一层证据缺口。 这项研究的终点基本停在转录与染色质可及性。增强子活性是否真正转化为蛋白丰度、分泌信号是否在蛋白与磷酸化层面生效、细胞外基质重塑如何参与骨形态建成,都需要蛋白组与代谢层面的正交验证。对做质谱的实验室而言,这恰恰是把「调控图谱」推进到「效应分子」的接口——尤其是空间蛋白组、靶向定量与分泌组,适合用来给这类论文补上蛋白层的独立证据链。
5. 跨物种外推要留余地。 人和小鼠的面部差异很大,人类特异的调控元件在文中也被明确点名。小鼠表型适合作为「必要性」的线索,不宜直接当作人类性状的定量解释。
八、也别忽略这些边界
样本规模
:Stereo-seq 仅来自 2 个约 6.5 周胚胎的 8 张切面,配对多组学来自 4 个个体;早期人类胚胎样本本身极稀缺,结论的普适性需要更多独立队列支持。 统计校正
:部分富集热图使用单侧 z 检验、P < 0.05 且未做多重比较校正,论文在图注中明确标注;CytoTRACE 相关分析同样注明未做多重校正。读显著性时要连同这一条一起看。 增强子—靶基因配对仍是计算预测
:作者自己指出 LinkPeaks 无法区分直接互作与间接相关,PAX1-cCRE 与 PAX1 的关系还需构象或位点特异实验确证。 神经表型的机制未定
:Neurog1 敲除造成的骨改变,可能来自信号缺失,也可能来自其他发育扰动。 GWAS 人群背景
:所用面部 GWAS 的人群构成会影响可外推范围,跨人群验证仍是开放问题。
写在最后
从「哪个基因决定长相」到「哪个细胞、在哪个位置、哪个时间窗、由哪个增强子决定」,这中间隔的不是更多数据,而是把不同分辨率的证据正确对齐的能力。 这篇 Nature Genetics 最值得记住的,或许不是 56 种细胞状态或 396 个空间基因,而是它演示了一种可复用的研究范式:先用多组学把中间层建实,再让统计关联落回可操作的分子开关,最后用 in vivo 验证收口。
原文信息:Erickson A G 等,Atlas of cell types and regulatory elements underlying human facial diversity,Nature Genetics,2026 年 10 月,第 58 卷 2645–2659 页。DOI:10.1038/s41588-026-02748-y