
 English
阿尔茨海默病里,染色质的"房间"塌了:Science 新研究把 3D 基因组与转录组在同一颗细胞里连了起来
核心结论:阿尔茨海默病(AD)的单细胞研究已经很多了,但大多数只盯着"基因表达"或"染色质开放性"单一层面。2026年7月,卡内基梅隆大学 Jian Ma 团队联合匹兹堡大学、华盛顿大学等在《Science》发表重磅研究:用自研的 GAGE-seq 技术,在同一颗细胞核里同时读取基因表达与三维染色质结构,对 20 名 ROSMAP 供体的尸检前额叶(10 AD / 10 非AD,年龄性别匹配)做了全景测绘。他们发现:AD 脑细胞里长程染色质相互作用比例普遍升高、A/B 区室"串门"(mingling)加剧且伴随转录输出整体下降;短程调控元件相互作用普遍减弱、中程 CTCF 锚定的相互作用异常增强;自研深度学习模型 Hicformer 进一步证明——只看 DNA 序列预测不准的疾病相关基因,加上 3D 基因组特征后预测显著变好。最后用 Xenium 空间转录组验证:L4 层星形胶质细胞与兴奋性神经元的空间耦合在 AD 中骤降 63.4%。这项研究把"基因组三维折叠"这一表观遗传的隐秘维度,正式写进了 AD 的分子病理版图。
一、为什么要看 3D 基因组?
先补一个背景。人类基因组约 2 米长,要折叠进直径仅 6 微米的细胞核里。这种折叠不是随机的——它有精细的三维架构:
- A/B 区室(compartment):转录活跃的 A 区室与失活的 B 区室各自抱团,像细胞核里的"功能分区"; - 拓扑结构域(TAD):数百万碱基范围内的"独立房间的隔断"; - 染色质环(loop):增强子和启动子在空间上被拉近的"远程接线"。
问题在于:以往 AD 的单细胞研究——scRNA-seq 测表达、snATAC-seq 测开放性——都是间接推断染色质层面的变化。3D 基因组在 AD 里到底怎么变、跟基因表达紊乱是不是一回事,一直没有直接证据。核心障碍很现实:同一个细胞里,要么测得到 RNA 测不到 Hi-C,要么反之。
二、GAGE-seq:同一颗细胞,两份答案
卡内基梅隆的 Jian Ma 团队此前开发了 GAGE-seq(genome architecture and gene expression by sequencing),能在同一个细胞核里联合捕获转录组与 3D 染色质相互作用。这次他们把它用到了真正的大舞台上——ROSMAP(Religious Orders Study + Rush Memory and Aging Project),阿尔茨海默病人体研究里最负盛名的队列之一。
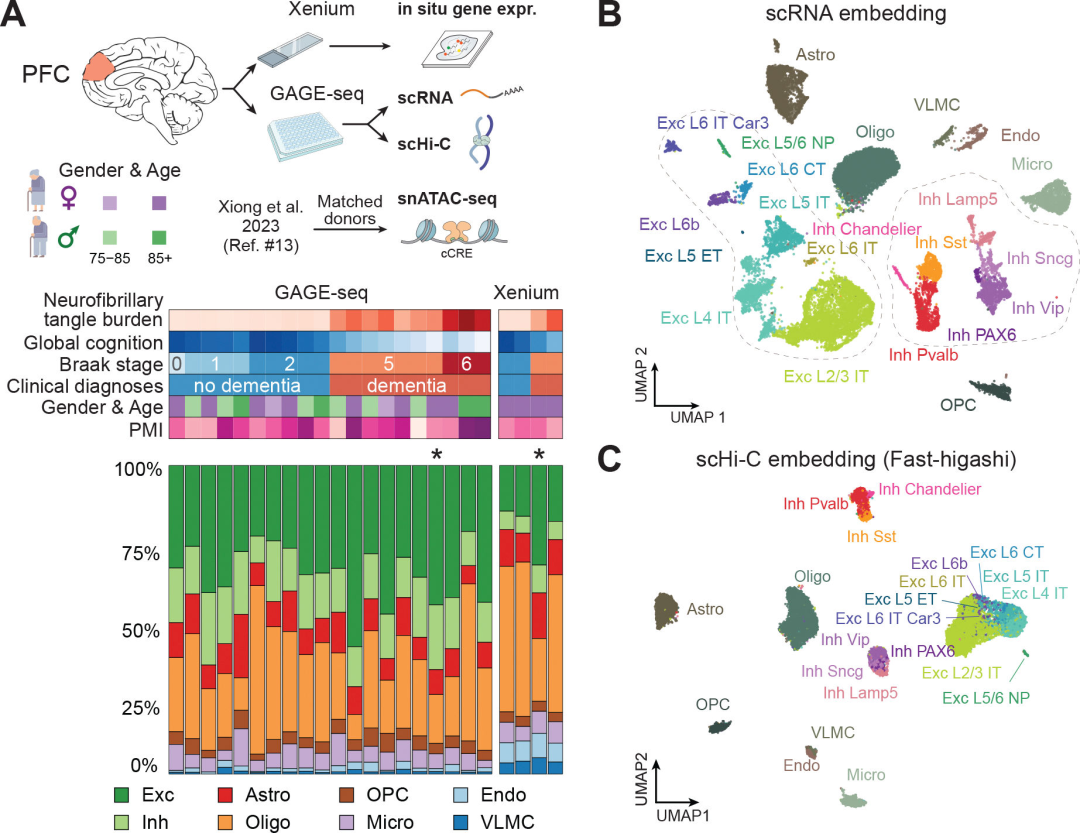
▲ 图1|GAGE-seq 联合profiling转录组与3D基因组。A:实验设计——20名供体(10 AD,Braak 5-6期;10非AD,Braak 0-2期)的前额叶组织,经GAGE-seq同时获取单细胞RNA与单细胞Hi-C,并整合同供体snATAC-seq(Xiong et al. 2023)与Xenium空间转录组;B:scRNA嵌入图按22种细胞亚型着色(兴奋性神经元Exc、抑制性神经元Inh、星形胶质细胞Astro、少突胶质细胞Oligo等);C:仅凭scHi-C数据的Fast-higashi嵌入即可恢复主要神经元与胶质群体,证明3D染色质接触模式本身携带细胞身份信息。
数据质量相当能打:严格质控后保留 23,825 个高质量细胞,平均每个细胞 22,704 个 UMI、2,477 个表达基因,以及 288,931 个染色质接触(范围 3 万–303 万)。细胞被注释为 8 大类、22 种亚型,其中兴奋性与抑制性神经元各 9 种和 7 种。
值得强调的一个细节:仅用 scHi-C 数据做降维,就能恢复出神经元 vs 胶质的大类结构(图1C)。也就是说,你不需要看基因表达,光看染色质怎么折叠,就知道这是哪种细胞。这为后续"3D 基因组变化承载疾病信息"埋下了伏笔。
三、转录组:神经元"熄灯",胶质细胞"上火"
AD 组与非 AD 组的差异表达分析显示:神经元(兴奋性+抑制性)以下调为主,胶质细胞差异基因明显更少但方向更均衡。GAGE-seq 的结果与 Mathys et al. 2023 的独立 scRNA-seq 数据高度一致(六大细胞类型 Pearson r = 0.433–0.902),交叉验证了数据的可靠性。
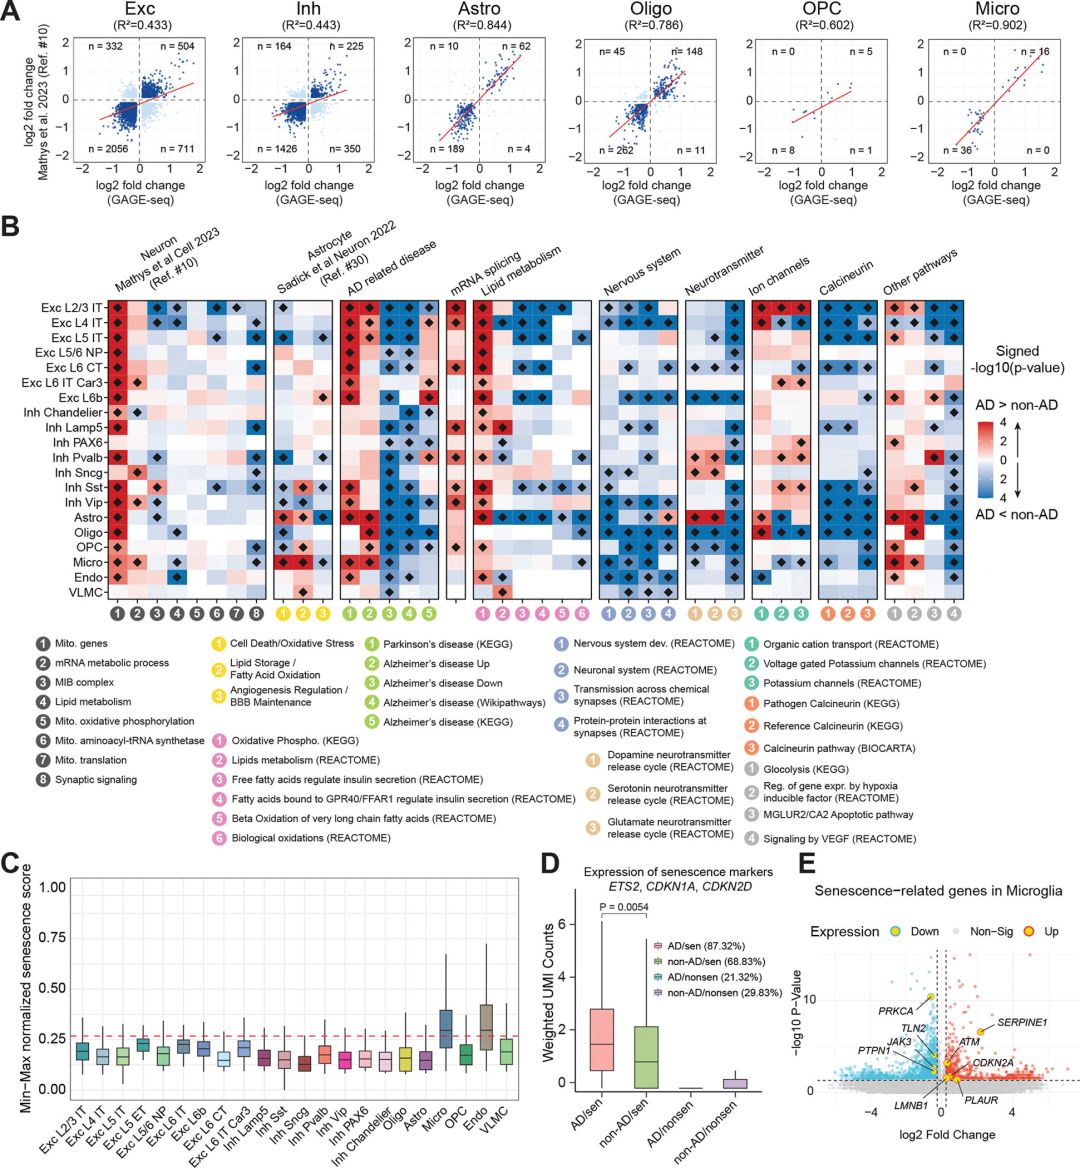
▲ 图2|AD的转录组全局改变。A:GAGE-seq与Mathys et al. (2023)的log2倍数变化在六类主要细胞中高度一致(R²=0.433-0.902),各象限数字为一致/不一致方向的基因数;B:20种细胞亚型的通路富集——兴奋性神经元线粒体功能与mRNA代谢通路上调(代偿应激),脂质代谢、氧化磷酸化、突触信号下调;星形胶质细胞氧化应激上调;帕金森病相关基因集在多种细胞中上调;C:衰老通路评分(CSP)——小胶质细胞衰老比例最高;D:衰老关键调控因子ETS2、CDKN1A、CDKN2D在小胶质细胞显著上调(P=0.0054);E:小胶质细胞衰老相关基因火山图。
几个值得注意的信号:
- 代偿性应激:兴奋性神经元里线粒体功能和 mRNA 代谢通路上调,但氧化磷酸化、脂质代谢、突触信号整体下调——典型的"一边硬撑、一边塌方"; - 小胶质细胞衰老最重:衰老通路评分(CSP)全细胞类型最高,ETS2、CDKN1A、CDKN2D 显著上调;星形胶质细胞则携带最高的 SASP(衰老相关分泌表型)评分。更有意思的是VLMC(血管软脑膜细胞)和内皮细胞也显示出高衰老评分——这是此前未被报道过的 AD 相关血管细胞衰老状态; - 跨疾病分子趋同:帕金森病相关基因集在多种 AD 脑细胞中上调,提示神经退行性疾病之间可能共享底层通路; - 性别差异:X 染色体失活逃逸基因在表达和 X 连锁 3D 染色质特征上都表现出最强的性别依赖性变化。
四、3D 基因组:长程相互作用↑,A/B 区室开始"串门"
这是本研究最核心的发现,也是只有 GAGE-seq 才做出来的部分。
研究者把染色质相互作用按基因组距离分成四档:短程(1–128 kb)、中程(128 kb–4 Mb)、长程(4–65.5 Mb)、超长程(>65.5 Mb)。结果一致而清晰:
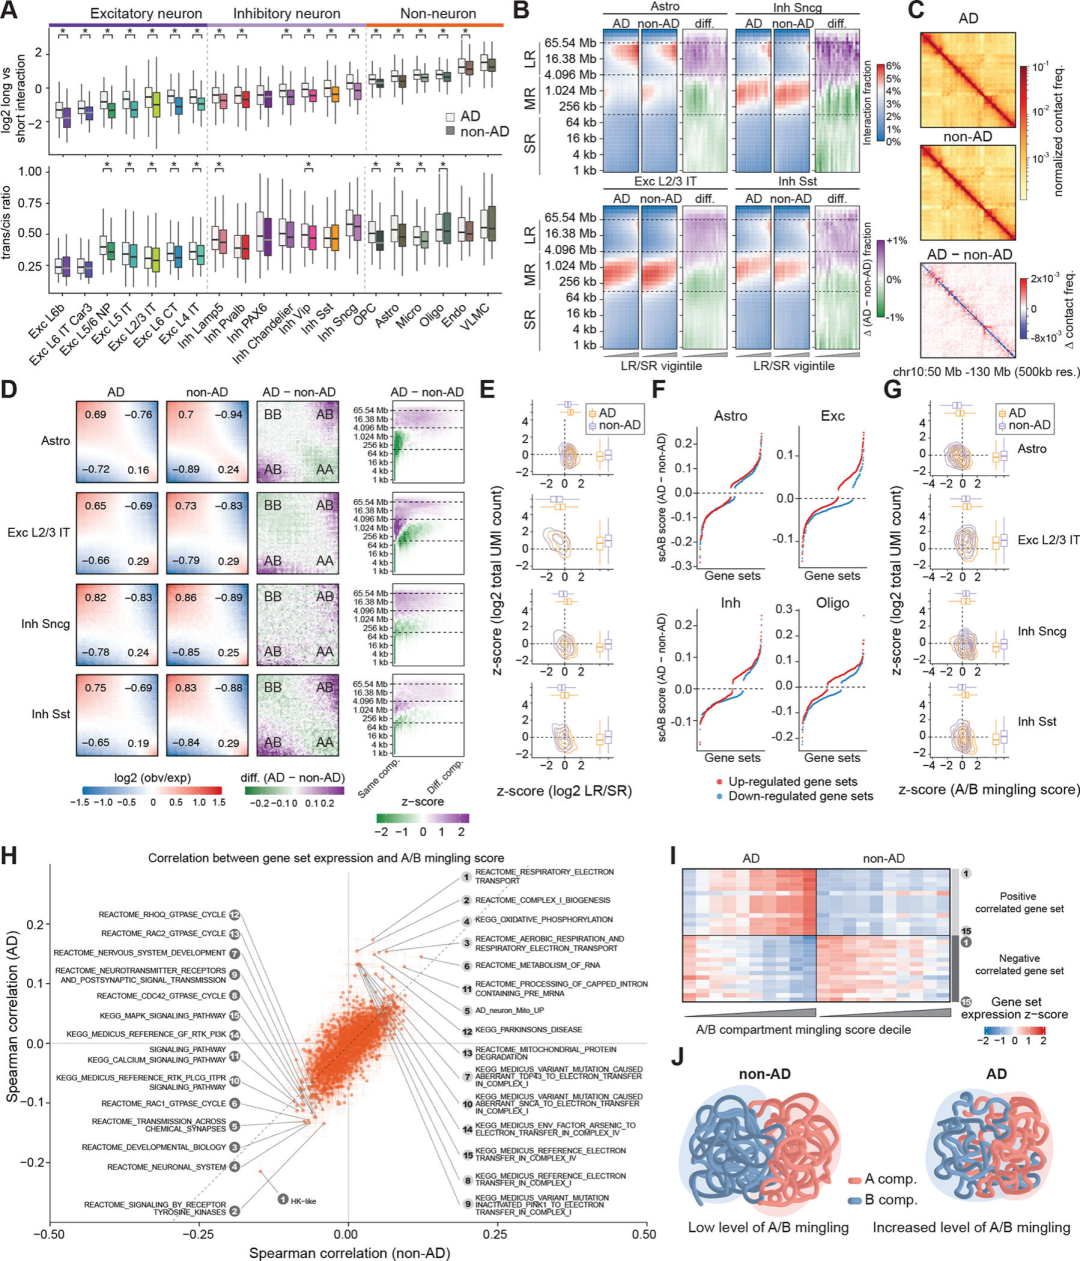
▲ 图3|AD的全局染色质改变与A/B区室串扰。A:几乎所有细胞类型中,AD组的长程/短程相互作用比值(上)与反式/顺式接触比值(下)均显著升高(*Wilcoxon p<0.05);B:代表细胞类型的染色质相互作用热图(AD、非AD及其差值),按LR/SR比值排序分组;C:代表染色体区域的接触图对比;D:saddle plot显示AD组A/B区室异型(A-B)相互作用增加、同型(A-A、B-B)减弱;E:长程相互作用升高的AD细胞UMI计数更低,提示转录输出整体下降;F:AD中上调的基因/基因集区室评分向A偏移;G:单细胞A/B区室串扰(mingling)评分——AD细胞更高且UMI更低;H-I:氧化磷酸化与RNA代谢基因集与串扰评分正相关,神经与持家基因程序负相关,且相关性在AD中更强;J:示意图——非AD细胞核A/B分区清晰,AD细胞核A/B混合加剧。
- 长程/短程比值升高:在几乎所有细胞类型中,AD 组都显著高于非 AD 组(图3A 上排); - 反式/顺式接触比值升高:不同染色体之间的接触变多了(图3A 下排); - A/B 区室"串门"加剧:saddle plot 显示活跃的 A 区室与失活的 B 区室之间的异型相互作用增加,同型的 A-A、B-B 相互作用减弱(图3D)。研究者用亚区室(A1、A2、B1、B2、B3)进一步确认了这个趋势,并定义了单细胞 A/B 区室串扰评分(基于染色体间相互作用)来量化它。
关键在于,研究者利用 GAGE-seq 的"同一颗细胞双份答案"优势,把 3D 结构和基因表达直接对上了:串扰评分越高的 AD 细胞,UMI 总数越低——染色质分区被打乱的同时,全局转录输出在下降(图3E、G)。
跟串扰评分正相关的基因集是什么?氧化磷酸化、RNA 代谢加工——恰好也是 AD 中上调最猛的通路。负相关的则是神经递质信号、神经系统发育、突触通路等神经元核心程序,以及持家基因。而且这些相关性在 AD 细胞中比非 AD 更强(图3H-I)。
一句话总结:AD 的细胞核里,A/B 分区正在"融化",而融化的方向恰好偏向代谢应激、远离神经元功能。
五、调控元件:局部失控、中程异常增强
区室层面的变化是"大背景",研究者随后聚焦到 cis 调控元件(cCRE)层面。他们整合了同供体的 snATAC-seq 数据(同一批 ROSMAP 供体,Xiong et al. 2023),把染色质相互作用的锚点按 cCRE 类型分类(启动子、增强子、CTCF 结合位点等六类)。
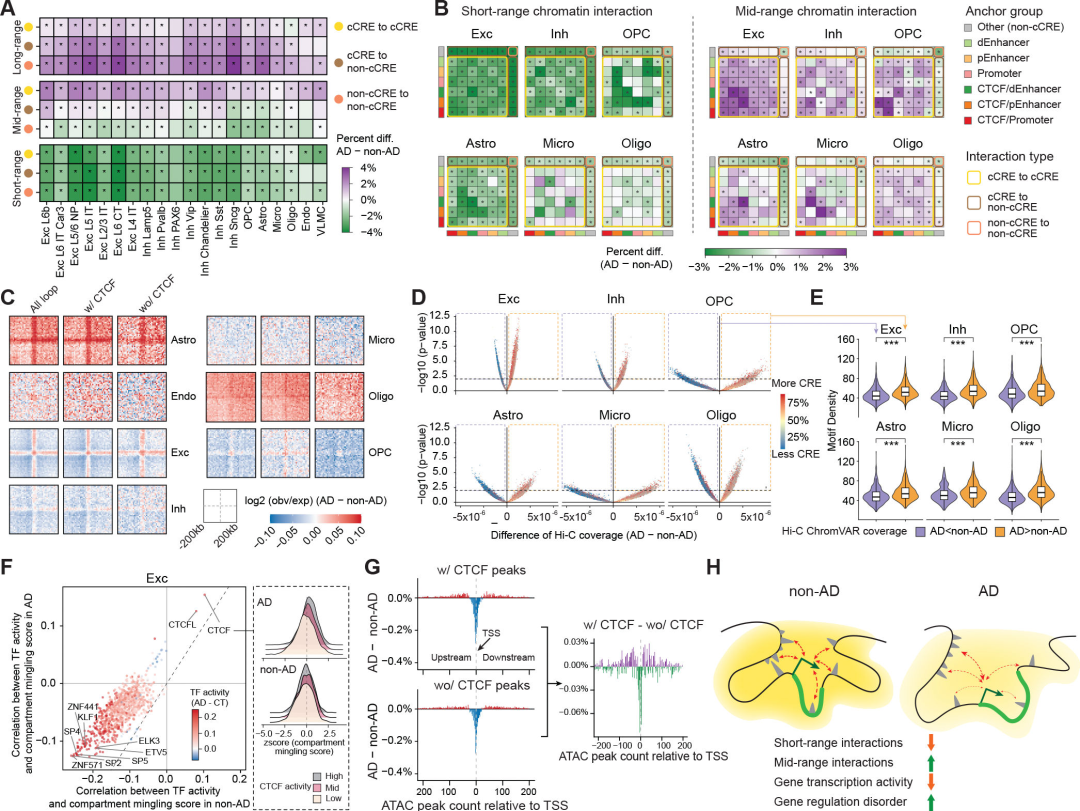
▲ 图4|AD相关的cCRE锚定染色质相互作用重塑。A:按锚点cCRE类型分层(非cCRE-非cCRE、cCRE-非cCRE、cCRE-cCRE)的AD vs 非AD相互作用差异热图,分长程/中程/短程展示;B:按更细的调控元件类型分层(dEnhancer、pEnhancer、启动子、CTCF/Enhancer、CTCF/Promoter等)的差异;C:去除CTCF峰后长程相互作用差异减弱;D:各细胞类型Hi-C覆盖差异火山图;E:CTCF基序chromVAR覆盖度——AD组显著更高;F:转录因子活性与区室串扰评分的相关性(CTCF活性与串扰正相关);G:TSS到邻近cCRE的相互作用衰减曲线——AD中近程(第1-20个CRE)减弱、中程(第20-200个CRE)增强;H:模型示意——AD细胞短程相互作用减弱、中程相互作用增强、基因表达紊乱。
主要发现可以概括为一个"此消彼长":
- 短程相互作用普遍减弱:非 cCRE 锚点的相互作用在 AD 中短程和中程都下降;TSS 到邻近(第 1–20 个)cCRE 的接触也变弱——局部调控"失联"; - 中程 cCRE–cRE 相互作用选择性增强:尤其是 CTCF 锚定的那些(图4B),且去除 CTCF 峰后这种差异明显减弱(图4C);CTCF 基序的 chromVAR 覆盖度在 AD 中也更高(图4E)。
研究者给出的模型是(图4H):AD 细胞的调控架构经历了"重新布线"——局部控制被削弱,中远程的 cCRE–基因接触异常增强,CTCF 介导的重塑是关键推手。这种结构性的调控失序,很可能就是广泛转录紊乱(包括 AD 风险基因)的结构基础。
六、Hicformer:把 3D 基因组喂给深度学习
前面的发现都是相关性。要证明"3D 基因组不只是伴随现象、而是真正承载调控信息",研究者开发了 Hicformer——一个把 DNA 序列与多分辨率 3D 基因组特征联合起来的 transformer 模型。
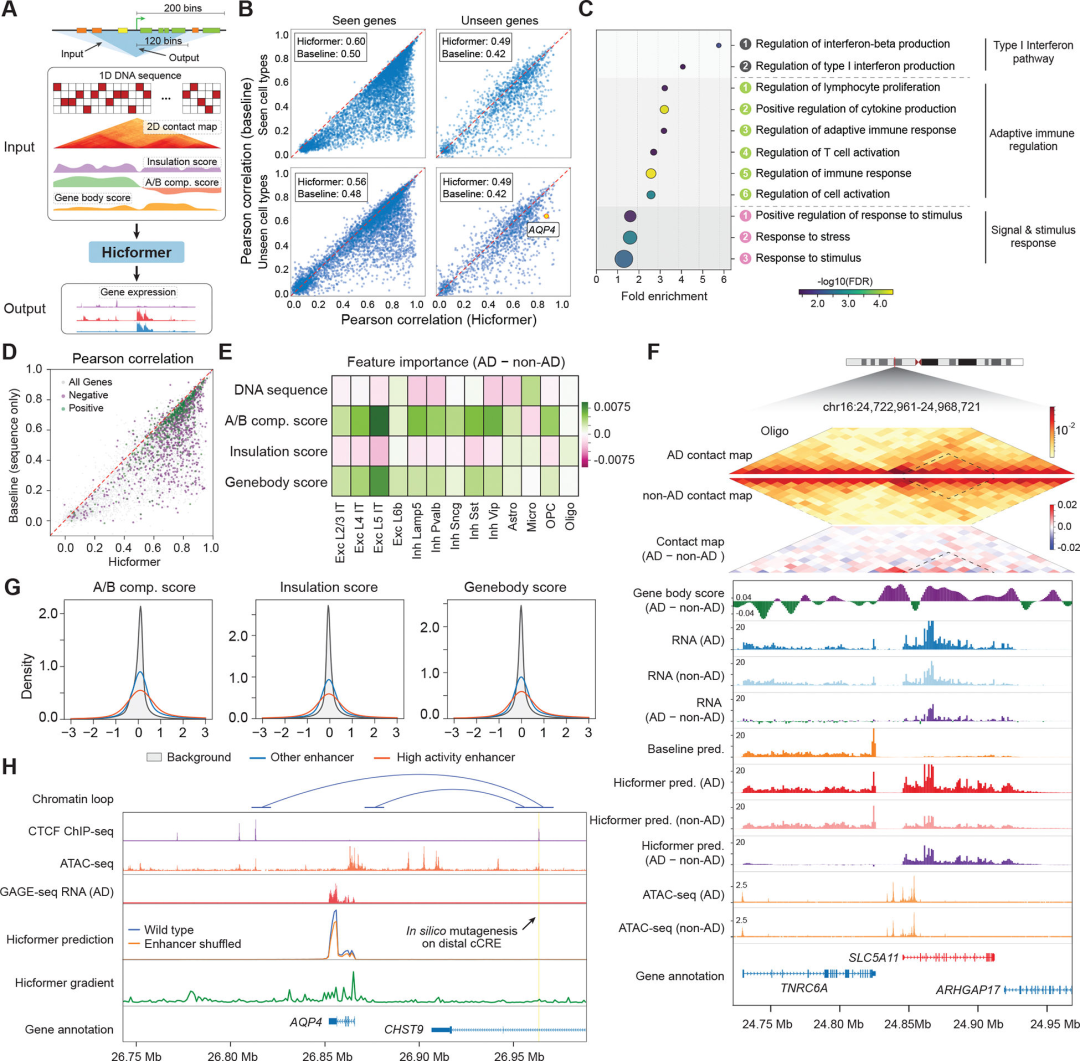
▲ 图5|Hicformer揭示染色质驱动的转录改变。A:模型架构——每个基因位点(TSS±200 kb)以三种模态输入:one-hot DNA序列、1D Hi-C衍生特征(A/B区室评分、绝缘评分、基因体评分)、2D局部接触图,经Enformer风格transformer模块整合预测细胞类型特异基因表达;B:三种held-out场景下Hicformer vs 纯序列基线的Pearson相关性(seen genes/unseen genes × seen/unseen cell types);C:Hicformer优于基线的基因在AD小胶质细胞中富集于I型干扰素、细胞因子产生与免疫应答调控;D:与区室串扰正相关/负相关的基因集均被Hicformer显著改善预测;E:特征重要性(AD − 非AD)——AD中模型对A/B区室与基因体评分的依赖增强;F:SLC5A11位点——Hicformer准确预测其在AD少突胶质细胞中上调,与基因体3D接触频率增加一致;G-H:AQP4上游约97.4 kb远端cCRE的in silico扰动降低预测表达。
实验设计相当严谨:7,598 个基因 × 26 个细胞类型-条件组合(13 种细胞 × AD/非AD),在三种 held-out 场景下评估——seen genes + unseen cell types、unseen genes + seen cell types、以及最难的 unseen genes + unseen cell types。三种场景下 Hicformer 全面优于纯序列基线(图5B)。
更有信息量的是"哪些基因需要 3D 特征才能预测好":
- 在 AD 小胶质细胞里,Hicformer 大幅超越基线的基因显著富集于 I 型干扰素信号、细胞因子产生、免疫应答调控——这些都是 AD 的经典相关通路; - 与区室串扰正/负相关的基因集(代谢/RNA 加工 vs 突触/神经发育)都被 Hicformer 改善预测; - 特征归因分析显示:神经元主要依赖序列与绝缘评分,胶质细胞更依赖 A/B 区室与基因体评分;且在 AD 中,即使原始特征值不变,模型对 3D 染色质特征的归因权重上升——提示 3D 基因组在 AD 中的调控权重在加大。
两个具体案例可圈可点:SLC5A11(少突胶质细胞功能相关转运体,AD 中失调)——Hicformer 准确预测其上调,与基因体 3D 接触频率增加一致;AQP4(星形胶质细胞水通道,参与胶状淋巴清除与神经炎症)——模型锁定其上游约 97.4 kb 的一个远端 cCRE(开放染色质 + 强 CTCF 位点 + 染色质环连接启动子),in silico 扰动它就显著降低预测表达,而只扰动序列几乎没影响。模型梯度还能在脑 cis-eQTL 和 AD GWAS 位点上做出有区分度的优先级排序。
七、空间维度:神经网络-胶质耦合的空间瓦解
3D 基因组的故事发生在细胞核里,研究者最后把它放回组织空间。他们对 4 名 ROSMAP 供体(2 晚期 AD、2 非痴呆)的前额叶做了 Xenium Prime 5K 空间转录组,质控后保留 213,271 个细胞,与 GAGE-seq 联合注释,皮层分层 L1–L6 + 白质。
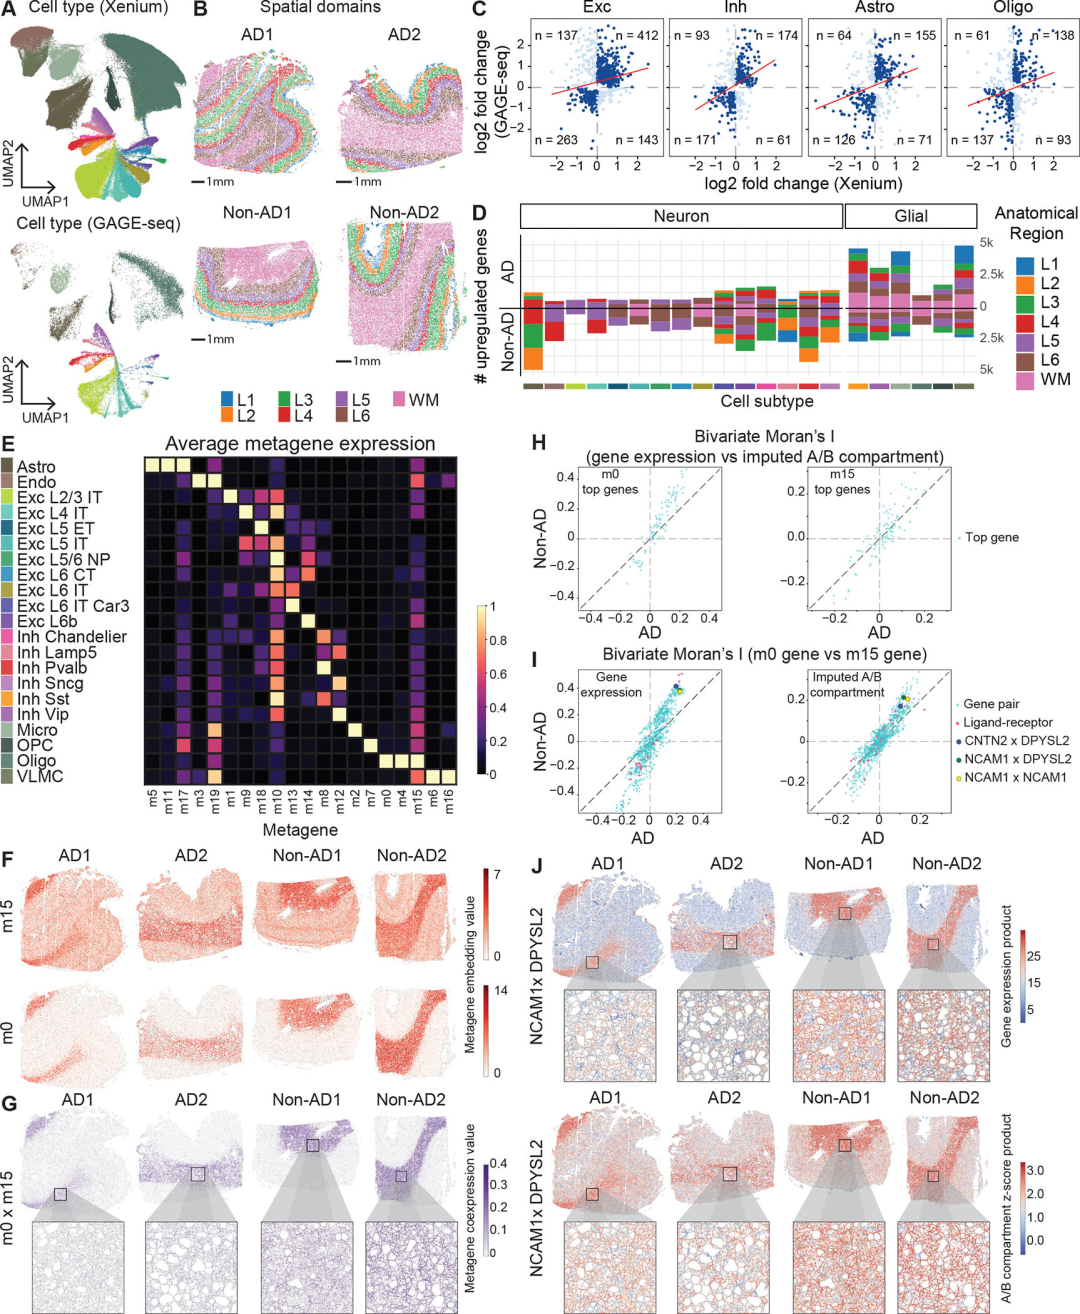
▲ 图6|空间转录组与3D基因组的整合分析。A:Xenium与GAGE-seq的细胞类型共嵌入UMAP,注释一致;B:原位空间域识别皮层分层(L1-L6、白质,比例尺1 mm,AD1/AD2与非AD1/非AD2);C:Xenium与GAGE-seq在各代表细胞类型中的log2倍数变化高度一致;D:各细胞亚型上下调基因数量按皮层分层堆叠——神经元亚型DEG更多且以下调为主;E:POPARI元基因(metagene)平均表达热图,元基因与细胞类型对齐;F-G:元基因m0-m15的空间亲和力在AD中显著降低(置换检验p<0.05);H-I:m0×m15配体-受体对的双变量Moran's I——AD中基因表达与A/B区室评分的空间共定位均减弱;J:NCAM1×DPYSL2基因对表达乘积的空间图——非AD中共定位更强。
结果印证了 GAGE-seq 的转录组发现,还多了一层空间信息:
- 深层皮层(L3–L6)的细胞组分空间变化最突出; - 最引人注目的是L4 层星形胶质细胞与 L4 层兴奋性神经元(Exc L4 IT)的空间邻近度在 AD 中下降 63.4%(p < 1×10⁻¹⁵)——提示 AD 中存在神经元-胶质耦合或细胞微环境的空间瓦解; - POPARI 方法识别出与细胞类型对齐的空间元基因程序;其中 m0–m15 元基因对的空间亲和力在 AD 中显著降低,且与 3D 基因组区室串扰相关的标记基因恰恰富集在 m15; - 配体-受体层面,NCAM1–DPYSL2(细胞黏附、神经突延伸导向相关)等基因对在非 AD 中空间共定位更强,在 AD 中明显减弱——连接了"基因组折叠紊乱"与"细胞间通讯紊乱"两个尺度。
八、给研究者的四条启示
多组学"同细胞联合"正在成为标配
。GAGE-seq 这类技术让"3D 结构 vs 基因表达"的因果推断有了单细胞级别的抓手——A/B 区室串扰分析、单细胞水平结构-表达配对,都只有联合 profiling 才能做; 只看序列是不够的
。Hicformer 的对照实验说明:疾病相关基因(尤其免疫/干扰素通路)的细胞类型特异表达,有相当一部分信息写在 3D 染色质特征里。做基因表达预测或调控元件注释的团队,值得把 Hi-C 特征纳入特征工程; "结构变化"可能是疾病分层的暗物质
。AD 现有临床试验大多聚焦突触/神经元程序,而本研究发现与区室串扰相关的代谢与氧化应激程序在现有药物版图上几乎空白——这可能是新的分型与干预切入点; 跨尺度整合是趋势
。同一研究里同时打通单细胞多组学(GAGE-seq)+ 深度学习(Hicformer)+ 空间转录组(Xenium),把"细胞核内的折叠"和"组织里的微环境"连成一条证据链。无论你做肿瘤、神经还是代谢,这个"多尺度联测-联析"的框架都值得借鉴。
论文信息:Zhang Y, Lu X, et al. Single-cell multiomics connects 3D genome and transcriptome alterations in Alzheimer's disease. Science (2026) 393(6809): eadz1652. DOI: 10.1126/science.adz1652