
 English
新平台 Spatial-ATAC-Hi-C:一张切片同时读出 3D 基因组折叠和染色质开关
一句话总结:耶鲁 Rong Fan 与西北大学 Feng Yue 团队推出微流控平台 Spatial-ATAC-Hi-C,在冷冻组织切片上用同一套空间条形码同时捕获 3D 基因组结构(Hi-C)与染色质可及性(ATAC-seq),像素分辨率约 50 μm、每像素含 3–21 个细胞;在小鼠脑中首次画出"细胞类型特异"的 3D 基因组图谱,在胶质瘤临床样本中直接看到 EGFR 扩增、CDKN2A/B 缺失的空间分布与克隆特异的染色质环。论文发表于 Nature Methods 23:2015–2028(2026),doi: 10.1038/s41592-026-03217-4。
一、空间组学的"断层":能看到开关,看不到折叠
过去十年空间组学爆发式发展,但存在一个明显断层。
看"开关"的技术:spatial-ATAC-seq、spatial-CUT&Tag 可以在组织切片上测染色质可及性和组蛋白修饰,告诉我们"哪些基因的启动子开着"。但它们看不到 3D 基因组结构。
看"折叠"的技术:Slide-DNA-seq、HiRes 等能看到基因组空间折叠和拷贝数变异,但拿不到染色质可及性信息。
问题是,基因调控恰恰发生在两者交汇处:一个增强子要发挥作用,既需要它所在的染色质区域"打开",也需要它在 3D 空间上环化接触目标基因的启动子。只测其一,就像只拿到电路图或只拿到开关状态——永远拼不出完整的调控电路。
更关键的是肿瘤场景。胶质母细胞瘤(GBM)的典型特征是"千瘤千面":同一张病理切片上,EGFR 扩增的克隆区和假性非整倍体区可以相邻共存。要理解肿瘤异质性,你需要在同一张切片、同一个像素上同时知道:这里基因组结构怎么变(CNV/SV)、这里表观状态如何(可及性)、这里是什么细胞。
Spatial-ATAC-Hi-C 就是为填这个断层设计的。
二、核心设计:一套条形码,两种信息
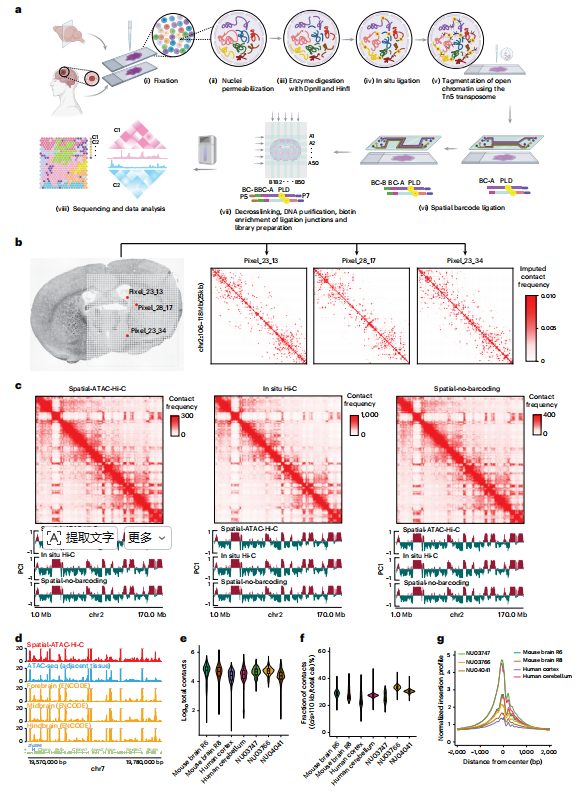
▲ 图1:Spatial-ATAC-Hi-C 工作流与数据质量基准。a,微流控双条形码 + Tn5 原位转座的完整流程;b,单像素(5 Mb)分辨率的 Hi-C 接触图;c,与 in situ Hi-C、无条形码对照高度一致;d–g,ATAC 数据质量、每像素接触数与 TSS 富集。
技术流程可以拆成四步理解(图1a):
- 固定与透化:新鲜冷冻切片固定在载玻片上,甲醛交联保住天然染色质折叠,随后核透化; - 原位连接:DpnII/HinfI 酶切后,在同一张切片上做邻近连接(proximity ligation),把空间上接近的染色质片段连起来——这就是 Hi-C 的"记录 3D 折叠"一步; - Tn5 原位转座:用组装好的 Tn5 转座体直接在切片上片段化开放染色质——这一步同时完成两件事:片段化连接产物(代替 Hi-C 的超声打断,因为玻片上没法超声),顺便把 ATAC-seq 的"开放染色质优先"偏好带进文库; - 微流控双条形码:水平 A1–A50、垂直 B1–B50 两套条形码经微通道依次流过组织表面,形成 50×50 = 2,500 个像素的二维网格,每个像素约 50 μm。
巧妙之处在于"一石二鸟":传统 Hi-C 需要把 DNA 提取出来超声打断建库,而Spatial-ATAC-Hi-C 用 Tn5 直接在组织上转座,被片段化的优先就是开放染色质。于是同一个文库里,连接产物携带 3D 折叠信息,Tn5 插入位点携带可及性信息——不需要分成两张连续切片分别测,天然同像素配对。
数据质量过得硬吗?作者做了三层基准(图1c–g):
- Hi-C 接触图、PC1(A/B 区室)、insulation score 与 bulk in situ Hi-C、无条形码对照高度一致,说明条形码步骤不引入结构偏差; - 假性 bulk ATAC 与 adjacent 切片 bulk ATAC 的 Spearman 相关达 0.895,TSS 富集和核小体周期性清晰;与 Dip-C(提取 DNA 后转座)相比一致性也很高,说明原位转座这一"非标准"步骤不破坏接触图; - 每像素中位总接触数 25,343–58,403,其中 88–90% 为染色体内接触,24–33% 为长程(>10 kb)接触;ATAC 每像素中位 unique fragments 34,596–90,465。
一个值得注意的细节:因为 Tn5 偏好开放染色质,Spatial-ATAC-Hi-C 的 reads 在开放区的富集(4.5%)确实高于 in situ Hi-C(2.6%),62% 的 chromatin loop 可共享——即 loop 水平基本一致、开放区略富集。作者把这个"偏向"如实报告,而不是回避。
三、小鼠脑:两条聚类路径互相印证
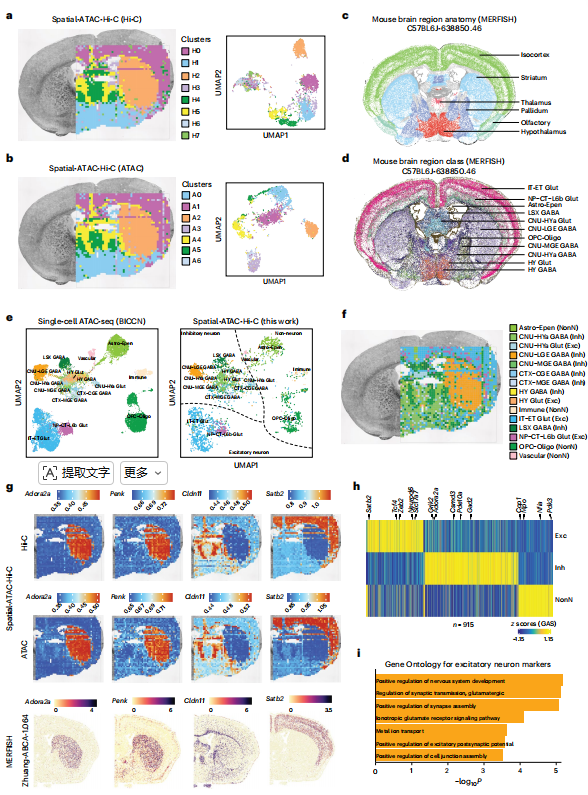
▲ 图2:小鼠脑冠状切片的空间细胞类型解析。a–b,基于 Hi-C(GAD score)与 ATAC(GAS score)的无监督聚类空间分布与 UMAP;c–d,Allen 脑图谱解剖与细胞类别注释;e–f,投射到 scATAC-seq 图谱获得像素级细胞类型;g,标志基因 GAD/GAS/MERFISH 三方对照;h–i,三类细胞的差异基因与 GO 富集。
把平台用在小鼠脑冠状切片(含前下丘脑的 R6 区域)上,作者用两套独立指标分别聚类:
- Hi-C 侧:计算每个基因区域的基因关联结构域得分(GAD score),得到 8 个 Hi-C 簇; - ATAC 侧:计算基因活性得分(GAS),得到 7 个 ATAC 簇。
结果是漂亮的双向验证:两条完全独立的聚类路径,给出的空间分布高度一致——纹状体区域、同皮层区域各自被同一套边界划分。把每个像素的 ATAC 数据投射到已发表的小鼠脑 scATAC-seq 图谱,还能拿到像素级细胞类型注释(兴奋性神经元、抑制性神经元、非神经元三大类,16 种主要细胞型),且与 MERFISH 空间数据互相印证。
标志基因的空间模式是检验"双模态一致性"最直观的例子(图2g):纹状体中棘神经元标志基因 Adora2a 和 Penk,在 GAD(Hi-C)、GAS(ATAC)、MERFISH 三套数据里都精确落在纹状体;少突胶质细胞标志 Cldn11、皮层锥体神经元标志 Satb2 同样三方一致。
换句话说:染色质"关着的部分"(Hi-C)和"打开的部分"(ATAC)划出的细胞边界,跟原位杂交金标准画出来的完全重合。
四、每个细胞类型有自己的一套 3D 折叠
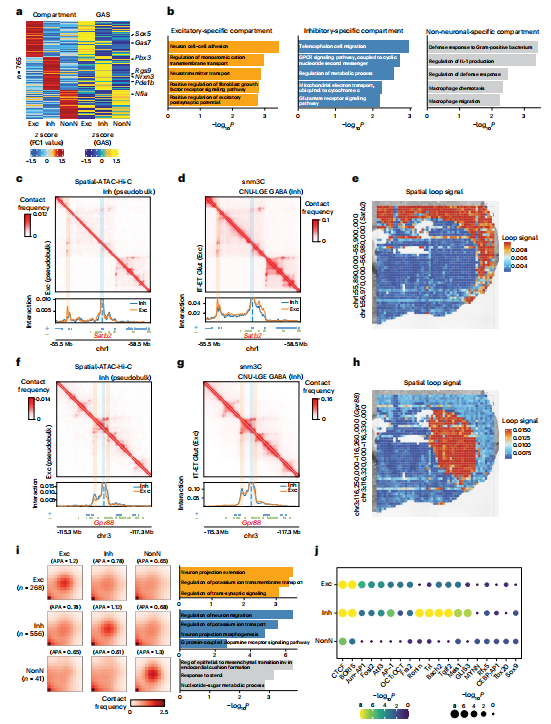
▲ 图3:小鼠脑 3D 基因组的空间异质性。a–b,细胞类型特异 A/B 区室及其 GO 富集;c–d,兴奋性神经元特异的 Satb2 环(Spatial-ATAC-Hi-C 与 snm3C 双重验证);e,Satb2 环信号的同皮层像素特异分布;f–h,抑制性神经元特异的 Gpr88 环;i,三类细胞特异 loop 的 APA 与 GO;j,loop 锚点开放区的转录因子 motif 富集。
这是全文最有概念突破感的部分。A/B 区室传统上被当作"全细胞共享"的基因组骨架,但 Spatial-ATAC-Hi-C 显示:同一个脑切片里,不同细胞类型的 A/B 区室有可测量的差异。全基因组共鉴定 1,683 个细胞类型特异区室区域,其中 765 个区域的 PC1 值与基因活性显著相关。功能上讲得通:兴奋性神经元的特异区室富集突触功能相关通路,抑制性神经元富集端脑细胞迁移与 GPCR 信号,非神经元(主要是小胶质细胞成分)富集免疫防御与白细胞介素-1 调节。
chromatin loop 的细胞类型特异性更精彩(图3c–h):
- Satb2 环(兴奋性特异):Satb2 启动子与约 1 Mb 外的一个远端开放区形成环,兴奋性神经元中的互作显著强于抑制性神经元(ANOVA,P = 6.87×10⁻⁶);单像素水平上,这个环的信号特异性集中在同皮层(isocortex)的像素里; - Gpr88 环(抑制性特异):抑制性神经元特异的 Gpr88 基因环,信号集中在纹状体像素。
关键的是,这两个环都拿到了独立验证:用单细胞甲基化-HiC(snm3C)数据按同样细胞类型做 pseudobulk,Satb2/Gpr88 环在对应细胞类型中同样存在(图3d、g)——空间平台看到的东西,单细胞 3D 基因组图谱能看到一致的。
数量上,R6 切片共鉴定 268 个兴奋性特异、556 个抑制性特异、41 个非神经元特异的 chromatin loop;loop 锚点开放区的 motif 分析显示,兴奋性环富集 Jun-AP1/Fosl2(活性依赖转录程序),抑制性环有各自的特征 motif(图3j)。这是首次在组织切片上,把"哪个细胞类型的哪个增强子环到哪个启动子"画到空间坐标上。
五、临床首秀:一张玻片分辨两种肿瘤
▲ 图4:同一载玻片上两个相邻肿瘤样本的拷贝数解析。a,星形细胞瘤(NU04707)与 GBM(NU04741)相邻切片同片实验设计;b,样本来源的空间聚类;c,Spatial-ATAC-Hi-C 单像素 CNV 与 WGS 验证高度一致;d–e,五个聚类及其空间分布;f,全染色体 CN ratio 热图。
方法的临床价值在 Figure 4 用一个很聪明的实验展示:把星形细胞瘤(NU04707)和 GBM(NU04741)的相邻肿瘤切片放在同一张载玻片上,看平台能否仅凭数据就把两种肿瘤分开、并检出各自的 CNV。
结果:
- 五个聚类(C0–C4)中,C0 主要来自星形细胞瘤样本,C1/C3 主要来自 GBM——纯靠数据完成样本区分; - 单像素(100 kb 分辨率)CNV 曲线与 WGS 全外显子验证高度一致:GBM 样本检出 chr9 的 CDKN2A/CDKN2B 纯合缺失和 chr12 的 CDK4 扩增,星形细胞瘤样本则没有——这些都是胶质瘤分类分级的教科书级标志; - 全染色体 CN ratio 热图(图4f)把每个聚类的拷贝数指纹铺满 22 条染色体加 X 染色体。
"同一张玻片、相邻切片、两个不同病人来源的肿瘤被各自识别并给出各自的 CNV 谱"——这说明条形码网格的空间定位精度足以支撑临床级别的分子病理对比。
六、GBM 空间 3D 基因组:把癌基因扩增画到像素上
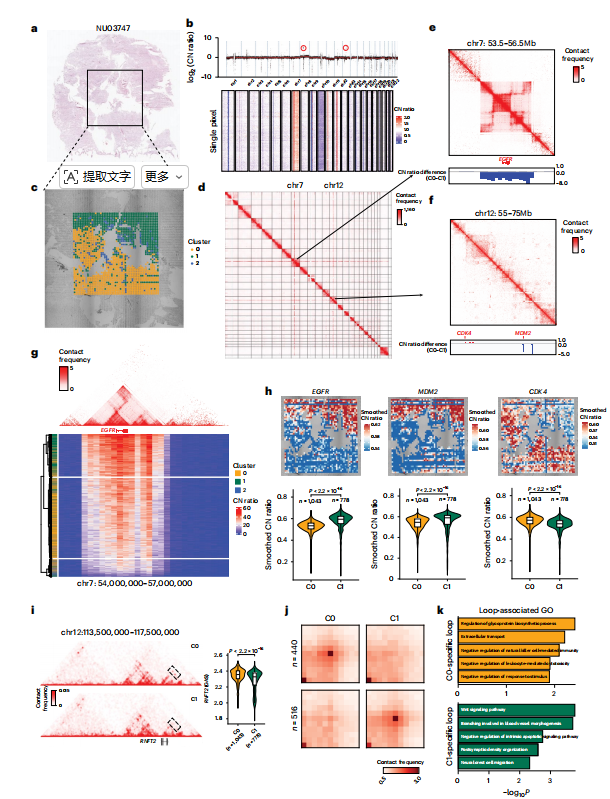
Figure 5 把平台推进到真实 GBM 样本(NU03747),每个像素中位 45,287 条 Hi-C reads 与 9,466 条 ATAC reads,全样本 1.41 亿 unique Hi-C read pairs。几个层层递进的发现:
- 焦点扩增的空间地图:GBM 标志性的 chr7 与 chr12 focal amplifications 在 Hi-C 接触图上呈现独特的"条纹样"(stripe-like)结构(图5d)——扩增区与基因组其余部分形成异常高频互作。既往单细胞 Hi-C 研究提示这类 ecDNA(染色体外 DNA)倾向附着于染色体;空间数据现在直接显示这些高拷贝区在组织里的位置; - 拷贝与转录增强子的耦合:EGFR、MDM2、CDK4 三个癌基因的位点,在高拷贝像素中形成高互作;EGFR 拷贝数在 C1 克隆像素中显著高于 C0(P = 2.2×10⁻⁵⁸),MDM2/CDK4 同样(图5h); - 克隆特异染色质环:C0 特异 440 个、C1 特异 516 个 chromatin loop(图5j–k)。C0 的环富集免疫反应、自然杀伤细胞介导细胞毒性通路;C1 的环富集 Wnt 信号。C1(高 EGFR 拷贝的恶性克隆)在自己的 3D 结构里把 Wnt 通路环得更活跃——这是"基因组结构改变 → 表观重编程 → 通路激活"在空间上的直接呈现; - 跨样本验证:另一例 GBM(NU03766)用同样流程复现了假性 bulk 层面的 CNV 和 chr1/chr7 扩增(Supplementary Fig. 4d),说明不是单样本的偶然。
把图4和图5连起来看,这个平台实际上给神经肿瘤病理提供了一种新能力:在一张 H&E 已经看过的切片旁边,把克隆结构、癌基因剂量、3D 基因组重排和表观状态放进同一套空间坐标系。
七、局限与下一步(作者自己怎么说)
Discussion 部分的自我评估相当坦诚:
- 分辨率:当前像素 50×50 μm,约含 3–21 个细胞,达不到单细胞;Stereo-seq 可到 220 nm 但面积小、Atera 到 10 μm。作者提出把像素缩到 10×10 μm 是下一步优化方向; - 组织面积:当前 5×5 mm,不及 Visium(11×11 mm)和 Atera(up to 5 cm²)——全脑冠状面要分块测; - 样本类型:尚未在 FFPE 包埋组织优化(石蜡包埋的 archive 样本还进不了);paraffin-embedded FFPE 平台如 spatial H&E、Atera Stereo-seq、PatHo-DBiT 已适配 FFPE,是明确的追赶点; - 细胞类型盲区:protocol 未检出人类小脑的浦肯野层(Purkinje layer)——近单细胞分辨的方法可以检出,说明 50 μm 像素对稀有大细胞类型仍偏粗; - 交叉比对:与单细胞 3D 基因组技术(Dip-C 等)相比,Spatial-ATAC-Hi-C 识别的细胞簇更少,但换来的是完整组织上下文——作者把它定位为"互补而非替代"。
写在最后
Spatial-ATAC-Hi-C 的价值不在于某一项指标世界第一,而在于"同一像素、同一坐标"这个约束本身就是新维度:Hi-C 和 ATAC 从两张连续切片分别测,永远存在像素对不齐、克隆对不上的问题;现在两种信息天然配对,"这个像素基因组结构是扩增的,同时它的染色质打开模式是 Wnt 高活的"这样的因果链第一次可以被直接观察。
对做空间组学、3D 基因组、神经肿瘤的朋友,这篇文章值得精读的点:双模态数据的基准设计(in situ Hi-C、no-barcoding、Dip-C、bulk ATAC 四重对照)、GAD/GAS 双指标聚类的分析框架、以及"同片双样本"的临床验证思路。
论文:Wang P, Wang J, Wang Q, et al. Spatial chromatin architecture and accessibility co-profiling of mammalian tissues. Nature Methods 23:2015–2028 (2026). doi: 10.1038/s41592-026-03217-4