
 English
文献解读|Cell(45.1):早期人类皮层代谢图谱揭示了糖酵解重塑和磷酸戊糖途径对细胞命运转变的控制
✦ +
+
论文ID
原名:Metabolic atlas of early human cortex reveals glycolytic remodeling and pentose phosphate pathway control of cell fate transitions
译名:早期人类皮层代谢图谱揭示了糖酵解重塑和磷酸戊糖途径对细胞命运转变的控制
期刊:Cell
影响因子:45.1
发表时间:2026.08.04
DOI号:10.1016/j.cell.2026.07.023
背 景
干细胞分化需要基因表达和信号传导的协调配合。基因组学和单细胞研究已经明确了人类皮层发育过程中出现的细胞类型;然而,代谢状态如何与细胞命运相关联并调控细胞命运仍不清楚。啮齿动物研究表明代谢驱动着关键的转变,但人类发育皮层的代谢机制仍未得到充分研究。
实验设计
结 果
01
利用培养的人类原代组织构建代谢图谱
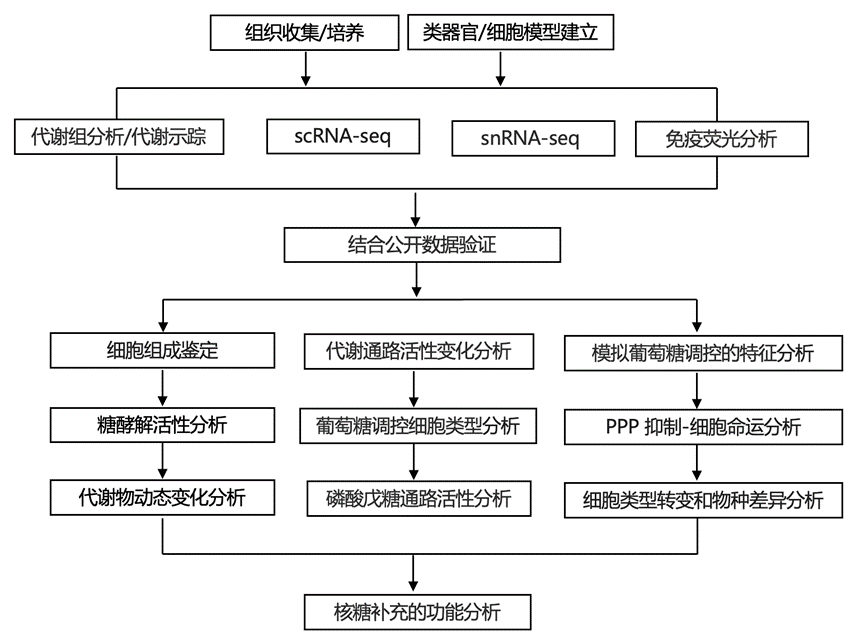
为了构建人类皮层发育图谱,研究团队对发育期死后人类原代皮层组织(HPCT)进行解离和培养,以便进行免疫荧光(IF)、Seahorse 分析以及基于液相色谱-质谱(LC-MS)的代谢组学和代谢示踪测量(图1A)。他们对31例患者样本进行了发育阶段(DP)的特征分析:神经管形成和神经管闭合(DP1:妊娠6-9周[GW])、神经发生起始(DP2:GW 10-12)、神经发生高峰期和祖细胞多样化(DP3:GW 13-15;DP4:GW 16-18)、神经元成熟(DP4-DP5:GW 19-20)以及胶质细胞发生起始(DP4-5)(图1B)。人类皮层发育的详细特征已得到充分综述,并且大量的单细胞转录组分析(scRNA-seq)研究已绘制出这些发育阶段/妊娠周(DP / GW)的细胞类型转变图谱。
对各个DP进行了广泛的免疫荧光染色和定量分析。DP1主要由GFAP+神经上皮细胞组成,在DP2-3中逐渐分化为放射状胶质细胞和早期神经元,并高表达祖细胞标记物SOX2、FOXG1和PAX6(图1 C)。不出所料,DP4-5样本表达了新生星形胶质细胞的标记物、更成熟的祖细胞(如HOPX+ oRG)以及成熟神经元的标记物,包括CTIP2+深层神经元和SATB2+上层神经元(图1 C-D)。为了将HPCT培养的细胞类型与现有的人类发育皮层scRNA-seq数据集进行比较,他们将细胞组成与预期的神经细胞类型分布进行了比较,发现两者高度相似。
Seahorse 分析评估了 DP 各阶段的代谢变化,通过检测细胞外酸化率 (ECAR) 作为糖酵解的间接指标,以及氧化磷酸化 (OXPHOS) 的耗氧率 (OCR) 来评估代谢变化。在同一 DP 内,由于 HPCT 的获取和处理方式,重复实验的结果大多一致,但仍观察到一些变异。基础 OCR 和 ATP 偶联 OCR 在整个 DP 阶段显著增加(图 1 E),这与神经干细胞 (NSC) 向神经元分化过程中能量需求的增加相一致。这与最近发表的人类皮层发育元图谱中 OXPHOS 基因程序的增加相对应,但在妊娠第 18 和 19 周(GW18 和 GW19)时,神经元中线粒体的数量没有显著增加。ECAR 总体呈下降趋势(图 1 F),与糖酵解基因程序的减少相关。在DP4时ECAR增加,此时oRG细胞数量达到峰值,上层神经发生正在进行中,DP4时OCR/ECAR比值显著降低(图1F)也印证了这一点。许多此类发育转变在DP3时已经开始,这表明DP4具有独特的代谢特征,而这些特征无法完全用细胞类型组成来解释。
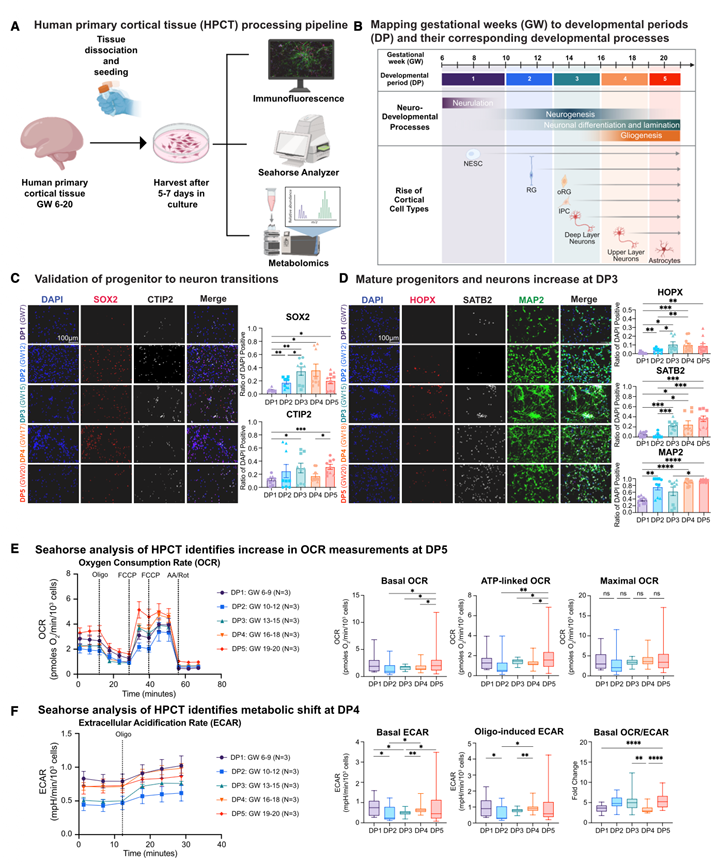
图1. HPCT 处理流程可实现跨 DP 的代谢测量。
(A)人类原代皮质组织(HPCT)处理流程示意图。共对31个样本进行了表征。其中10个样本在所有模态下均具有匹配数据,30个样本至少测量了两种模态。每个样本均为一个生物学重复。(B)感兴趣DP及其相应的妊娠周(GW)和脑发育过程。(C) 在第7、12、15、17和20孕周(DP1-5)对接种的HPCT细胞进行SOX2(祖细胞)、CTIP2(深层神经元)和DAPI染色后的免疫荧光图像。比例尺,100 μm。(右图)SOX2或CTIP2阳性细胞与DAPI阳性细胞的比例。(D) 在第7、12、15、18和20孕周(DP1-5)时,对接种的HPCT细胞进行免疫荧光染色,分别检测HOPX(外层视网膜神经节细胞)、SATB2(上层神经元)、MAP2(泛神经元)和DAPI。 (E) 使用 Seahorse 软件分析 HPCT。(F) 基础 OCR/ECAR 比率作为代谢平衡的指标。
02
HPCT的代谢组学分析显示,其代谢物在发育过程中发生动态变化
他们对铺板的HPCT进行了LC-MS代谢组学和代谢示踪分析(使用13C6 -葡萄糖或13C5-谷氨酰胺示踪剂),检测了15条代谢通路中的126种代谢物(图2A)。通过scRNA-seq,验证了铺板的细胞类型与原始组织保持一致。在3个个体中,仅有6种代谢物在铺板后发生持续改变:甘氨胆酸、丙酸、戊酸异构体、胍基乙酸、磷酸肌酸和半胱氨酸亚磺酸。为了评估氧化应激(类器官整体健康状况的指标)在样本中的体现情况,他们分析了谷胱甘肽(GSH)与二硫化谷胱甘肽(GSSG)的比值,该比值反映了抗氧化剂与活性氧的比值。在不同的处理设置中没有观察到 GSH/GSSG 比率的显著变化,这表明平板代谢谱反映了完整的 HPCT。
氨基酸相关代谢物的丰度随发育阶段和DP而发生特异性变化(图2B)。组氨酸、半胱氨酸和酵母氨酸(saccharopine)的含量随时间推移而增加。组氨酸和半胱氨酸分别是组胺和硫化氢的前体,而组胺和硫化氢是参与神经元活动和突触功能的神经调节剂。糖精的代谢对于神经元发育也至关重要,因为其积累会损害树突分支。在本研究的数据中,糖精含量在DP4达到峰值,随后下降,这与所取样阶段的神经元扩张相吻合(图2B)。
S-腺苷甲硫氨酸(SAM)循环也受到发育调控。SAM支持表观遗传调控、核苷酸生物合成和膜脂稳态。胱硫醚在DP2至DP4阶段升高(图2C),这与催化胱硫醚生成的胱硫醚β-合成酶(CBS)的转录峰值相吻合。这种偏移表明CBS表达有助于胱硫醚的动态变化,但并不能完全解释其变化。先前关于CBS在神经上皮细胞和视网膜神经节细胞(RG)中表达的报道进一步支持了其在发育中的相关性。与此一致的是,半胱氨酸随时间推移而增加(图2B),而丝氨酸则保持相对稳定(图2C)。
皮层发育后期脂肪酸含量增加,这与先前将脂质积累与干细胞状态退出联系起来的研究结果一致(图2D)。虽然乙酰辅酶A保持相对稳定,但个别脂肪酸含量增加,包括棕榈酸,棕榈酸是一种含量丰富的脑脂质,参与多种信号通路(图2D)。
稳态三羧酸循环(TCA循环)代谢物随发育年龄的增长而减少(图2E),但同位素示踪显示,在发育后期,葡萄糖对TCA循环的贡献持续增强(图2E)。因此,丰度降低可能反映的是周转率增加,而非通路利用率降低。TCA基因模块评分也降低(图2E),这表明转录程序可能无法直接反映代谢通量。虽然TCA中间体含量较低,但OXPHOS活性(图1E)和OXPHOS基因模块评分在发育过程中均有所增加。这些发现与先前关于祖细胞向神经元转变过程中TCA中间体含量降低以及小鼠发育脑中TCA活性动态变化的报道相一致。综上所述,这些例子支持将该图谱作为分析人类发育皮层代谢的资源。
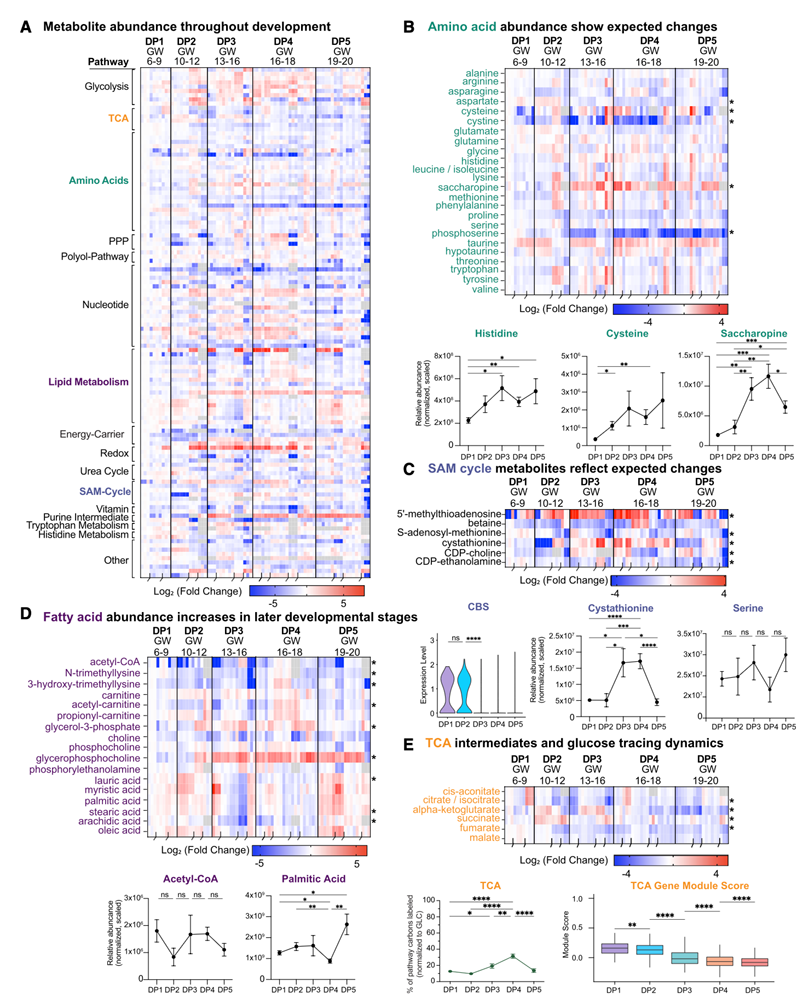
图2. 代谢组学揭示了人类皮层发育过程中的动态通路。
(A) 126种靶向代谢物在不同发育阶段的热图。(B) 氨基酸丰度子集;热图(上),平均折线图(下)。(C) SAM循环代谢物子集。(D) 脂质代谢相关代谢物子集。(E) 三羧酸循环代谢物子集(上图),基因模块评分(下)。
03
皮质类器官代谢图谱
皮质类器官是利用干细胞构建的人类大脑发育模型。他们采用了一种与先前报道的类似的皮质类器官构建方案(图3A)。基于现有的基准数据,他们将时间点与HPCT DP相匹配,分别为第5周(祖细胞扩增和神经发生起始)、第8周(神经发生高峰和祖细胞多样化)、第10周(上层神经发生)、第12周(胶质细胞发生起始)和第15周(神经元和胶质细胞成熟),并构建了皮质类器官的平行代谢图谱。
他们对三种细胞系(人胚胎干细胞[hESC]和诱导多能干细胞[iPSC],雄性和雌性)在第5、8、10、12和15周的皮质类器官代谢关键特征进行了表征。他们使用免疫荧光(IF)验证了类器官的皮质特性(图3B)。Seahorse分析显示,糖酵解和氧化磷酸化(OXPHOS)的一些特征得以保留,包括基础耗氧率(OCR)的普遍升高。然而,类器官的细胞外酸化率(ECAR)随时间推移而增加,而HPCT细胞系在第4周出现一个特异性峰值(图1E)。使用相同的液相色谱-质谱/示踪分析流程,检测了123种代谢物。比较了匹配时间点之间的差异倍数:类器官第8、12和15周与第5周相比,以及HPCT DP3、DP4和DP5与DP2相比,然后将代谢物趋势分为保持不变或相反两类。约80%的代谢物在原代组织和类器官之间表现出相似的动态变化或无显著差异(图3 D)。趋势相同的代谢物涵盖了大多数通路,而另一组通路则包含趋势相反的代谢物(图3 D)。这些数据表明,皮质类器官可用于研究发育中人脑的代谢转变,但应在考虑这些显著差异后选择通路和时间点。
在类器官和HPCT中,磷酸烯醇式丙酮酸上游的大多数糖酵解中间体的变化趋势相似(图3E),而两种下游代谢物(磷酸甘油酸和丙酮酸)的变化趋势则相反。类器官中糖酵解代谢物总量随发育时间的延长而增加,而原代组织在DP4达到峰值(图3E)。与HPCT的DP3和DP4相比,皮质类器官在第8周和第12周时,与糖酵解和三羧酸循环相关的代谢物的动态变化趋势得到了很好的保留,但这种保留在第15周时有所减弱,此时近一半的三羧酸循环代谢物的变化方向与HPCT相反(图3F)。
13C6-葡萄糖富集分析显示,类器官中糖酵解途径碳的标记百分比高于原代组织,尤其是在第5周(图3G)。此外,基于该类器官示踪分析的途径活性分析表明,类器官中该途径的利用率随时间推移而降低。13C6-葡萄糖富集分析还显示,类器官中三羧酸循环的标记水平普遍较高,并随时间推移而降低(图3G)。而在HPCT中,三羧酸循环示踪剂的富集在DP4达到峰值。值得注意的是,在DP4/第12周的匹配时间点,两个系统对糖酵解和磷酸戊糖途径(PPP)的碳贡献相似。其他从糖酵解分支出来的途径,例如PPP和核苷酸代谢,也呈现出类似的趋势。为了探究这些途径是否可能来源于其他碳源,他们还加入了13C5-谷氨酰胺标记。然而,他们发现大多数途径中的标记很少,这与葡萄糖是这些途径的主要碳源相一致。
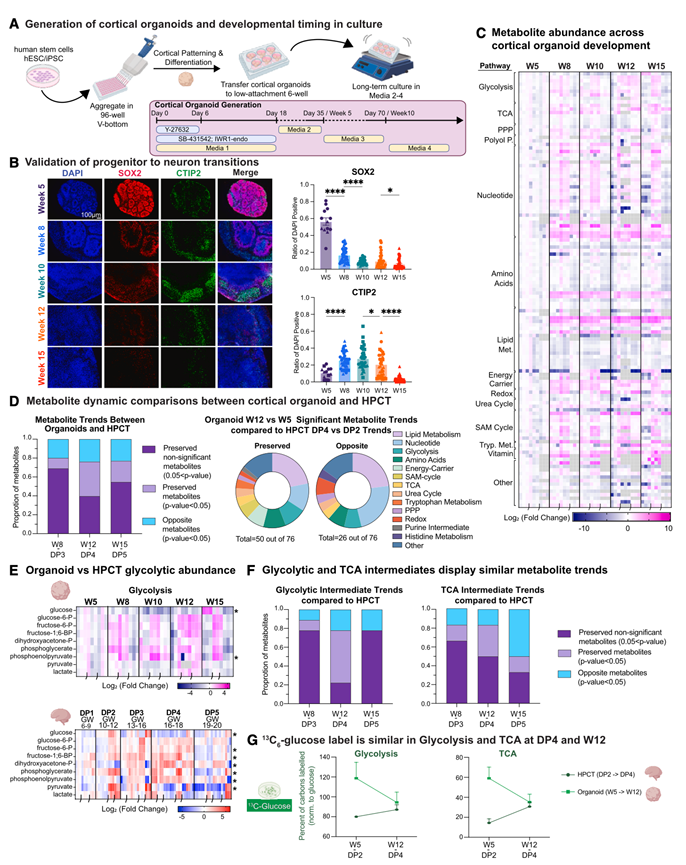
图3. 类器官重现了HPCT的关键代谢过程。
(A) 示意图,说明由 hESC/iPSC分化而来的皮质类器官。(B) 在第 5、8、10、12 和 15 周,对皮质类器官进行 SOX2、CTIP2 和 DAPI 染色后的免疫荧光图像。SOX2 或 CTIP2 阳性细胞与 DAPI 阳性细胞的比例。(C) 123种靶向代谢物在第5-15周的热图。(D) 类器官与HPCT代谢物趋势的一致性:在DP3-5期间显著保留/相反/未保留(左图)。(右图)通路水平组成,类器官第12周与第5周对比HPCT DP4与DP2。(E) 糖酵解代谢物热图,类器官(上)和HPCT(下)。(F)糖酵解/三羧酸循环一致性图,源自(D)。(G) 13C6-葡萄糖衍生的碳掺入糖酵解和三羧酸循环代谢物、HPCT(深绿色)和类器官(浅绿色)。
04
操纵类器官培养基中的葡萄糖会改变细胞类型
研究表明,神经干细胞通常倾向于糖酵解代谢,但在神经分化过程中会转向OXPHOS。此外,干细胞培养基中低葡萄糖水平已证实能够促进其他组织(包括心肌)的成熟。然而,在人类皮层发育的背景下,葡萄糖、分化、细胞类型特性以及营养物质供应之间的联系尚未得到充分研究。
他们将主要富含视网膜RG的第5周类器官长期暴露于三种葡萄糖浓度下:17.5 mM(标准培养基葡萄糖浓度)、8.75 mM(低葡萄糖浓度)和2.5 mM(脑内生理葡萄糖水平)。他们进行了与之前相同的分析,这次还加入了单细胞核转录组分析(snRNA-seq)(图4A)。免疫荧光分析显示,在低葡萄糖浓度下,深层神经元(CTIP2+)显著减少;而在2.5 mM葡萄糖浓度下,星形胶质细胞(GFAP+)增加;在8.75 mM葡萄糖浓度下,视网膜神经节细胞(oRG)群体(HOPX+)显著增加(图4B)。在2.5 mM葡萄糖浓度下培养的类器官中坏死核心更大,这可能表明其整体健康状况下降。
他们使用snRNA-seq对所有细胞系在不同培养基条件下的表达谱进行了分析,获得了81593个高质量细胞(图4C),观察到一些细胞具有明确的前脑细胞特征,并探讨了在不同细胞系、处理组和已验证的标记基因表达中的分布情况,结果与皮层细胞类型相符,发现细胞类型的变化与免疫荧光分析中观察到的结果相似:星形胶质细胞和oRG在至少一个较低葡萄糖浓度下增加。此外,他们还观察到IPC、分裂细胞、新生神经元和抑制性神经元的数量增加(图4C)。GO分析显示,在8.75 mM葡萄糖浓度下,RG细胞中与神经元发育和突触生物学相关的基因表达显著增加,表明这可能是RG细胞命运的转变。糖酵解相关基因模块在葡萄糖浓度降低时显著下调,而三羧酸循环相关基因表达增加。其他感兴趣的细胞标记物没有发生实质性改变。
Seahorse 分析显示,在 2.5 mM 条件下,基础 ECAR 降低,但 OCR 无显著变化。对 155 种代谢物的代谢组学分析显示,糖酵解代谢发生广泛变化,在较低葡萄糖水平下,PPP、多元醇途径和核苷酸中间体的下降幅度更大(图 4 D-E)。
他们进一步研究了PPP,发现该途径的核心代谢物——景天庚酮糖-7-磷酸(S7P)在低葡萄糖浓度下水平显著降低(图4F)。这与其他相关PPP代谢物(包括五碳糖磷酸,如核糖磷酸、核酮糖磷酸和木酮糖磷酸,统称为核糖/核酮糖/木酮糖磷酸或RRXP)的13C6-葡萄糖标记减少相一致。然而,观察到低葡萄糖浓度下13C6-葡萄糖衍生的标记S7P增加,这表明S7P和PPP在葡萄糖浓度降低时观察到的细胞类型转变中可能发挥重要作用(图4F)。低葡萄糖浓度并未显著改变GSH/GSSG的氧化还原状态。他们研究了葡萄糖含量降低对核苷酸合成的下游影响,发现单磷酸化和二磷酸化腺苷和尿苷核苷酸与三磷酸化腺苷和尿苷核苷酸的比率显著增加(图 4 F)。
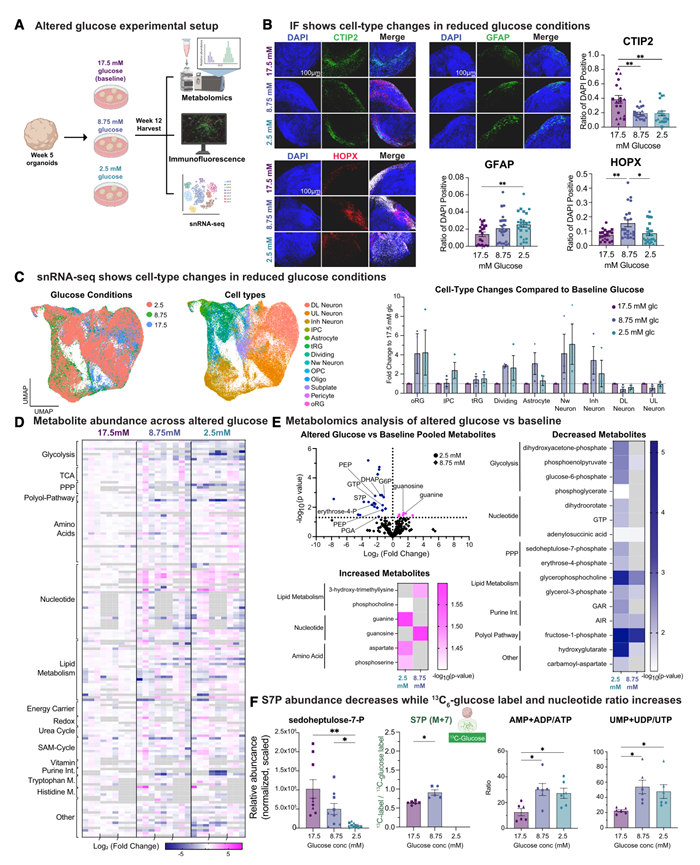
图4. 葡萄糖调控改变类器官细胞类型和PPP。
(A) 皮质类器官中葡萄糖操控实验示意图。(B) 免疫荧光图像,分别用 HOPX、CTIP2、GFAP 和 DAPI 染色。 (C) 第 12 周类器官中 81593 个细胞核的 UMAP 分析。(左图)细胞按条件着色。(中图)细胞类型:DL 神经元,深层神经元;UL 神经元,上层神经元;Inh 神经元,抑制性神经元;IPC,中间祖细胞;tRGs,截短放射状胶质细胞;Nw 神经元,新生神经元;OPC,少突胶质细胞祖细胞;Oligo,少突胶质细胞;oRG,外放射状胶质细胞。(右图)相对于 17.5 mM 对照组的细胞类型变化。(D) 155种目标代谢物在不同葡萄糖浓度下的热图,以相对于17.5 mM的log₂倍数变化表示。 (E)(左上)差异代谢物的火山图,8.75 mM(菱形)和 2.5 mM(圆形)葡萄糖与 17.5 mM 对照组相比。(F) (左)S7P 丰度。(中) S7P 的13C6-葡萄糖衍生标记(M + 7)。(右)单磷酸化/二磷酸化与三磷酸化腺苷和尿苷核苷酸的比例。
05
PPP在人类皮层发育的各个系统中表现出时间特异性的动态变化
PPP 由两个主要分支组成:氧化分支生成 NADPH,它是许多生物合成反应以及 GSH/GSSG 氧化还原循环的关键还原剂,而非氧化分支则参与核苷酸合成,通常满足高度增殖细胞对核苷酸的需求(图 5 A)。
在HPCT中,PPP在DP4达到峰值(图5B),各代谢物的丰度也均在DP4达到峰值(图5C)。13C6的6-磷酸葡萄糖酸(6PG)和RRXP的同位素异构体保持稳定,而S7P的丰度则随时间推移而普遍增加(图5C)。NADPH及其与NADP+的比值在DP4达到峰值,随后在DP5下降(图5D)。核苷酸模块评分随时间推移而降低(图S10B),而单磷酸核苷酸、二磷酸核苷酸与三磷酸核苷酸的比值在DP4也呈现类似的峰值,随后在DP5下降(图5D)。他们还观察到13C标记的嘌呤和嘧啶核苷酸的同位素异构体发生了显著变化。
在类器官中, PPP中间体和核苷酸的含量在相似的时间点增加(图5E),S7P的丰度在第12周达到峰值,同时13C标记减少(图5F),这与葡萄糖耗竭实验结果一致(图4F)。与原代样本相比,类器官中核苷酸比例的动态变化也类似,在发育后期,单磷酸和二磷酸与三磷酸的比例增加(图5G)。PPP和糖酵解峰值出现的时间一致,且在两个系统中均得以保留,这促使他们通过实验调控PPP,并检验其在RG细胞命运决定中的作用。
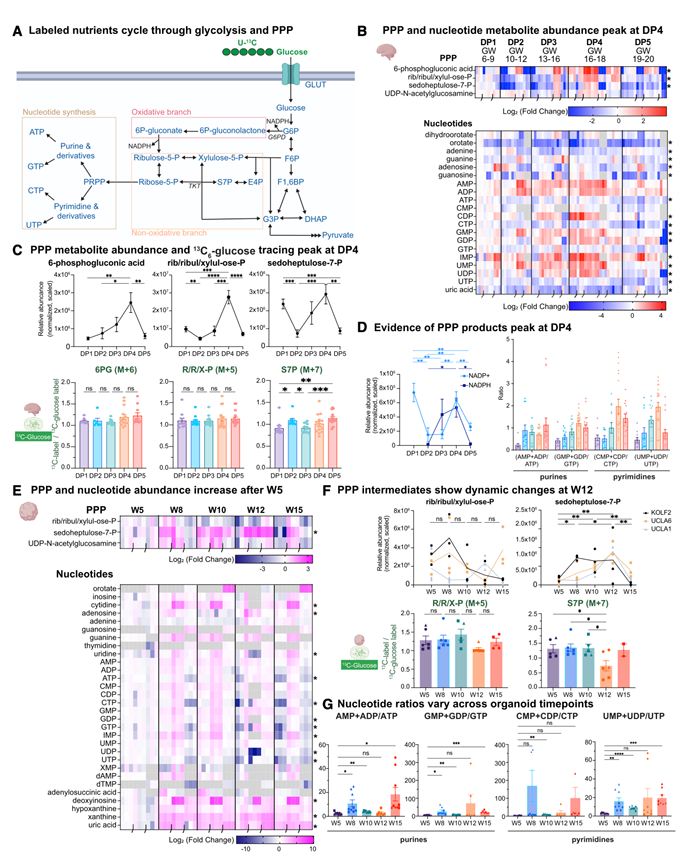
图5. HPCT 和模拟糖酵解的类器官之间 PPP 动态得以保留。
(A) 示意图说明糖酵解和磷酸戊糖途径;氧化分支(红色,NADPH 生成)、非氧化分支(橙色)和核苷酸生物合成(棕色)。(B) HPCT DP 中 PPP 和核苷酸相关代谢物热图,以相对于 GW6 的 log₂ 倍数变化表示。(C)(上图)6PG、核糖/核酮糖/木酮糖磷酸酯(RRXP)和S7P在不同聚合度(DP)下的丰度和葡萄糖标记情况。(下图)完全标记的同位素类似物。(D)(左)NADP⁺/NADPH 丰度和(右)不同 DP 中单磷酸化/二磷酸化与三磷酸化嘌呤/嘧啶核苷酸的比率。点表示技术重复,误差线表示 SEM。样本量与(B)相同。(E)类器官发育过程中 PPP(上图)和核苷酸相关(下图)代谢物热图。(F)(上图)五个类器官发育阶段的RRXP和S7P丰度。(G) 类器官发育过程中嘌呤/嘧啶核苷酸磷酸化比率。
06
药理学抑制PPP通路可模拟葡萄糖调控的关键特征
为了从功能上评估PPP对细胞命运和代谢的影响,他们使用6-氨基烟酰胺(6AN)抑制葡萄糖-6-磷酸脱氢酶(G6PD),并使用黄芩素A(ORX)抑制转酮醇酶(TKT),于第8周给药并持续至第12周(图6A)。免疫荧光分析显示,与DMSO组相比,药物处理组成熟神经元、星形胶质细胞和oRG细胞的数量显著增加(图6B)。
对106047个高质量细胞进行snRNA-seq分析,以研究细胞系和处理条件的分布,并验证其预期标记基因组成。细胞类型注释与之前相同,其动态变化与葡萄糖耗竭条件下的细胞类型变化平行。与葡萄糖耗竭条件下相似的通路也受到影响,但ORX抑制后这些通路表达下调。RG中应激反应通路的基因表达分析显示,未观察到GSH/GSSG比值显著降低,表明细胞命运的转变并非由细胞应激驱动。由于靶向TKT的ORX处理产生了更显著的细胞类型转变,他们重点关注了这种情况(图6C-D)。为了观察重编程之前的代谢变化(这在慢性药物治疗中很常见),在ORX处理后1周对类器官进行了代谢组学分析,并通过检测处理后的类器官中的ORX来验证代谢组学的灵敏度(图6E-F),并发现与PPP相关的代谢物减少,包括GSH、ATP和亚牛磺酸(图6F)。
药理学抑制提示RG成熟度的改变可能是细胞命运转变的基础。他们采用与测定类器官年龄相同的基于甲基化的分析方法来探究这一点,但未观察到显著差异(图6G)。然而,由于甲基化分析是整体检测,他们将RG成熟度模块应用于扰动实验,观察到ORX处理后转录成熟度显著增加(图6G)。
为了探究PPP是否影响RG细胞的命运决定,他们进行了一项实验,该实验使用了一种由增强子SRR2(SOX2调控区2)驱动的SOX2活性报告基因,该增强子已证实能够特异性地驱动SOX2的表达。SRR2报告基因使他们能够分离RG细胞。因此他们培养了带有SRR2-EGFP的类器官,并验证了SRR2-EGFP+细胞是SOX2阳性的RG细胞。然后,他们使用荧光激活细胞分选(FACS)从类器官中分离出这些细胞,并将它们接种到含有靶向G6PD或TKT的短发夹RNA(shRNA)的慢病毒载体中。他们通过实时定量PCR证实了基因敲低的有效性(图6H)。在验证纯化的细胞确实为 SOX2 阳性,并且很大程度上缺乏神经元标记物 CTIP2之后,专门检测了敲低这些 PPP 基因可能会如何影响 RG 细胞的命运和代谢。
将纯化的类器官细胞培养1周后,他们进行了scRNA-seq,获得了51105个高质量细胞(图6 I),还研究了这些细胞类型在不同细胞系和基因敲低条件下的分布情况。有趣的是,他们观察到一些与药物抑制相同的细胞类型变化,尤其是在oRG/星形胶质细胞聚类和抑制性细胞群中(图6 J)。随着TKT敲低,PPP模块评分显著降低,而核苷酸模块评分则升高。代谢组学分析显示PPP和核苷酸代谢物丰度降低,糖酵解代谢物丰度也意外降低(图6 K)。与抑制剂实验结果一致,他们观察到shG6PD和shTKT处理后ATP和亚牛磺酸均显著降低(图6 L)。在shG6PD处理组中,单磷酸核苷酸和二磷酸核苷酸(特别是腺苷)含量升高(图6 M)。此外,与shSCr组相比,shG6PD和shTKT处理组中糖酵解、PPP和核苷酸代谢物的13C标记含量也呈下降趋势。为了评估基因和药理 PPP 扰动之间反应的一致性,在 ORX 和 shTKT 样本中发现了一组共同的下调基因(图 6 N)。
两种基因敲低条件均导致原本就较低的对照组GSH/GSSG比值进一步降低,表明氧化应激进一步增强(图6M)。scRNA-seq分析证实了这一点,结果显示两种基因敲低条件下,多个应激通路均显著激活。这表明基因敲低过程会诱导应激,而通过基因扰动对PPP的强抑制会进一步增强这种应激反应;然而,细胞类型变化和关键代谢物与PPP抑制剂实验的结果一致,后者并未诱导应激通路。
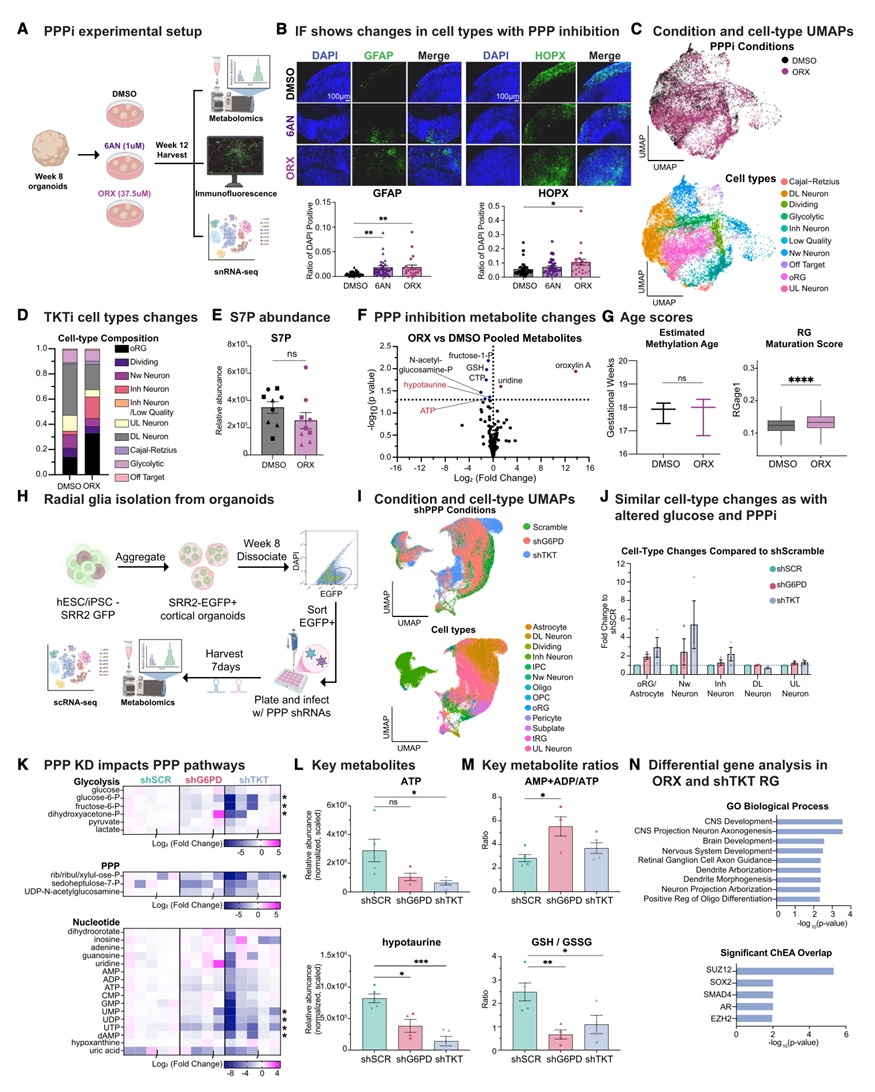
图6. PPP 调控 RG 细胞。
(A) 示意图说明了药理学 PPP 抑制。(B) 免疫荧光图像经GFAP、HOPX和DAPI染色。比例尺,100 μm。(C) 对来自第 12 周 PPPi 类器官的 16,173 个细胞核进行 UMAP 分析(n = 3 个细胞系,n = 3 个混合重复样本/条件)。(上图)所有细胞、DMSO 处理组和 ORX 处理组。(下图)图谱映射的细胞类型。(D) 细胞类型分数,DMSO 与 ORX。(E) S7P 丰度,DMSO 处理组与 ORX 处理组比较。(F) 差异代谢物的火山图,ORX 与 DMSO。 (G) 基于胎儿脑钟(FBC)和放射状胶质细胞成熟度分析的估计年龄评分。(左)预测的甲基化年龄,FBC流程。(右)放射状胶质细胞伪年龄(au;C 的子集)。(H) 通过 shRNA (shPPP) 分离 RG 和敲低 PPP 酶的示意图。(I) 51105 个细胞的 UMAP 在 shScr、shG6PD、shTKT 中;按条件(上图)、细胞类型(下图)进行分析。(J) 细胞类型倍数变化,G6PD或TKT敲低与配对的随机对照相比。(K) 糖酵解(上)、磷酸戊糖途径(中)和核苷酸相关(下)代谢物热图。(L) 敲低条件下ATP(上图)和亚牛磺酸(下图)的丰度。(M)(上图)腺苷核苷酸磷酸化比率。(下图)GSH/GSSG 比率。(N) 生物过程富集分析。
07
核糖补充可逆转PPP抑制,从而挽救基因程序、细胞类型和代谢
为了从机制上探究 PPP 抑制如何调节 oRG 的命运,他们将 ORX 治疗与代谢物补充相结合:维生素 C 和 N-乙酰半胱氨酸以减轻氧化应激(Antiox),核糖以恢复含核糖的中间体,以及核糖核苷/脱氧核糖核苷以支持核苷酸生物合成(Nuc)(图 7 A)。
从snRNA-seq中获得了47898个高质量细胞,并按照之前的方法进行了细胞类型分类(图7B)。在基因水平上,核糖对挽救oRG中因ORX而改变的基因具有显著作用,挽救了158个下调基因中的153个。抗氧化处理组对这些基因的挽救作用较弱,而核苷处理组几乎没有挽救作用(11/158)(图7C)。有趣的是,oRG的挽救作用与细胞类型挽救的程度相关,与ORX相比,核糖降低了oRG和抑制性神经元的比例(图7D)。抗氧化处理组部分减少了oRG和抑制性细胞类型,但同时也引入了大量低质量的、类似抑制性神经元的细胞。核苷处理组的细胞组成与仅使用ORX处理组基本一致(图7D)。代谢组学证实,核苷酸补充反映在细胞内代谢物库中,表明该处理已进入细胞。基于这种恢复模式,他们重点研究了核糖,并观察到该条件下恢复的基因模块包含许多与在ORX和shTKT条件下观察到的失调的生物学过程中(图7 E),其中包括5个共同失调的转录因子中的3个(SMAD4、SUZ12和AR)(图7 F)。这些数据尚不清楚核糖(而非下游核苷酸合成)如何驱动这种恢复的确切代谢机制。
在ORX显著改变的代谢物中,仅有两种(ATP和亚牛磺酸)在核糖补充条件下与DMSO组相比不再存在显著差异(图7G)。GSH/GSSG比值在核糖补充条件下与DMSO组相比也不再存在显著差异(图7H)。有趣的是,作为PPP通路核心代谢物之一的S7P在核糖补充条件下发生了显著改变,这表明ATP和亚牛磺酸(而非S7P)可能与ORX介导的基因表达恢复和细胞类型转变更为相关。然而,仍需进一步研究来阐明核糖代谢与其他信号通路之间的机制联系。
这些结果暗示了一种模型,其中由糖酵解供能的PPP抑制RG成熟并调节特定子细胞类型的生成。糖酵解和PPP代谢物在DP4达到峰值,而PPP抑制——无论是通过减少葡萄糖、药物治疗还是基因敲低——都会增加oRG和抑制性神经元的数量,而补充核糖可以挽救这种增加(图7 I)。
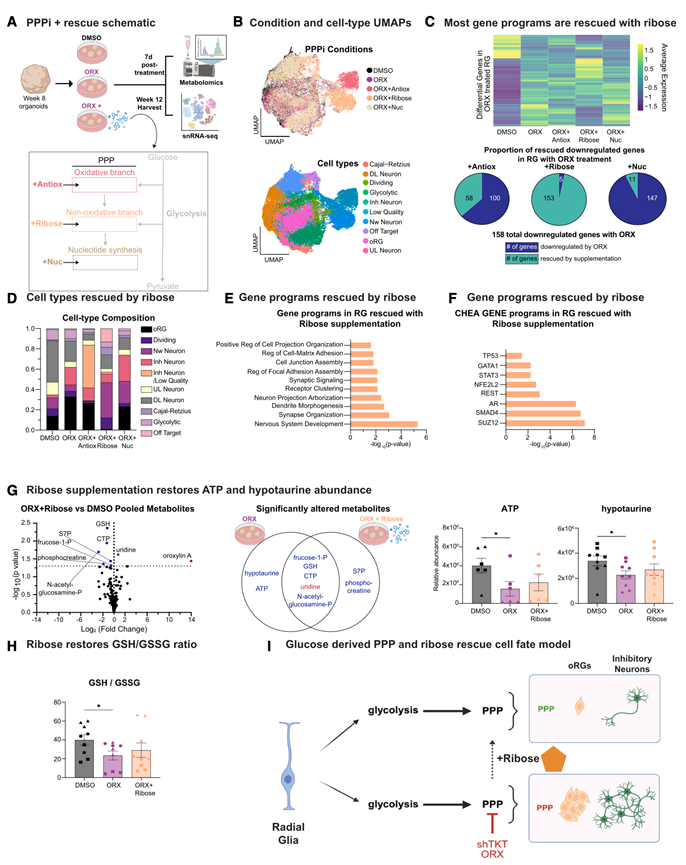
图7. 核糖补充可恢复基因程序和细胞类型组成。
(A) ORX 治疗结合靶向代谢补充的示意图。(B) 对第 12 周类器官中 47898 个细胞核进行 UMAP 分析。(上图)按条件划分的所有细胞。(下图)细胞类型。(C)(上图)与DMSO组相比,ORX和/或补充剂处理后差异表达的RG基因的平均标准化表达量。(下图)每种补充剂挽救的ORX下调基因的比例。(D) DMSO、ORX、ORX + Antiox、ORX + Ribose 和 ORX + Nuc 中的细胞类型分数。(E) ORX 下调、核糖恢复的 RG 基因的 GO分析。(F) ChEA 转录因子富集,核糖拯救的 RG 基因。(G)(左)火山图:ORX + 核糖组与 DMSO 组对比。(中)图 6F和 6G中 ORX 和/或 ORX + 核糖组中显著变化的代谢物维恩图。(右)PPP 抑制和核糖补充条件下 ATP 和亚牛磺酸的丰度。(H) PPP抑制和核糖补充条件下 GSH/GSSG 比值。(I) 示意图总结了 RG 中糖酵解-PPP 代谢输出关系以及核糖的拯救作用。
+ + + + + + + + + + +
结 论
本研究利用原代组织和干细胞衍生的皮层类器官构建了早期人类皮层的代谢图谱,观察到核心代谢功能的动态变化,包括在神经发生后期糖酵解和PPP活性的意外增强。调控皮层类器官中的葡萄糖供应会改变细胞类型组成,增加oRG和抑制性神经元的数量。通过药理学和基因手段抑制PPP酶,可以重现这些细胞命运的改变。核糖足以挽救RG的基因表达变化,恢复类器官的细胞类型组成,并提高ATP和亚牛磺酸的水平。这些数据揭示了PPP在调控RG细胞命运决定中的关键作用,并为未来探索人类皮层发育中的其他代谢通路提供了资源。
+ + + + +