
 English
文献解读|Cell(45.1):肌萎缩侧索硬化症中语言和执行功能衰退的不同细胞表型
✦ +
+
论文ID
原名:Distinct cellular phenotypes of language and executive decline in amyotrophic lateral sclerosis
译名:肌萎缩侧索硬化症中语言和执行功能衰退的不同细胞表型
期刊:Cell
影响因子:45.1
发表时间:2026.08.04
DOI号:10.1016/j.cell.2026.07.008
背 景
肌萎缩侧索硬化症(ALS)是一种致命的神经退行性疾病,其特征是运动神经元丢失,最终导致进行性瘫痪。约半数患者会出现一定程度的运动系统外受累,其临床表现谱系广泛,从认知和行为正常的ALS患者到伴有额颞叶痴呆(ALS-FTD)的ALS患者均有分布。约35%的ALS患者属于中间谱系,其特征是轻度认知和行为障碍,包括语言障碍、执行功能下降和冷漠。脑成像和尸检分析表明,这些认知和行为特征可以预测大脑特定区域的潜在功能障碍,突显了ALS病理生理学的潜在区域易感性。然而,ALS 中观察到的临床表型是否源于共同的根本机制,还是源于大脑区域特异性的细胞、分子、神经病理学和遗传因素的相互作用,目前尚不清楚。
实验设计
结 果
01
研究概述和队列人口统计学特征
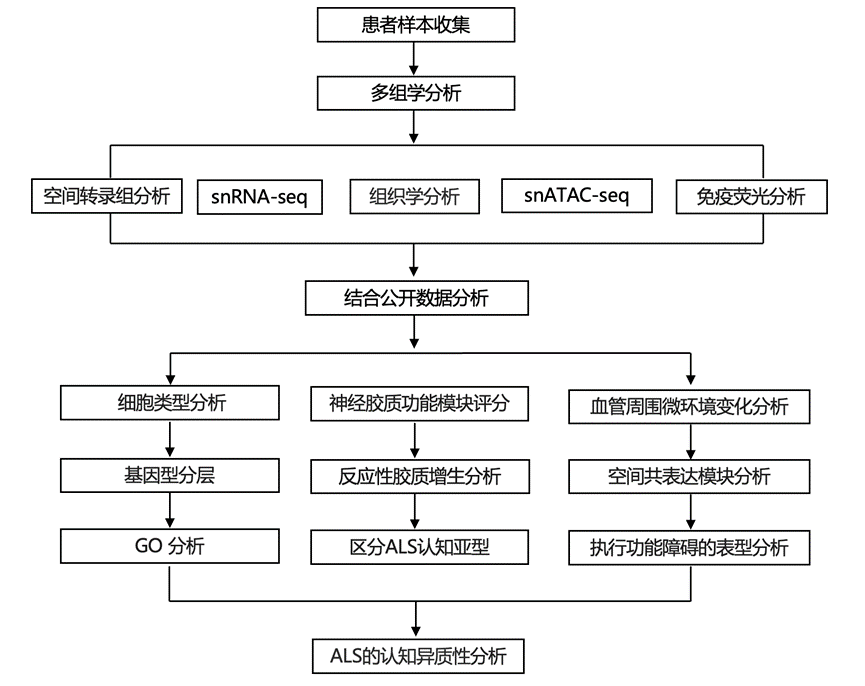
研究团队介绍了一组独特的肌萎缩侧索硬化症(ALS)患者队列,这些患者均接受了爱丁堡认知和行为ALS筛查(ECAS)的神经心理学测试。该临床评估工具可定量评估ALS常见的认知功能障碍,包括执行功能、语言和言语流畅性。ALS的认知缺陷与局部脑功能障碍和皮层下功能障碍相关,每位患者的认知变化特征可预测潜在的区域性异常。他们利用这种结构-功能关系,研究了与ALS特定认知功能障碍相关的分子和细胞特征。从背外侧前额叶皮层 (DLPFC) 的布罗德曼46区 (BA46) 取样,该区域支持决策和其他执行功能;同时,也从左半球下额回(布罗卡区)的布罗德曼44/45区取样,因为该区域与语言产生密切相关。结合空间转录组学 (ST) 和单细胞核转录组分析 (snRNA-seq) 技术,全面了解了ALS相关脑区(非运动区)的变化(图1A)。
脑组织样本均来自同一生物样本库——爱丁堡脑库——以确保保存的一致性和神经病理学评估的有效性。根据ECAS评分,将捐献者分为三组:认知功能正常的ALS患者(以下简称“ALS”;n = 19),代表纯运动症状;认知功能存在一个或多个认知领域障碍的ALS患者(“ALSci”;n = 17);以及年龄匹配的猝死神经正常对照组(n = 17)。
语言障碍是ALSci供体中最常受累的领域,这与已发表的文献一致(图1B)。供体数量在各临床组间分布均匀,观察到供体死亡年龄或病程与认知状态之间无相关性(图1C-D)。ALS和ALSci患者的生存期(从发病到死亡)相当(图1D)。基因分型和免疫组织化学分析表明,C9ORF72重复扩增和TDP-43病理均不能预测队列患者的认知状态(图1E-F)。
他们使用 10× Genomics 公司的 Visium 平台进行 ST ,并分析了来自 45 位供体的246 个 Visium 芯片(图2A-F)。每个脑区至少包含两个组织切片,且大多数脑区具有较高的重复性(每位供体每个脑区的中位数为四个芯片)。根据苏木精-伊红 (H&E) 染色图像特征,每个斑点均手动分配到七个组织学类别之一(L1-L6 层和白质 [WM])。使用均匀流形近似和投影 (UMAP) 嵌入(图 1G)以及先前验证过的层特异性基因标记(图 1H)评估了层注释的质量。对照组和疾病组供体各层斑点的分布一致(图1I),表明没有与 ALS 相关的明显结构改变。这些分析鉴定出一个具有非典型聚类的异常供体,由于其干扰素和抗病毒基因表达异常高,因此将其从后续分析中排除(图 1G)。
同时,他们使用 10× Genomics 的 Multiome 技术获得了配对的基因表达和染色质可及性谱(snRNA-seq)和转座酶可及染色质单细胞核测序分析 [snATAC-seq]数据。他们还从公开来源收集了 260 万个前额叶皮层 snRNA-seq 数据,并在此基础上训练了一个基于机器学习的分类器,以预测细胞类型注释并从多组学数据集中去除低质量或双细胞。经过预处理和注释,将 144260 个高质量细胞核分配到七种主要细胞类型:兴奋性神经元 (EN)、抑制性神经元 (IN)、少突胶质细胞 (OD)、少突胶质细胞前体细胞 (OPC)、星形胶质细胞 (AST)、小胶质细胞 (MIG) 和内皮细胞 (ENDO)(图 1J)。神经元和神经胶质细胞的数量分布均匀,其中 EN (33.8%)、OD (24.5%) 和 AST (13.8%) 最为丰富(图 1K)。所有主要细胞类型在不同个体和不同条件下均能稳定检测到(图 1K-L),且在 ALS 患者和对照组之间未显示出显著差异。
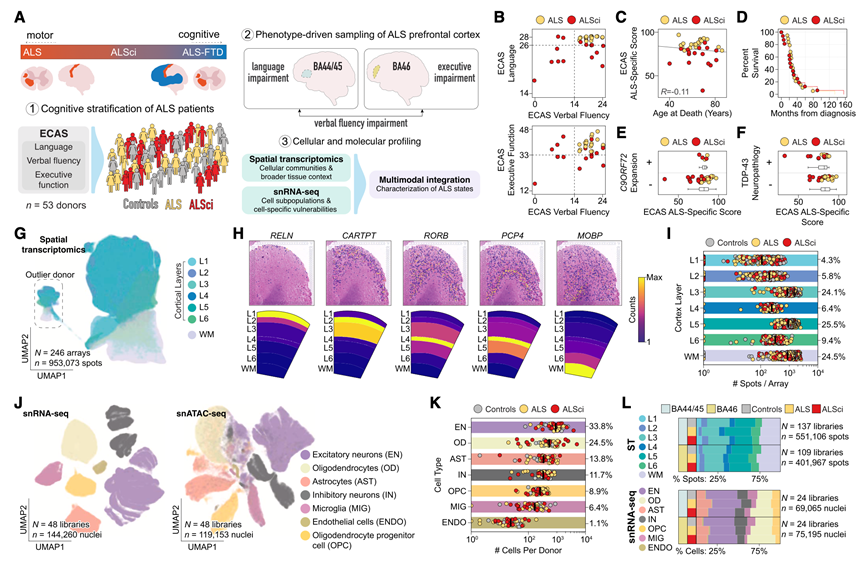
图1. 研究概述和队列人口统计学特征。
(A) 使用ECAS对ALS病例进行认知分层;得分异常的供体归类为认知障碍(ALSci)。对照组为非神经系统猝死病例(n = 17)。(B)每个 ALS 捐赠者的 ECAS 子测试分数分布;虚线表示损伤的临界值。(C)认知状态与死亡年龄的关系。(D) Kaplan-Meier 图显示疾病持续时间,按认知状态分层。(E)按C9ORF72基因型分层。ECAS ALS特异性评分是执行功能、语言流畅性和语言能力评分的总和。(F) 按TDP-43神经病理学分层。(G) ST 数据的 UMAP 图。图中的点代表 Visium 阵列的斑点,颜色编码对应皮质层注释。(H) 代表性斑点图显示了转录本表达叠加在H&E染色组织切片上的情况。汇总图层图是所有Visium芯片的平均标记基因空间分布。(I) 每个Visium芯片上皮质层斑点的数量,按供体表型进行颜色编码。图中标注了分配给每一层的斑点比例。黑色条形表示每层的斑点数中位数。(J) 配对的 snRNA-seq 和 snATAC-seq 数据的 UMAP 图(BA44/45 n = 24;BA46 n = 24),按大细胞类型着色。(K) 按供体表型进行颜色编码的注释细胞类型数量,并标明每种细胞类型的比例。(L) Visium 斑点按皮质层(上图)和 snRNA-seq 细胞类型(下图)分布。
02
神经胶质反应性是ALS前额叶皮层的常见特征
识别ALS患者(无论其认知状态如何)共有的免疫应答对于区分认知障碍特异性机制和更广泛的疾病进程至关重要。在所有细胞类型中,ENDO的转录变化最为显著,差异表达分析显示,ALS供体中与免疫应答、细胞凋亡和血管生成相关的通路富集(图2A)。由于snRNA-seq数据集中ENDO数量稀少(图1K),他们无法利用该方法解析血管相关亚型或进行详细推断,血管细胞采样不足是当前实验方案的一个公认局限性。
接下来,他们基于莱顿聚类、关键标记基因表达以及与先前分析的交叉比对,对每种主要胶质细胞类型进行了不同的功能分类(图2B-E)。根据已发表的转录谱将AST分为稳态和反应性状态(图2B)。OD根据髓鞘相关基因的表达分为高髓鞘化状态和低髓鞘化状态(图2C)。MIG分为稳态和反应性/炎症状态,其中较小的亚群表现出吞噬或热休克相关特征(图2D)。在广泛归类为MIG的细胞核中存在的一小部分非小胶质细胞免疫细胞单独注释为“其他免疫细胞”(图6B)。最后,将 OPC 分为稳态和OLIG1+成熟/分化状态,以及一个独特的NCOA1+亚群,他们将其命名为“应激”(图 2 E)。
随后,他们比较了疾病组和对照组供体,以确定功能状态下神经胶质细胞的比例是否存在差异。在ALS和ALSci组供体中,反应性MIG和应激OPC的比例均显著增加,而反应性AST的比例仅在ALSci组供体中显著增加(图2F)。有趣的是,虽然ALSci组供体中反应性AST的比例增加,但ALS组和ALSci组供体中反应性AST的转录组特征相似。此外值得注意的是,单个样本中反应性神经胶质细胞的比例高度相关(图2G),表明存在协同反应。某些稳态神经胶质细胞亚群的比例也存在相关性,包括稳态AST与MIG以及成熟OPC与高髓鞘形成OD(图2H)。相比之下,稳态 MIG 和 AST 的比例与成熟的 OPC 或髓鞘形成 OD 的比例不相关(图 2 H)。
他们分析了ST数据集中这种共同的胶质增生反应的空间分布,鉴定出一些转录本,它们既是特定胶质细胞类型的特异性转录本,又在该胶质细胞类型的不同功能状态下差异表达,这使他们能够通过对每个空间点进行评分来量化胶质细胞状态的转变。在ALS和ALSci患者的L1-L6层和白质中,反应性AST和活化的MIG显著增加(图2I),而应激OPC从L2层到白质均有所增加,表明存在全层胶质增生反应。相比之下,髓鞘形成OD评分在L2-L6层降低,成熟OPC评分升高,但在白质中,这两个细胞群基本保持不变(图2I)。与上述观察结果相符,对snATAC-seq数据集的分析表明,来自ALS患者的反应性AST和应激OPC在染色质可及性增加的区域富集AP-1结合基序,这与胶质增生和炎症转录程序的激活一致。总之,这些发现支持了ALS中胶质细胞反应具有协调性和空间组织性的观点。
虽然他们在ALS和ALSci供体中均检测到了胶质增生特征,但并非所有患者都存在这些特征(图2G),而且当存在时,胶质增生在ALSci患者中通常更为普遍(图2F-I)。这种患者层面的异质性引发了这样一个问题:特定的认知特征是否与这种胶质增生反应相关。为了解决这个问题,他们将snRNA-seq数据集中的每个样本根据其是否存在反应性MIG或AST(AST/MIG胶质增生)进行分类。在所有认知领域,除语言功能外,反应性胶质增生组和非反应性胶质增生供体的ECAS评分基本相似,而语言功能在胶质增生阳性组中显著降低(图2J)。按脑区分层分析显示,这种关联仅限于BA44/45区域。供体年龄同样与胶质增生状态无关(图2J)。
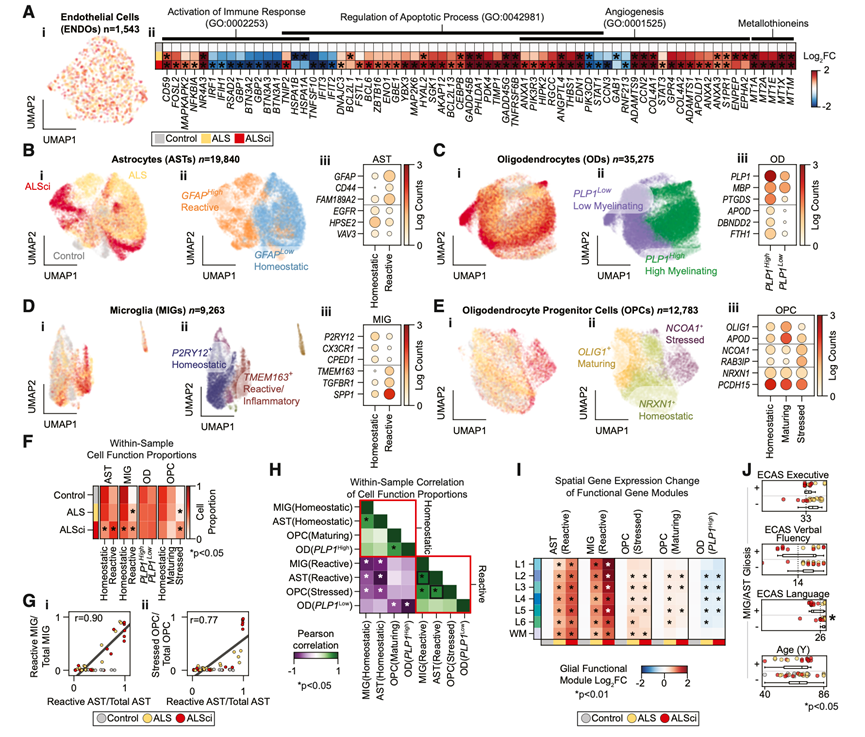
图2. 神经胶质反应性是ALS前额皮质的常见特征。
(A) (i)根据供体表型着色的 ENDO snRNA-seq 数据 UMAP 图。(ii)选定本体类别中对照组与 ALS 或 ALSci 供体之间的差异表达基因热图。(B) AST snRNA-seq UMAP 图。(C) 将 OD 分为低髓鞘形成(PLP1low)和高髓鞘形成(PLP1high)。(D) MIG 分为稳态型(P2RY12 +)和反应/炎症型(TMEM163 +)。(E) OPC 分为稳态(NRXN1 +)、成熟(OLIG1 +)和应激(NCOA1 +)。(F) 对对照组、ALS 组和 ALSci 组供体的每个组织样本中的神经胶质细胞比例取平均值。(G) 将活化的 MIG 占总 MIG 的比例(i)和应激的 OPC 占总 OPC 的比例(ii)与每个组织样本中反应性 AST 占总 AST 的比例作图。(H) 每个样本中功能分类的神经胶质细胞与总神经胶质细胞比例之间的Pearson 相关矩阵。(I) Visium 阵列上神经胶质功能模块评分的空间分布。(J) ECAS 评分和供体年龄,按反应性胶质增生(源自 snRNA-seq 数据)的存在(+)或不存在(−)分组。
03
反应性胶质增生的趋同转录和形态学特征
他们使用 Lunaphore 公司的 COMET 平台,通过全组织多重免疫荧光成像技术补充了转录组分析。该平台可依次应用、成像和洗脱抗体对(图 3A)。检测组合包括 AST、MIG、神经元和血管的标记物(图 3A)。他们对 BA44/45 和 BA46 的福尔马林固定、石蜡包埋 (FFPE) 组织进行了分析,并采集了覆盖灰质和白质的 12.5 × 12.5 mm 扫描图像(图 3B-C)。随后,他们使用 Indica Labs 公司的 HALO 软件对这些图像进行了注释、细胞分型和定量分析(图 3D)。该数据集包含来自 17 位捐赠者的约 300 万个细胞(基于 DAPI 染色的细胞核计数),涵盖对照组、ALS 患者和 ALSci 患者,几乎所有个体都有 BA44/45 和 BA46 的样本(总共 31 个全组织切片)。
AST反应性以分子变化和形态学改变为特征,包括肥大和突起分支改变。在肌萎缩侧索硬化症(ALS)中,反应性星形胶质增生可见于上运动神经元和下运动神经元周围,并延伸至额叶皮质的皮质和皮质下区域以及其他非运动区域。为了分析AST的形态,他们使用来自健康和患病供体的手动标注样本,对GFAP免疫染色图谱进行分类,这些样本涵盖灰质和白质。随后,他们计算了细胞圆度(也称为圆形度),作为AST反应性的指标,计算基于细胞面积和周长(图3E)。与对照组相比,患病供体的AST圆度显著降低(即分支更多)(图3E-F)。这种转变在皮质各层和白质中均有观察到,并且在不同疾病组中普遍存在——尽管ALS患者的BA46 L1-L5层受累程度高于ALSci患者——证实了广泛的胶质增生反应(图3G)。虽然这种形态学描述符可能无法完全区分星形胶质细胞状态之间的定性差异,但它与ST衍生的星形胶质细胞反应性特征密切相关(图3H)。这种一致性验证了最初的观察结果,并支持转录改变和形态重塑是ALS中AST激活的平行特征。
为了研究小胶质细胞的反应,他们分析了IBA1免疫反应性,IBA1是MIG和中枢神经系统巨噬细胞的通用标志物(图3I)。总体而言,灰质和白质中IBA1阳性(IBA1+)细胞的平均数量在疾病组和对照组之间没有显著差异(图3J),虽然IBA1+细胞的数量与L2-L6层ST衍生小胶质细胞反应性评分显著相关(图3K)。为了补充这些分析,他们探索了ALS中小胶质细胞的改变是否伴有形态重塑。由于难以分割较长的小胶质细胞突起,他们使用IBA1+组织总面积作为小胶质细胞组织覆盖率的指标。结果显示,ALS和ALSci样本中IBA1+面积显著减少,其中L1-L4层的减少最为显著(图3L)。IBA1+细胞覆盖面积的减少而IBA1+细胞数量并未减少,这表明细胞形态从分支状的稳态形态转变为变形虫样的反应性形态。虽然该分析无法确定发生形态重塑的单个细胞的比例,但表明ALS患者的小胶质细胞动力学发生了广泛的改变。
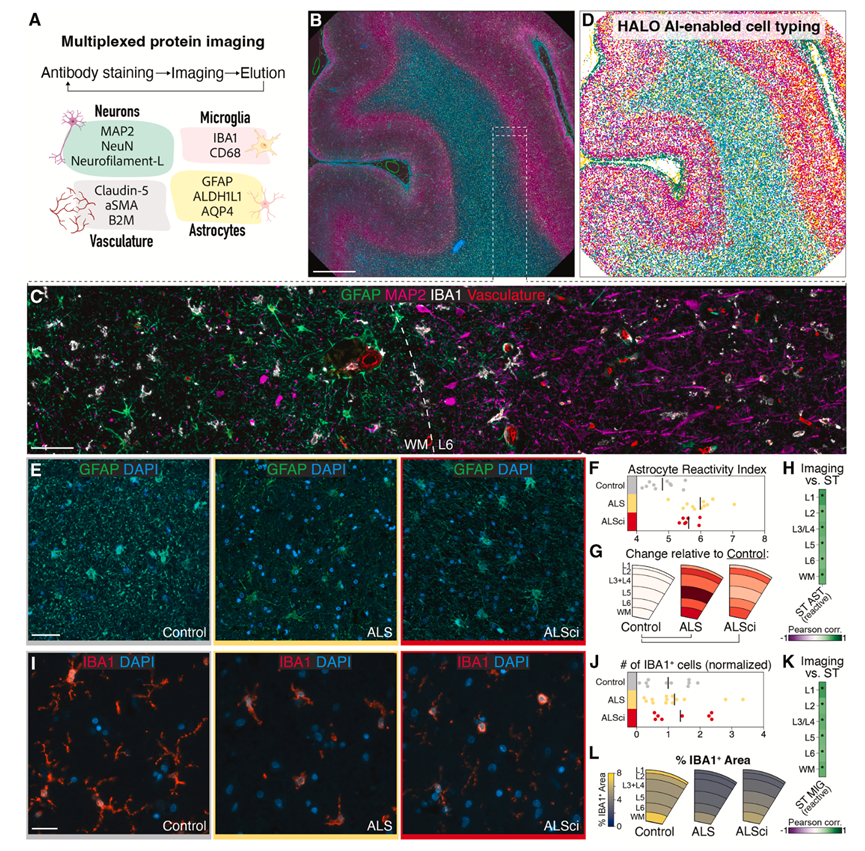
图3. 顺序免疫荧光染色鉴定出 ALS 和 ALSci 中反应性胶质增生的趋同转录和形态学特征。
(A) 顺序免疫荧光工作流程和抗体组。(B-C) BA44/45切片的完整12.5mm×12.5mm组织图像。(D) 组织范围内的细胞分割和表型分析。(E) 各临床组的 GFAP 染色 AST。(F) 根据各组织平均全层AST形态定量AST反应性。(G) 与对照组相比,各层形态定量 AST 反应性的差异。(H) 基于影像和 ST 衍生的 AST 反应评分之间的供体水平 Pearson 相关性。(I) 各临床组的IBA1染色细胞。(J) IBA1+细胞占DAPI +细胞核的平均全层比例。(K) 供体水平 Pearson 相关性。(L) 按临床组划分的灰质和白质中IBA1+组织面积占总面积的百分比。
04
空间表达特征可区分ALS认知亚型
在分子水平上,中枢神经系统 (CNS) 的特征是空间相关的转录组模式,这些模式反映了细胞间的相互作用。这些空间表达程序的紊乱与神经系统疾病相关,包括ALS。为了以无偏倚的方式研究大脑非运动区域的 ALS 相关变化,他们采用了 Splotch,这是一种专为 ST 数据设计的贝叶斯分层模型(图 4A)。Splotch 将每个点的基因表达建模为零膨胀泊松分布,其中点水平的λ(转录本丰度)由点水平和供体水平的元数据(皮质层和 ALS 诊断)、与相邻点的空间自相关性以及点特异性效应决定。推断之后,通过分析模型参数的后验分布,定量了每个皮质层内对照组和疾病组供体之间基因表达变化的幅度和显著性(贝叶斯因子)。总体而言,拟合的Splotch模型中的λ参数(代表每个位点转录本表达的去噪估计值)在BA44/45和BA46中均表现出相似的空间相关模式,这与这些区域共有的层状结构和细胞组成相一致。
除了识别差异表达的单个基因外,他们还寻找空间共表达的基因群,将每个转录本嵌入到k近邻(k-NN)图中,并进行莱顿聚类以提取共表达的空间模块(图4A)。这产生了23个模块,每个模块代表在皮层中具有重叠空间模式的基因。其中两个模块(分别代表染色体特异性基因表达,即Y染色体[chrY]和线粒体[chrM])排除在后续分析之外(图4A)。
基于GO富集分析对剩余的21个空间模块进行了功能表征(图4B)。这些模块包括免疫应答相关模块(M2和M21)、髓鞘形成相关模块(M5)、线粒体相关模块(M8和M9)以及多个突触或受体信号传导相关模块(M1、M4、M6、M7、M16和M19)。值得注意的是,M2、M12和M20富集了与反应性AST和MIG相关的转录本(图4C),这与之前表征的胶质增生反应一致(图2和图3)。这表明,所鉴定的共表达模块同时反映了空间和功能关系。
对于每个空间模块,他们计算了模块得分,该得分汇总了每个ST点所有模块转录本的总体表达。然后,将空间模块得分与认知得分进行相关性分析,以确定其区域特异性(图4D)。执行功能障碍与BA46中M8和M9的下调相关,这两个模块与线粒体功能(特别是氧化代谢)相关(图4B-D)。相反,言语流畅性障碍与BA44/45中多个模块的上调相关(图4D)。此外,语言功能缺陷与两个区域中胶质增生相关模块M2和M20的上调相关(图4C-D)。
为了探究空间模块与细胞过程之间的关联,他们计算了snRNA-seq数据中的模块得分,并确定了每个模块的细胞类型关联(图4E)。他们还评估了不同皮质层的模块得分,并通过比较对照组与ALS和ALSci供体,试图识别疾病相关的变化(图4E)。由于Visium斑点通常会对多个细胞进行采样,因此空间共表达模块可能与多种不同的细胞类型相关联。他们通过对snRNA-seq转录本相关距离进行k近邻(k-NN)图嵌入和重聚类,进一步将它们分解为子模块(图4F)。他们选择空间模块M2进行进一步研究,因为它在ALS和ALSci供体中均上调,并且与语言和言语流畅性障碍相关(图4D-E)。M2的子模块聚类揭示了与内皮细胞、小胶质细胞和神经元细胞核相关的转录特征(图4G)。值得注意的是,他们观察到从对照组到ALS组再到ALSci组,M2亚模块之间的空间互相关性逐渐增强,这表明认知障碍与通常在空间上分离的细胞过程的紊乱和混合有关(图4H)。GO分析进一步揭示,特定的M2亚模块富集于小胶质细胞免疫反应、内皮血管发育和神经元蛋白折叠功能(图4I)。这些亚模块在ALS患者中表达上调,且在ALSci患者中更为显著(图4J-K)。这些空间协调的血管、神经元和胶质细胞变化表明,细胞间相互作用的紊乱是导致ALS患者语言和流畅性障碍的关键因素。
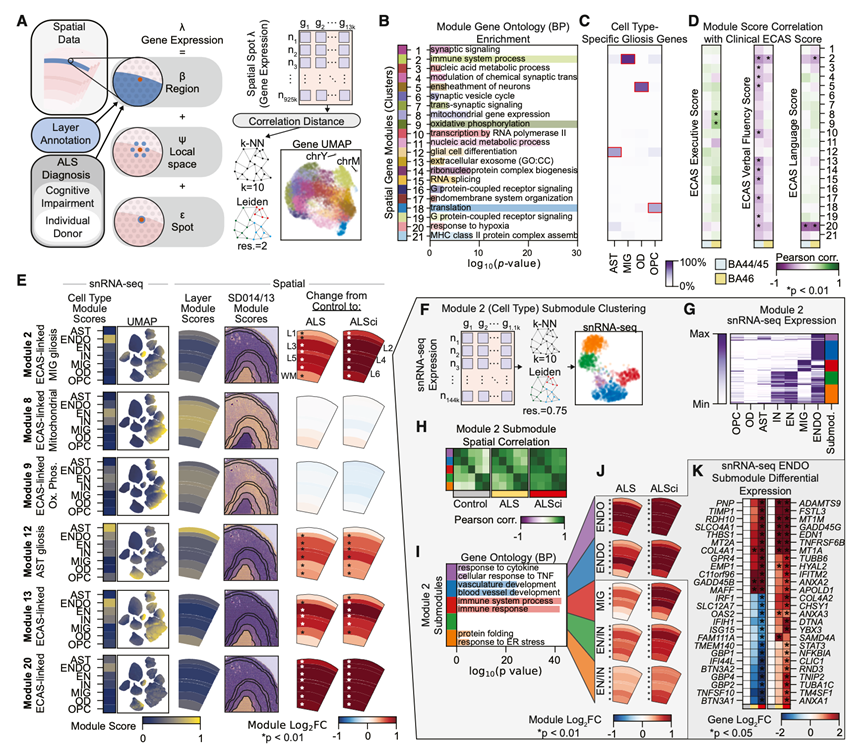
图4. 空间表达特征区分 ALS 认知亚型。
(A) 将 Splotch 模型拟合到空间转录组数据集中的每个基因。(B) GO分析。(C) 热图显示了每个空间模块中反应性AST和MIG、低髓鞘形成OD以及应激OPC特异性转录本的比例。(D) 供体聚集基因模块与 ECAS 评分之间的 Pearson 相关性。(E) 选定空间模块的总结。(F) 利用snRNA-seq数据将空间模块M2基因聚类成子模块。(G) 在不同snRNA-seq定义的细胞类型中,M2基因的平均表达量。(H) M2 子模块得分与临床表型之间的 Pearson 相关性。(I) 每个M2子模块中p值最小的GO:BP。(J) M2 子模块相对于对照组的表达按皮质层划分。(K) 内皮细胞核内皮细胞M2亚模块差异表达基因的热图。
05
疾病相关的血管周围微环境变化
基于空间分析中发现的血管-免疫关联,他们利用成像数据集进一步研究了ALS患者血管周围IBA1+髓系细胞的分布和激活情况。他们训练了一个分类器,该分类器基于α-平滑肌肌动蛋白(aSMA,血管平滑肌细胞的标志物)和Claudin5(血管壁内皮细胞的标志物)来鉴定血管。由于aSMA在小动脉(以及少量小静脉)中表达,而在毛细血管中几乎不表达,因此该分析专门针对这些较大的血管类型。用同心环(半径40 μm;20个环,间隔2 μm)勾勒出每个aSMA包裹的血管周围的微环境,并量化了IBA1+面积与距血管距离的关系。为了提高统计功效,将环状结构聚合为四个部分(0–10 [最靠近中心]、10–20、20–30 和 30-40 μm [最远离中心])(图 5 A)。
在对照组中,IBA1 +区域表现出明显的血管近端富集(图5B-D)。然而,在ALS和ALSci患者中,血管附近的IBA1分布较对照组减少,尤其是在皮质(L1-L4)和白质的浅层(图5B-D)。这种减少持续存在于所有径向节段,表明血管近端IBA1+信号广泛缺失。
接下来,他们探究了血管邻近髓系细胞在功能层面上是否存在差异。为此,重点关注了CD68,它是一种溶酶体糖蛋白,也是MIG吞噬活性的标志物,这些细胞聚集在空间模块M2中。首先,他们建立了供体特异性的CD68强度阈值(低、中、强),以克服组织保存造成的个体间标志物检测差异。然后,他们定量了CD68的激活程度,即强CD68阳性区域占总CD68阳性区域的比例,并按径向节段进行计算。在ALSci供体中选择性地观察到血管周围CD68信号升高(图5 C-D),而对照组和ALS患者在血管附近的CD68信号相对较低,这表明ALSci中血管相关髓系细胞的激活存在差异。
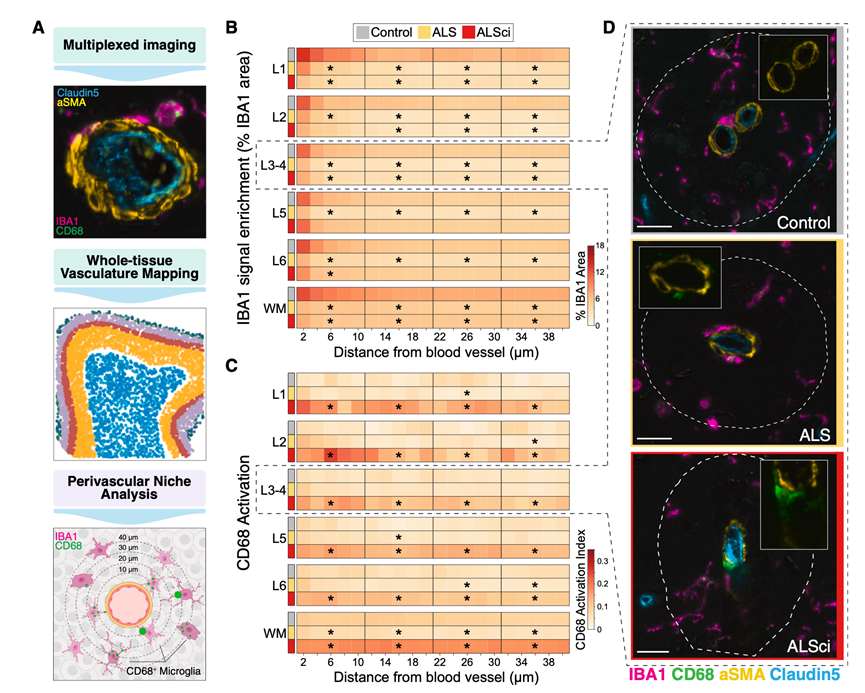
图5. 血管周围小胶质细胞反应性在ALS和ALSci之间存在差异。
(A) 血管周围分析工作流程示意图。(B) IBA1+面积在供体间取平均值,并与皮质层和临床组的血管距离作图。(C) CD68 激活评分在供体间取平均值,并绘制成与血管的距离。(D) 临床各组中IBA1和CD68染色血管周围间隙。
06
执行功能障碍与BA46深层神经元有关
虽然许多空间基因模块(例如M2)与言语流畅性和语言障碍相关,但一组较小且独特的模块与执行功能障碍相关,这表明与这种障碍相关的机制有所不同。为了进一步剖析ALS执行功能障碍的细胞和分子基础,他们重点关注M8和M9——仅有的两个与ECAS执行功能评分显著相关的空间模块(图4D)。这两个模块均富集线粒体相关基因,并与兴奋性神经元和中间神经元(IN)相关(图4B)。它们在伴有执行功能障碍的ALS患者中也呈下调表达,尤其是在BA46区域(图4D)。按皮质层对空间模块相关性进行分层分析进一步揭示,这种反应定位于灰质的深层(L5和L6)(图6A),表明ALS的执行功能障碍与空间上不同的神经元亚群的功能障碍有关。这些发现促使对ALS执行功能障碍的潜在机制进行更深入的研究。
首先研究了衰老对M8和M9模块的影响,以区分疾病引起的执行功能障碍和年龄相关的认知衰退。供体年龄与多个模块相关,包括M8和M9,这两个模块在老年供体和执行功能评分较低的供体中均表现出表达降低(图6B)。然而,年龄相关和疾病相关的M8/M9变化的空间模式截然不同:年龄与BA44/45和BA46中L1-L5层的表达降低相关,而执行功能仅与BA46中L5-L6层的表达相关。这凸显了转录组分析中空间分布的重要性,因为相同的分子过程(例如M8/M9模块)可能以不同的模式受到扰动,从而区分年龄引起的认知衰退和疾病引起的认知衰退。
接下来,他们探究了特定神经元亚群是否与ALS患者的执行功能障碍相关。基于snRNA-seq数据集,分别对EN和IN进行聚类,并根据关键标记基因的表达为每个聚类分配一个亚型。他们鉴定了9个特征明确的EN亚型,包括L2/3、L4、L5、L6和L6 Car3端脑内(IT)神经元,L5端脑外(ET)神经元,L5/L6近投射(NP)神经元,L6皮质丘脑(CT)投射神经元和L6b神经元(图6E)。对于中间神经元(IN),他们鉴定了9种特征明确的亚型:VIP +、篮状和吊灯状PVALB +、三种LAMP5 +亚型以及三种SST +亚型(图6F),根据可比拟的小鼠标记转录本的表达,分别注释为Martinotti(MC)中间神经元、非Martinotti(nMC)中间神经元和长程投射(LRP)中间神经元(图6F)。从该数据集推断出的兴奋性和抑制性神经元亚型的相对比例在对照组、ALS组和ALSci组供体之间没有显著差异。
对于每种神经元亚型,他们比较了三个年龄组以及对照组和ALS患者之间的空间模块评分(图6G)。与之前的层级分析结果一致(图6C),在老年患者的L2-L3、L4和L5 IT EN以及BA44/45和BA46区域的L1 LAMP5+ / PAX6+ IN中,M8和M9的表达均降低(图6G)。此外,发现ALS患者L5 IT、L6 IT和L6 IT Car3 ENs中M8和M9基因的表达显著下调,这与先前在更深的BA46层中推断出的执行功能障碍相关变化一致(图6G)。L5-L6 LAMP5+/ LHX6+和L5 PVALB+篮状IN在ALS患者中也表现出M8和M9基因表达的降低(图6G)。相比之下,位于L5或L6的其他神经元亚型(包括L5/L6 NP、L6b和L6 CT EN)以及其他EN和IN亚型中,M8和M9相关的转录本未受到显著影响(图6G)。例如,M8和M9中表达最高的基因CALM2(钙调蛋白)和GAPDH在ALSci供体的BA46 L6 IT Car3 EN和BA46 LAMP5+ / LHX6+ IN中表达下调(图6H),CALM2在BA46 L5 IT和L6 IT细胞中也进一步下调。最后,M8和M9评分可能与BA46成像数据集中的NeuN+(由RBFOX3编码)神经元细胞计数相关,但未观察到这些模块与MAP2分布之间的关联,这种差异的生物学意义尚不明确。
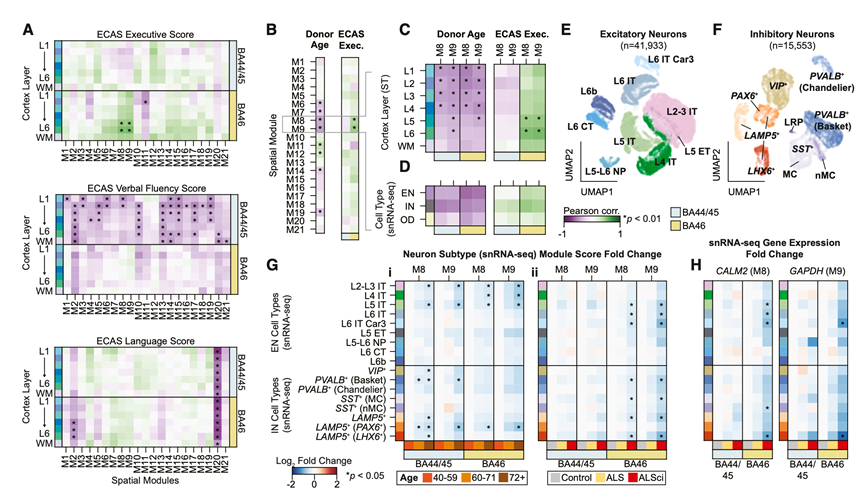
图6. 执行功能障碍与BA46深层神经元有关。
(A) 空间共表达模块得分与 ECAS 得分之间的 Pearson 相关性,按区域和皮质层分层。(B) ST共表达模块得分与供体年龄之间的Pearson相关性。(C) 空间模块 M8 和 M9 分数与供体年龄(左)或 ECAS 执行分数(右)之间的 Pearson 相关性。(D) M8 和 M9 分数与供体年龄(左)或 ECAS 执行分数(右)之间的 Pearson 相关性。(E) 按亚型着色的 EN 的 UMAP 图。(F) 按亚型着色的 IN 的 UMAP 图。(G) M8 和 M9 评分变化。(H) 按区域和神经元亚型分层的CALM2(表达最高的模块 M8 转录本)和GAPDH(表达最高的模块 M9 转录本)的变化。
07
执行功能障碍与线粒体和突触改变有关
这些发现表明,特定的深层神经元亚型参与了ALS相关执行功能障碍的病理生理过程。为了探究这种功能障碍的本质,他们检测了这些神经元亚型中的基因表达变化(图7A)。在所有五种EN和IN亚型中,ALSci BA46中差异表达的转录本富集于三个模块:突触前(GO:0098793)、突触后(GO:0098794)和线粒体膜(GO:0031966)。在突触的这两个类别中,与突触小泡循环(GO:0099504)和突触组织(GO:0050808)相关的通路尤为突出(图7A)。 ALSci供体表现出突触前基因表达降低,特别是参与内溶酶体和突触小泡酸化的V-ATPase基因,以及突触后谷氨酸受体亚基(例如GRIK1、GRIA1和GRM1)表达增加(图7A)。他们还检测到氧化磷酸化通路显著下调以及PINK1-Parkin介导的线粒体自噬发生改变(图7A)。氧化磷酸化和突触相关转录本(包括谷氨酸能和GABA能受体)在不同供体的各个神经元亚型中呈正相关(图7B),表明这些变化发生在同一组织中,而不是反映不同患者亚组的独立变化。
TDP-43聚集是ALS的病理标志,已证实与疾病驱动的基因表达改变有关,提示其可能参与了这些神经元亚型中观察到的转录改变。为了验证这一假设,他们将数据集中的差异表达基因与TDP-43相关靶基因进行比对,这些靶基因包括通过增强交联免疫沉淀测序(eCLIP-seq)鉴定的mRNA、蛋白质-蛋白质相互作用蛋白以及在FTD-ALS患者死后脑组织中受核内TDP-43耗竭影响的基因(图7A)。在这三组靶基因中,只有eCLIP鉴定的直接mRNA靶基因显著富集。 TDP-43 eCLIP靶基因主要呈上调表达(图7A),GO富集分析表明突触后结构是受影响最显著的细胞区室。相反,蛋白质-蛋白质相互作用蛋白和核内TDP-43耗竭相关基因未显示出显著富集。
当他们利用BA44/45和BA46的神经病理学评估,根据TDP-43状态(阳性:TDP-43 POS;阴性:TDP-43 NEG)而非认知表型对ALS供体进行重新分组时,发现许多此类共有的变化与TDP-43病理相关(图7 C)。富集神经元基因表达的模块,特别是与突触功能相关的模块(例如M6),在TDP-43 NEG供体中相对于对照组的变化甚微,但在TDP-43 POS个体中显著上调(图7C)。仅按认知表型分层时,这种差异并不明显(图7C)。结合eCLIP定义的TDP-43靶基因与突触相关基因之间的高度重叠(图7A),这表明突触相关的转录改变至少部分与TDP-43聚集存在机制上的联系。未富集突触基因的空间模块,例如与胶质增生相关的M2模块,在TDP-43 NEG和TDP-43 POS供体中均显著上调(图7C)。因此,TDP-43 NEG和 TDP-43 POS病例中反应性胶质细胞的比例也相似,表明这种胶质增生反应可能由其他机制驱动。为了验证神经病理学分层的有效性,STMN2隐蔽剪接形式的表达(一种典型的 TDP-43 功能障碍分子标志物)在 TDP-43 POS供体中特异性升高。总之,这些数据突显了 TDP-43 功能障碍与认知缺陷之间微妙的关系:病理学和临床表型在分子水平上并不完全重叠,而是揭示了 ALS 病理生物学的不同特征。这与先前的研究结果一致,即 TDP-43 聚集与认知症状的相关性较差。
目前的分析揭示了神经元和胶质细胞功能失调的共同模式和区域特异性模式。为了整合这些发现,检测了供体内部不同皮层区域的相关性,以评估这些模式是否反映了协同变化。结果显示,BA44/45 和 BA46 区域存在共同的胶质增生模式,主要由 AST 和 MIG 驱动(图 7D),这可能反映了这两个区域对 ALS 的共同胶质增生反应,而与认知表型无关。虽然星形胶质细胞和小胶质细胞的反应在 BA44/45 和 BA46 之间相似,但髓鞘形成细胞(PLP1高表达)和成熟的少突胶质前体细胞(OPC)则表现出区域特异性模式,它们在 BA44/45 和 BA46 之间的比例相关性较弱(图 7D)。两种OD亚型的丰度均与神经元转录失调密切相关,尤其与突触和线粒体相关基因的转录失调密切相关(图7E)。总体而言,这种神经元-OD-OPC成熟耦合是样本内最强的关联之一,且在很大程度上独立于神经元亚型。尽管这种区域异质性的基础尚不清楚,但这些结果揭示了与ALS认知障碍相关的复杂的神经元-胶质细胞相互作用图谱(图7F)。
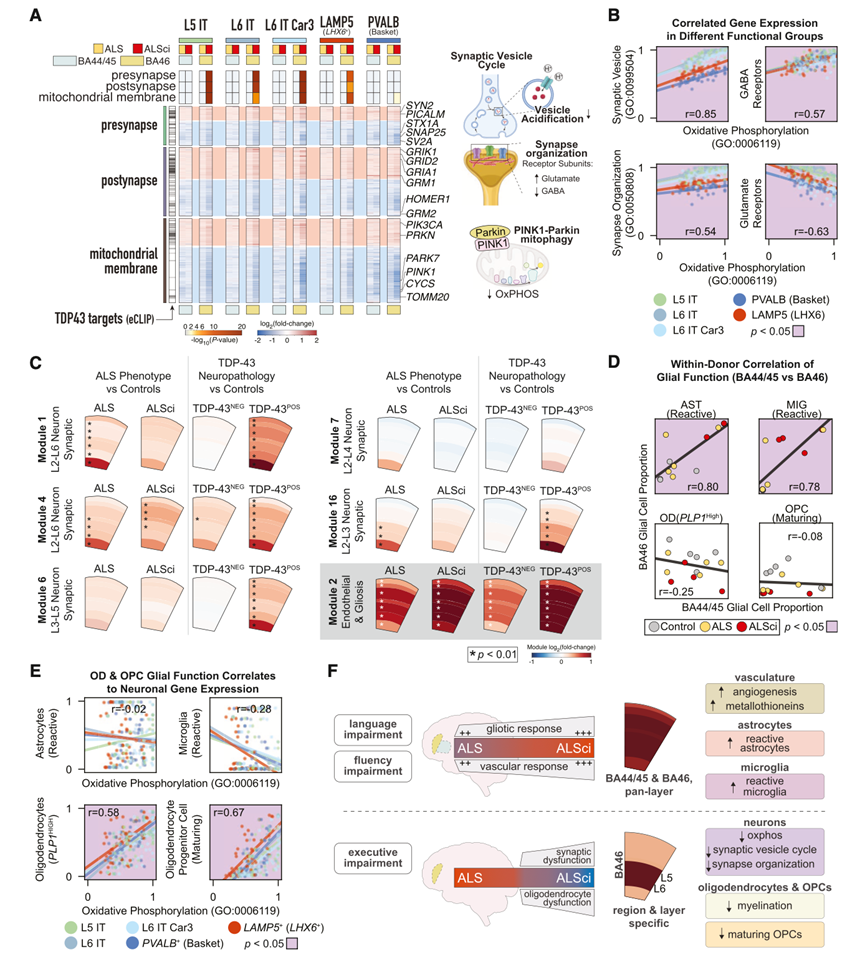
图7. 执行功能障碍与线粒体和突触改变有关。
(A) 与执行功能障碍相关的神经元亚型中差异表达的snRNA-seq基因。(B) 基于snRNA-seq本体论的突触和氧化磷酸化基因集相关性分析。(C) ST 数据中的差异模块表达。(D) BA44/45 和 BA46 之间神经胶质功能亚型比例的跨区域、供体水平比较。(E) 将每个供体样本中反应性 MIG、反应性 AST、高髓鞘形成 OD 和成熟 OPC 的比例与氧化磷酸化本体表达评分作图。(F) 示意图突出了语言障碍、言语流畅性障碍和执行功能障碍在区域和皮层层特异性的细胞和分子差异。
+ + + + + + + + + + +
结 论
本研究通过整合空间和单细胞多组学数据,对认知功能分层的 ALS 患者队列进行了前额叶皮层区域定位。ALS 患者的认知障碍与不同的神经元功能障碍和胶质血管功能紊乱模式相关,这些模式因区域和认知亚型而异。执行功能障碍与深层背外侧前额叶皮层神经元的线粒体和突触活动降低有关,而语言相关缺陷则与涉及胶质和血管异常的弥漫性泛区域反应相关。经多重成像验证,进一步揭示了前额叶皮层中跨越运动和认知表型的特征,包括多细胞胶质增生反应。研究结果表明,ALS 的临床异质性是由大脑运动区和非运动区的表型特异性细胞相互作用驱动的。
+ + + + +