
 English
一张切片同时看清基因组的"空间折叠"与"开关状态":Spatial-ATAC-Hi-C
空间组学已经能看基因在哪表达、染色质在哪打开。但基因组最重要的"三维折叠结构"——哪些位点隔着百万碱基还能互相牵手、形成染色质环和区室——一直缺少空间维度的解析。2026 年 10 月 Nature Methods 发表的 Spatial-ATAC-Hi-C,首次在一张组织切片上同时捕获全基因组三维基因组结构(Hi-C)+ 染色质可及性(ATAC-seq),并把两者都定位到 2500 个空间像素。它不仅验证了技术本身不偏倚,还在小鼠脑里看清了神经元类型的空间图谱,更在胶质母细胞瘤(GBM)样本中直接锁定了 EGFR、CDK4/MDM2 等致癌位点的空间拷贝数扩增与克隆异质性。
一、为什么必须"空间 + 3D 基因组 + 可及性"一起看?
细胞的身份和功能,很大程度由基因组的空间排布决定。过去十年,空间组学飞速发展:
空间转录组(ST、Slide-seq、Stereo-seq 等):看基因在哪儿表达,分辨率从 55 μm 做到 2 μm。 空间表观组(spatial-ATAC-seq、spatial-CUT&Tag):看染色质在哪打开、有哪些组蛋白修饰。 Slide-DNA-seq:能在空间背景下推断肿瘤克隆的拷贝数变化。
但一个核心层次一直缺席——三维基因组结构。区室(compartment)、拓扑关联结构域(TAD)、染色质环,这些高阶结构决定了增强子和启动子如何在空间上相遇。成像技术(DNA-MERFISH、chromatin tracing 等)能看到少数位点的折叠,却难以在全基因组尺度做空间解析。
Spatial-ATAC-Hi-C 正是来补这块拼图的:用一套微流控流程,在组织原位同时拿到 Hi-C 与 ATAC 两层信息,且完整保留组织结构。
二、Spatial-ATAC-Hi-C 是什么:一张切片上的"双维"解析
它的工作流可以拆成几步(见图 1a):
新鲜冰冻组织切片固定在微阵列级别的载玻片上,甲醛交联,保留天然染色质结构。 细胞核透化后,在切片上做酶切与原位邻近连接,把染色质片段两两连接。 关键一步:直接在组织切片上用自组装的 Tn5 转座酶进行 tagmentation。这一步本身就把染色质可及性(ATAC)信息"顺手"记录进了 Hi-C 文库——一次实验,两套数据。 用微通道在切片表面依次输送横向条码 A(A1–A50)和纵向条码 B(B1–B50),形成 2500 个空间像素的二维网格。 测序后,依据条码重建每个像素的染色质互作图谱。
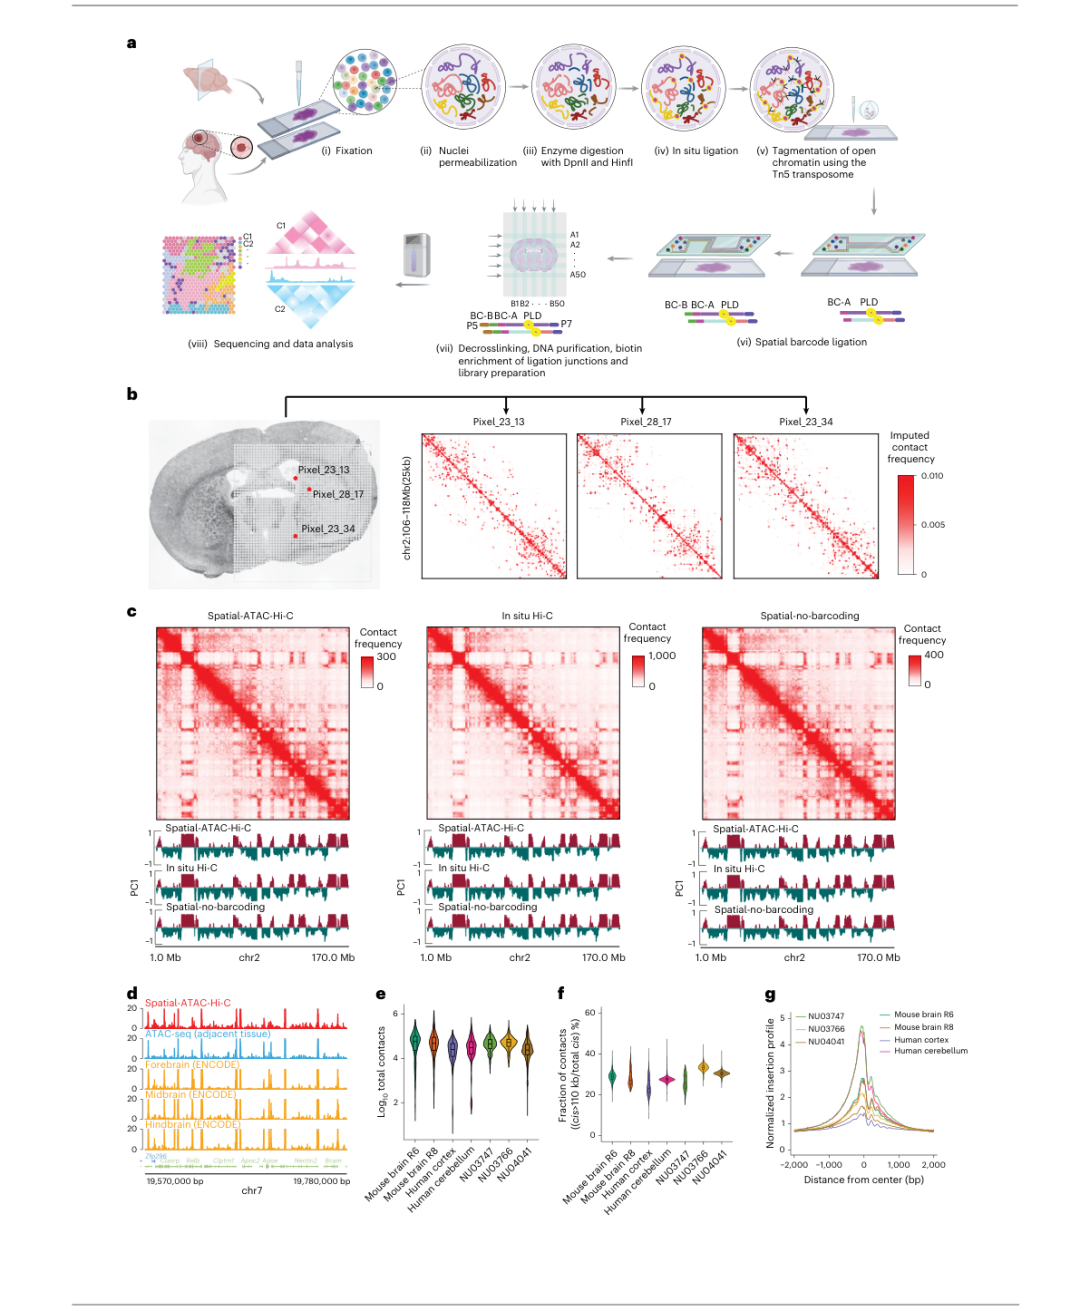
▲ 图1|技术原理与性能验证:a 工作流程示意(BioRender 绘制);b 小鼠脑单像素 25 kb 分辨率的 Hi-C 接触图;c 与 bulk in situ Hi-C、无条码对照(Spatial-no-barcoding)的接触图、PC1、绝缘评分高度一致;d ATAC 可及性谱与 bulk ATAC-seq 及 ENCODE 一致;e–g 测序深度、长程(10 kb 以上)互作占比、TSS 附近 reads 富集均达标。
三、Fig.1 验证:空间条码不偏倚,双指标都过硬
新技术最怕"条码步骤本身改写了生物学信号"。作者用三套对照打消了这个疑虑:
把 Spatial-ATAC-Hi-C 与 bulk in situ Hi-C、无条码对照放在一起比,Hi-C 接触图、PC1 值、绝缘评分三者高度吻合,说明条码过程没有引入系统性偏倚。 进一步与 Dip-C 这种"提取 DNA 后再 tagment"的数据比,结构特征依然一致,说明原位 tagmentation 这一步本身也靠谱。 ATAC 层面,pseudo-bulk 的可及性谱与 bulk ATAC-seq、ENCODE 胚胎脑数据对得上。
结论很干脆:这套技术既能准确还原三维基因组,又能拿到可信的染色质可及性,且空间条码零副作用。
四、Fig.2 看清小鼠脑的细胞类型空间分布
有了可靠工具,第一步是绘制正常组织的空间图谱。作者用成年小鼠脑做了系统解析:
基于空间 Hi-C 的"基因关联结构域评分"做无监督聚类(图 2a),叠加组织图像后,不同簇清晰对应不同脑区。 基于空间 ATAC 的 GAS 评分同样聚类(图 2b),UMAP 里也能分开。 对照 Allen 脑图谱(图 2c、d),这些簇对应皮层、纹状体、丘脑、下丘脑、嗅球等经典分区。 把空间 ATAC 投影到单细胞 ATAC 数据(图 2e),再把每种细胞类型的空间位置画出来(图 2f)。 用 GAD、GAS、MERFISH 等标记基因看空间信号(图 2g),兴奋性、抑制性、非神经元三类细胞的差异活性基因一目了然(图 2h),兴奋性神经元标记基因的 GO 富集指向突触、谷氨酸信号等经典功能(图 2i)。
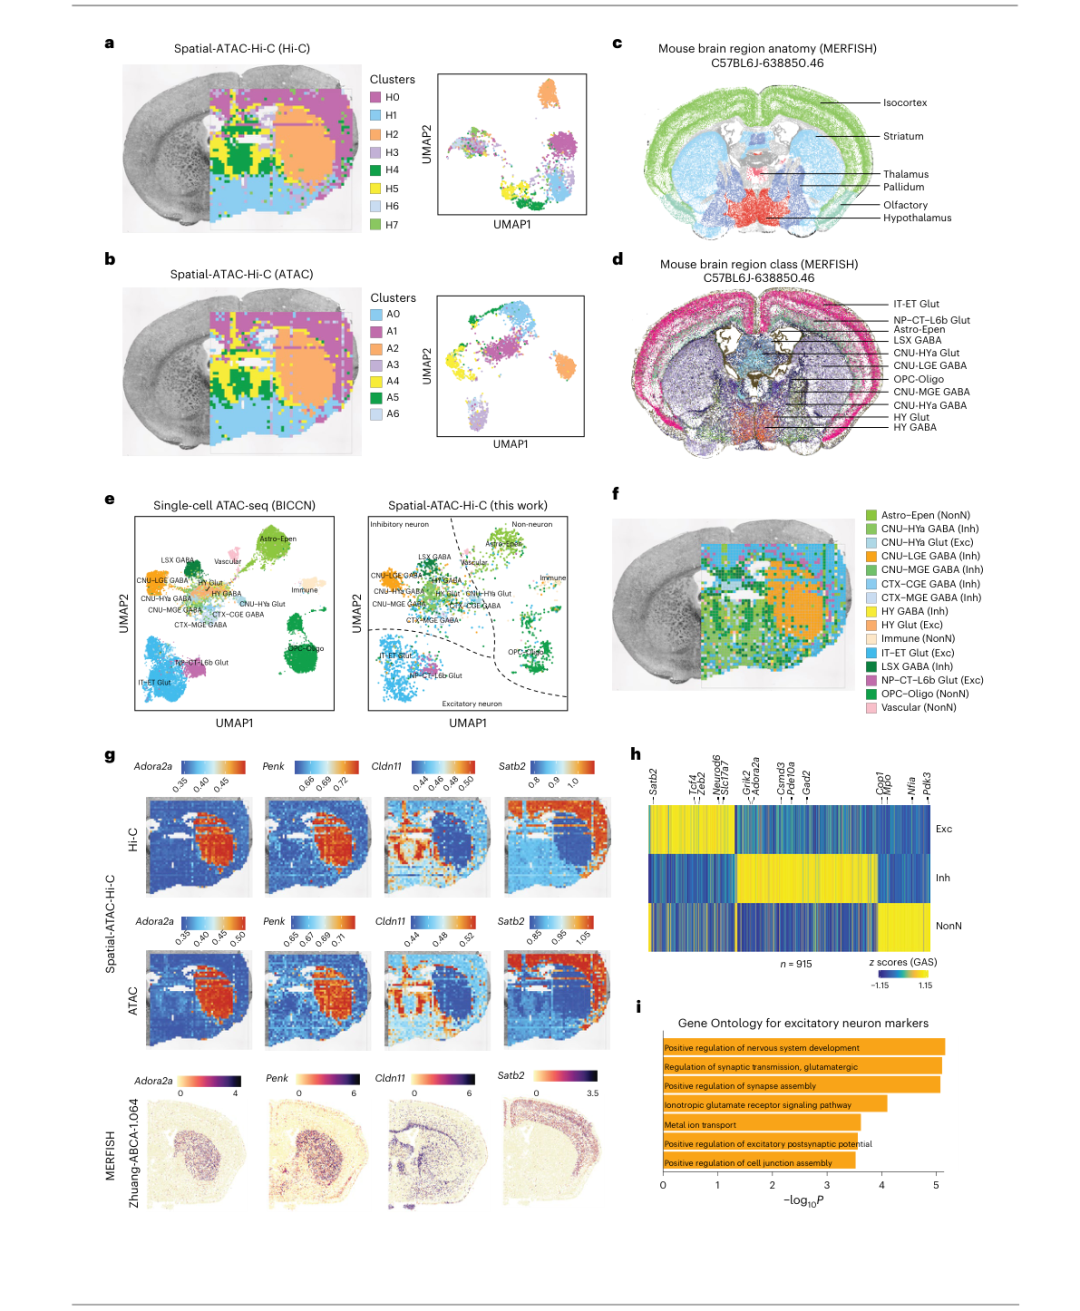
▲ 图2|小鼠脑的空间细胞类型解析:a 基于 Hi-C 结构域评分的聚类与空间叠加(右为 UMAP);b 基于 ATAC GAS 的聚类与空间叠加;c–d 对照 Allen 脑图谱的解剖/分区注释;e 投影到单细胞 ATAC;f 各细胞类型空间分布;g 标记基因 GAD/GAS/MERFISH 空间信号;h 三类细胞的差异活性基因热图;i 兴奋性神经元标记基因 GO 富集。
五、Fig.3 3D 基因组的空间异质性:细胞类型特异的染色质环
真正体现"3D 维度"价值的,是它能在空间上分辨不同细胞类型的染色质高级结构:
区室层面:兴奋性、抑制性、非神经元各有特异的 A/B 区室与关联的 GAS 基因,GO 富集分别对应突触信号、免疫防御等通路。 染色质环层面:作者找到兴奋性神经元特异的 Satb2 环、抑制性神经元特异的 Gpr88 环,并用 single-pixel 分辨率的 loop 信号直接可视化(图 3c–h),还与独立的 snm3C 数据集互相印证。 进一步用 APA 分析统计出 1688 个兴奋性特异、243 个抑制性特异、17 个非神经元特异的 loop;这些 loop 锚点区域的开放染色质上,转录因子基序显著富集(图 3j),例如抑制性神经元中的 Meis1——与其在纹状体中等棘神经元分化中的已知角色吻合。
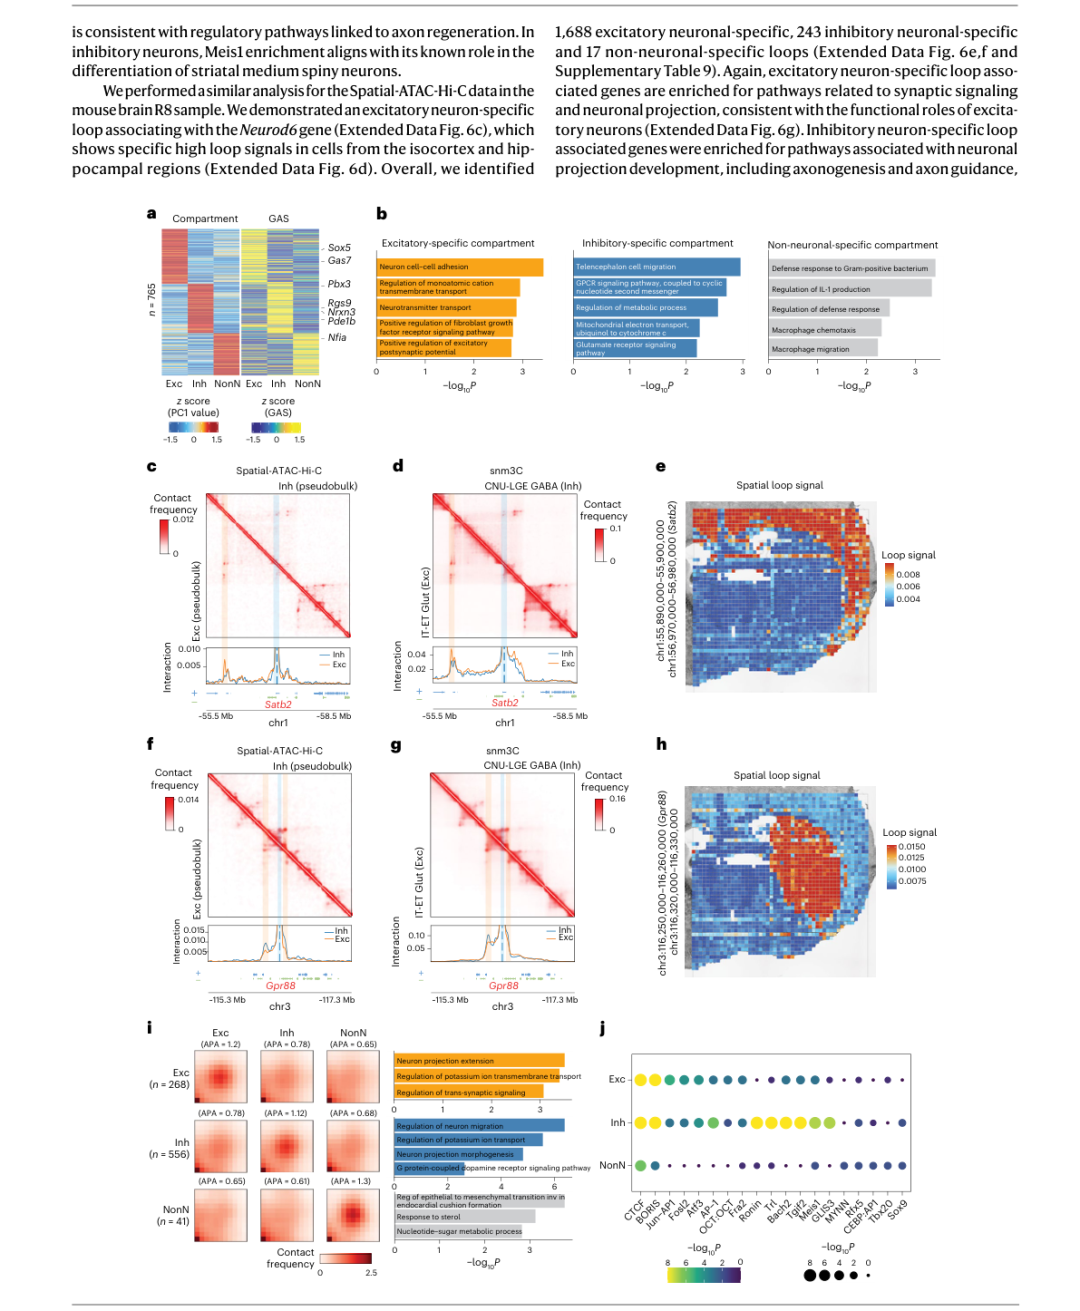
▲ 图3|3D 基因组的空间异质性:a 差异区室与 GAS 关联基因热图;b GO 富集;c–h 兴奋性特异 Satb2 环、抑制性特异 Gpr88 环在单像素分辨率的 loop 信号,并与 snm3C 验证;i 细胞类型特异 loop 的 APA 分析;j TF 基序富集(如抑制性神经元中的 Meis1)。
六、Fig.4 肿瘤切片上的空间拷贝数变异(CNV)
技术的临床价值,从肿瘤样本开始显现。作者把两例患者的组织——NU04707(星形细胞瘤)和 NU04741(GBM)——拼接在同一张切片上,一次实验拿到两者:
空间 Hi-C 推断出的拷贝数谱,与各自相邻切片的 WGS 结果高度吻合(图 4c,含 chr9、chr12 局部放大)。 基于单像素 5 Mb 分辨率的拷贝数谱做 UMAP 聚类(图 4d),再把簇映射回空间位置(图 4e),不同克隆在空间上分布得清清楚楚。 全基因组单像素 CN 热图(图 4f)直接呈现了肿瘤内部的拷贝数异质性。
这一步说明:Spatial-ATAC-Hi-C 不只是"看结构",还能当空间 CNV 检测用,且与金标准 WGS 对齐。
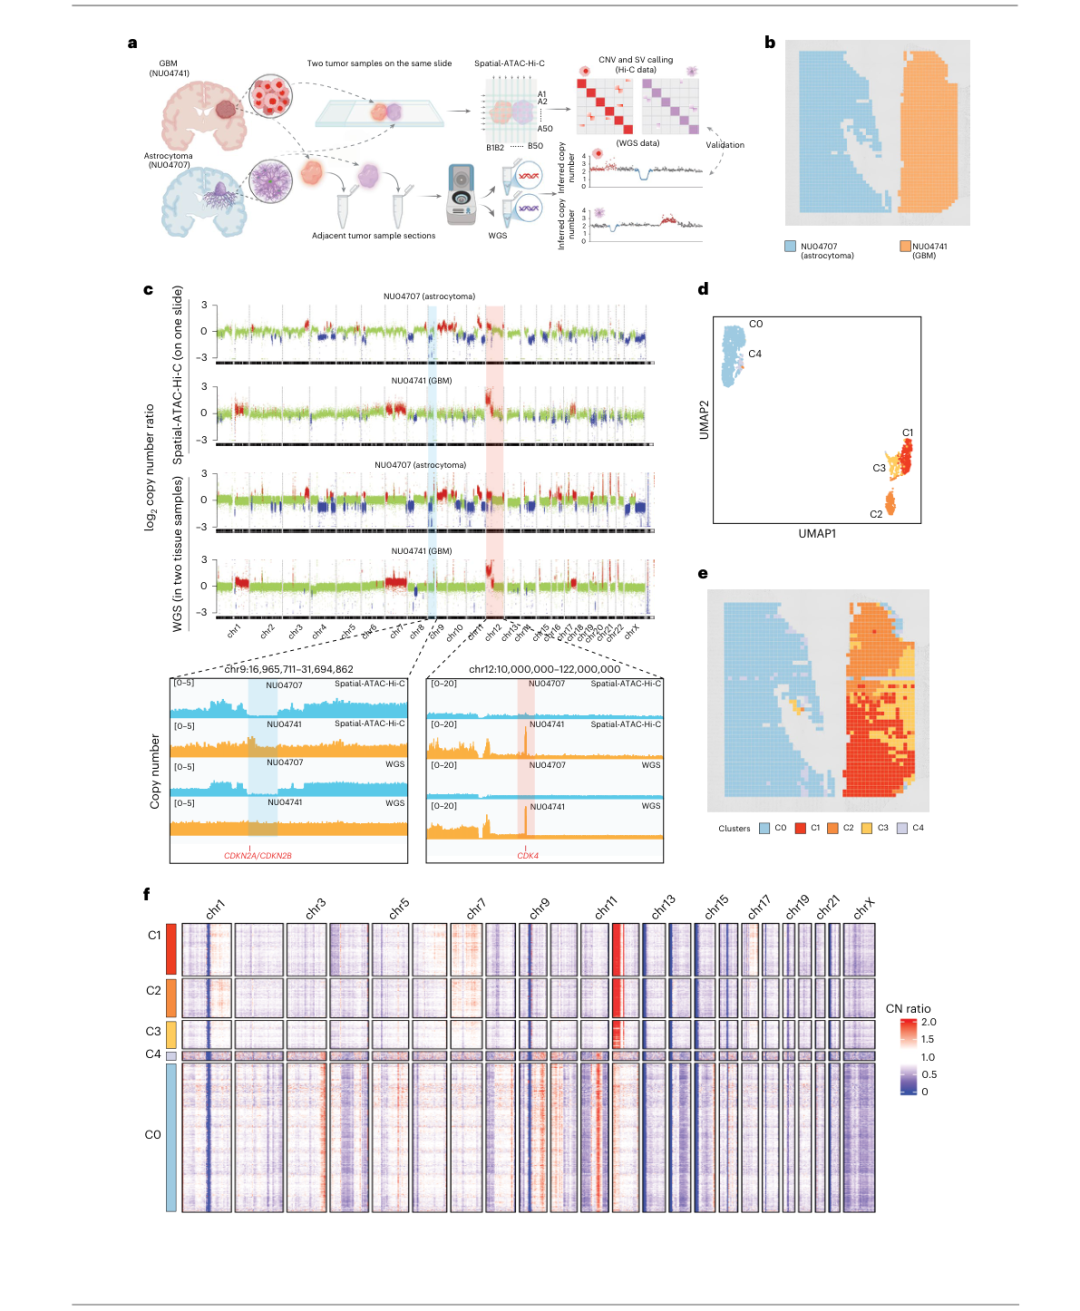
▲ 图4|空间拷贝数变异的精准捕获:a 实验设计;b 两例患者样本 NU04707(星形细胞瘤)与 NU04741(GBM)拼接于同一张切片;c 空间 Hi-C 推断的 CN 谱与 WGS 吻合(含 chr9、chr12 放大);d 基于单像素 5 Mb CN 谱的 UMAP 聚类;e 聚类结果的 spatial 分布;f 全基因组单像素 CN 热图。
七、Fig.5 GBM 样本:三维基因组 + 表观 + 拷贝数共解析
最后,作者把三种信息在一例 GBM(NU03747)上做了空间共解析,直接指向致癌事件:
H&E 染色定位实验区域(图 5a);空间 Hi-C 推断的拷贝数谱里,chr7 与 chr12 出现明显扩增(红圈标出,图 5b),对应 EGFR(chr7)和 CDK4/MDM2(chr12)——都是 GBM 经典驱动事件。 基于拷贝数把像素聚成 C0、C1 两群(图 5c),pseudo-bulk Hi-C 全基因组图谱(图 5d)。 聚焦 chr7、chr12 的高拷贝数区域,C0/C1 两克隆的 CN 差异一目了然(图 5e、f);EGFR 区域(图 5g)、以及 EGFR/MDM2/CDK4 的 CN 比在 C0/C1 间的空间分布与小提琴图(图 5h)显示克隆间差异显著。 RNFT2 等基因的活性评分(图 5i)、克隆特异的染色质环(图 5j)及其 GO 富集(图 5k),进一步把"结构变异—可及性—基因调控"串成一条空间线索。
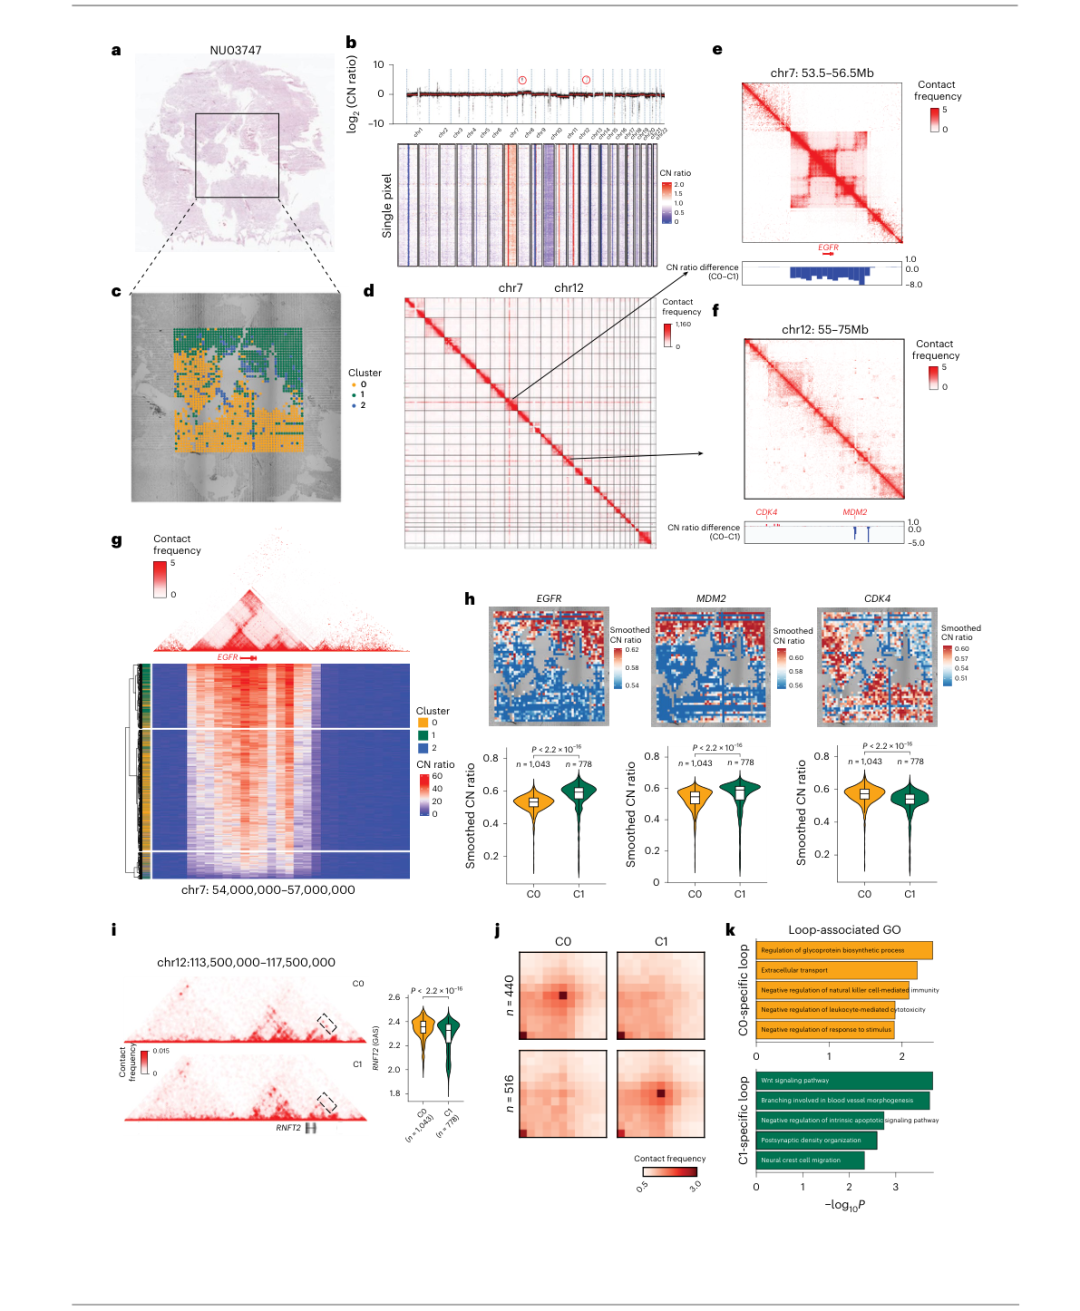
▲ 图5|GBM 样本的三维基因组+表观+拷贝数共解析:a H&E;b chr7/chr12 拷贝数扩增(EGFR、CDK4/MDM2 所在区)及单像素 CN 热图;c 基于 CN 的聚类空间分布;d 全基因组 pseudo-bulk Hi-C;e–f C0/C1 两克隆在 chr7、chr12 的 CN 差异;g EGFR 区域;h EGFR/MDM2/CDK4 的 CN 比空间分布与小提琴图(C0/C1 差异显著);i RNFT2 基因活性评分;j–k 克隆特异染色质环与 GO 富集。
八、这件事对科研与临床意味着什么
站在技术服务与转化的角度,Spatial-ATAC-Hi-C 有几个值得关注的点:
一次切片,三层信息
:三维基因组结构、染色质可及性、空间位置一次拿全,且天然保留组织结构——特别适合肿瘤微环境、发育图谱、神经科学。 空间 CNV/SV 检测能力
:与 WGS 对齐的拷贝数推断,意味着它能在"结构变异"层面做空间异质性分析,而不只是看表达。 临床可延展
:GBM 案例里 chr7/chr12 扩增、C0/C1 克隆异质性的空间定位,正是肿瘤演进、耐药、预后研究关心的抓手。
对正在做空间多组学、肿瘤微环境或神经发育方向的团队来说,这项技术把"在哪、结构如何、是否开放"三个问题统一到了同一个坐标系。
九、小结
Spatial-ATAC-Hi-C 用一个微流控平台,第一次在单张组织切片上把全基因组三维基因组结构和染色质可及性同时做了空间解析,并用 2500 个像素网格把每一层信息都定位回组织原位。从方法验证、小鼠脑细胞图谱、3D 基因组空间异质性,到肿瘤样本的空间 CNV 与克隆异质性,它展示了"结构 + 表观 + 空间"三位一体的解析力。对做空间组学和肿瘤研究的团队,这是一个值得跟进的新工具。
本文基于 Nature Methods(2026)论文 "Spatial chromatin architecture and accessibility co-profiling of mammalian tissues"(doi:10.1038/s41592-026-03217-4)整理,供科研科普交流。如需把这类空间多组学技术接入实际课题,欢迎进一步探讨实验设计与数据分析方案。