
 English
文献解读|Nature(56.1):细胞内补体因子H保护炎症环境中的神经元
✦ +
+
论文ID
原名:Intracellular complement factor H protects neurons during CNS inflammation
译名:细胞内补体因子H在中枢神经系统炎症中保护神经元
期刊:Nature
影响因子:56.1
发表时间:2026.9.2
DOI号:10.1038/s41586-026-10981-y
背 景
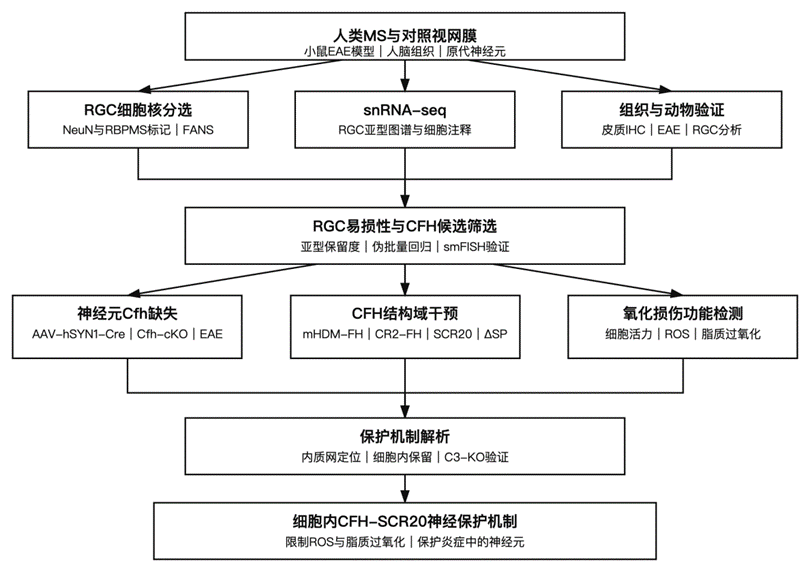
多发性硬化(MS)是一种中枢神经系统(CNS)慢性炎症性疾病,持续的神经元和轴突损伤是残疾进展的重要原因。现有治疗主要调节外周免疫反应,如何增强神经元自身抵御炎症损伤的能力,仍是神经保护研究的关键问题。视网膜神经节细胞(RGC)负责将视觉信息传向大脑,其轴突构成视神经,在MS中可发生明显退变。不同RGC亚型具有不同的转录特征和损伤敏感性,为寻找神经元内源性保护机制提供了切入点。补体因子H(CFH)通常被视为分泌到细胞外的补体替代途径抑制因子,其在神经元内部是否具有独立功能尚不清楚。本研究通过人视网膜单核RNA测序(snRNA-seq),将RGC亚型在MS中的相对保留程度与基因表达联系起来,随后结合人脑组织、实验性自身免疫性脑脊髓炎(EAE)小鼠和原代神经元实验,解析CFH对氧化应激、脂质过氧化及神经元存活的调控作用。
实验设计
结 果
01
人视网膜单核图谱锁定与神经元抗损伤能力相关的CFH
为寻找神经元抵御炎症损伤的内源性因素,作者首先利用神经元核标志物NeuN和RGC标志物RBPMS,从人尸检视网膜中分选RGC细胞核并开展snRNA-seq,建立覆盖对照与MS样本的转录图谱(图1A-B)。经质量控制获得105,502个RGC细胞核,统一流形近似与投影(UMAP)降维及RBPMS表达验证显示,两组均包含主要RGC类型,为比较不同亚型的易损性提供了基础(图1C-D)。进一步比较各亚型在RGC群体中的相对比例,发现MS相关损伤具有明显的亚型选择性:侏儒型RGC中的MG-ON4、MG-OFF2,以及内在光敏性RGC(ipRGC)的相对比例下降最为突出;ON型伞状RGC(PG-ON)、RGC26和RGC13则相对保留较多(图1E-I)。作者据此排列亚型的抗损伤能力,并将各样本、各亚型的伪批量基因表达与该排序关联,发现CFH表达越高,亚型的相对保留程度越高;G蛋白偶联受体149(GPR149)则呈相反关系,提示两者分别关联抗损伤和易损状态(图1J-K)。随后,单分子荧光原位杂交(smFISH)在人视网膜组织中进一步验证:MS样本中CFH阳性RGC的比例升高,而GPR149阳性RGC的比例降低,与测序筛选结果一致(图1L-M)。这些结果将不同神经元亚型的选择性退变与其分子特征相联系,并把CFH确定为后续功能验证的重点候选因子。
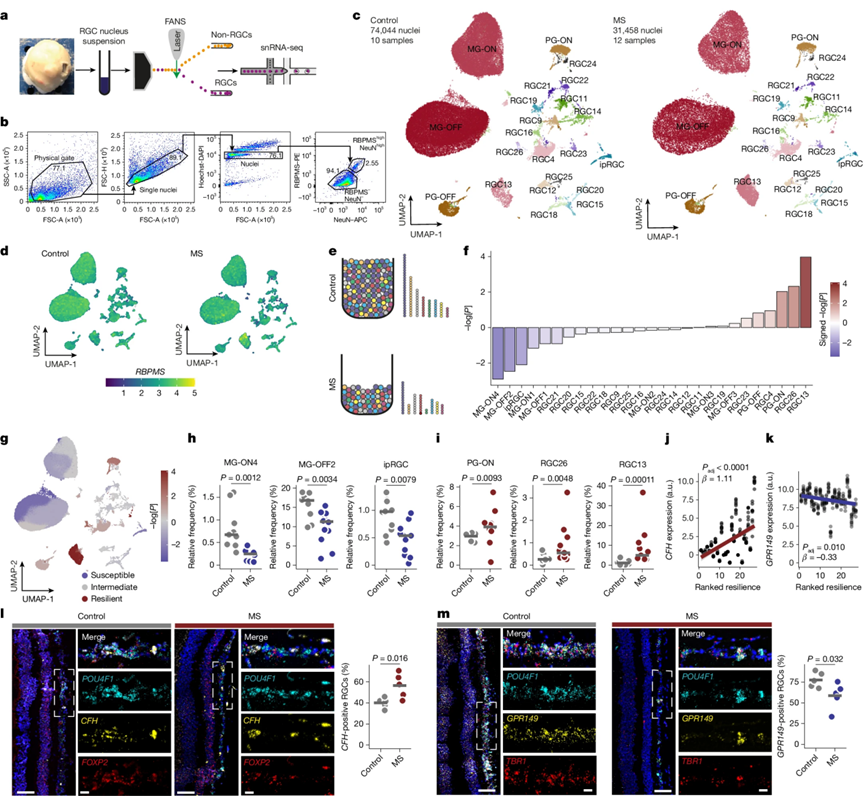
图 1. 人RGC的snRNA-seq分析揭示MS中的亚型特异性易损性。
(A)snRNA-seq实验流程。(B)利用NeuN和RBPMS抗体,通过荧光激活细胞核分选从人尸检视网膜中分离RGC细胞核。(C)对照与MS来源RGC细胞核的UMAP分布。(D)通过RBPMS表达验证RGC身份。(E)对照与MS样本中RGC亚型的分布。(F)根据MS相对于对照的亚型相对频率变化,对RGC亚型的存活保留情况进行排序。(G)整合UMAP图突出显示易损亚型(蓝色)和抗损伤亚型(红色)。(H-I)比较两组中最易损的MG-ON4、MG-OFF2和ipRGC,以及相对保留较好的PG-ON、RGC26和RGC13的相对频率。(J-K)将样本及亚型特异的伪批量基因表达与RGC亚型抗损伤排序关联,显示CFH与抗损伤能力正相关,GPR149与之负相关;亚型由最易损的0位排列至最抗损伤的26位,各点对应不同样本和亚型的基因表达。(L-M)在人视网膜中通过smFISH验证CFH阳性和GPR149阳性RGC的比例,以POU4F1标记RGC;CFH与FOXP2共同染色,GPR149与TBR1共同染色。
02
神经元CFH缺失加重炎症性神经损伤与视觉障碍
在视网膜筛选结果的基础上,作者将研究扩展至其他CNS区域,考察CFH是否参与更广泛的神经元保护。人尸检皮质免疫组织化学显示,对照脑组织中CFH阳性神经元较少,而原发或继发进展型MS患者的慢性活动性病灶及外观正常灰质中,CFH阳性神经元均明显增加,说明这种应答并不局限于视网膜或肉眼可识别的病灶(图2A)。在EAE小鼠中,脊髓运动神经元的CFH荧光信号在急性期和慢性期均高于健康状态,与人组织中的变化相呼应(图2B)。为确定CFH的功能作用,作者在条件性Cfh小鼠中使用神经元特异性启动子驱动的腺相关病毒(AAV)表达Cre重组酶,获得神经元特异性Cfh缺失模型,并与表达绿色荧光蛋白(GFP)的对照进行比较。诱导EAE后,Cfh缺失小鼠的临床评分更高,提示缺少神经元CFH会加重整体疾病表现(图2C)。Optodrum视动反应检测进一步显示,两组在疾病诱导前的视敏度相近,而Cfh缺失组在急性期和慢性期出现更明显的视敏度下降,将分子干预与实际视觉功能损害联系起来(图2D)。组织学检查也给出一致证据:Cfh缺失组脊髓腹角神经元数量减少,免疫后26天的脊髓后索总神经丝染色显示轴突数量下降,表明神经元胞体和轴突均受到更严重损伤(图2E-F)。人组织中的诱导表达与小鼠中的缺失表型共同支持,CFH是炎症环境下神经元的一种保护性应答,其存在有助于维持神经组织完整性和视觉功能。
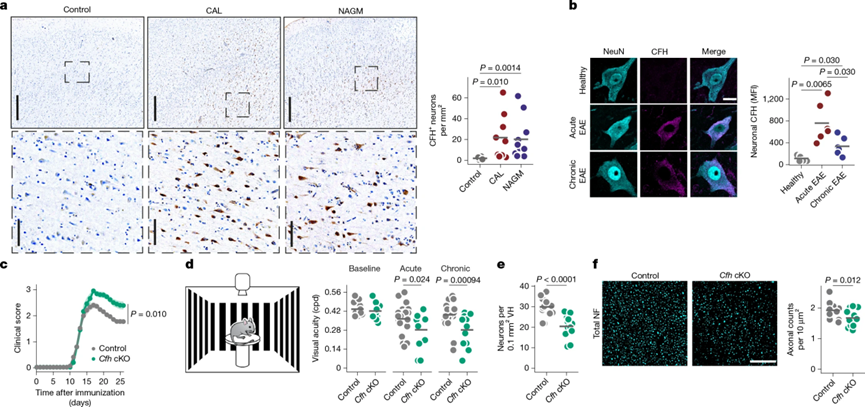
图 2. CFH保护神经元免受炎症诱导的神经退行性损伤。
(A)人尸检皮质中CFH阳性神经元的代表性染色与定量,比较原发或继发进展型MS患者的慢性活动性病灶、外观正常灰质及对照组织。(B)健康小鼠及EAE急性期、慢性期小鼠脊髓运动神经元中CFH的免疫荧光图像与平均荧光强度。(C)在Cfh条件性小鼠中注射AAV-hSYN1-GFP作为对照,或注射AAV-hSYN1-cre产生神经元特异性Cfh缺失,比较两组EAE临床病程。(D)Optodrum视敏度检测示意图,以及对照和Cfh缺失小鼠在基线、EAE急性期和慢性期的视敏度;基线检测在EAE诱导前1周进行,急性期检测在发病后3—4天进行。(E)对照与Cfh缺失EAE小鼠的脊髓腹角神经元计数。(F)免疫后26天脊髓后索总神经丝染色的代表性图像及轴突数量定量,用于评估轴突完整性。
03
CFH通过SCR20结构域抑制氧化应激和脂质过氧化
为明确CFH的保护作用及其结构基础,作者构建全长CFH和多种截短、修饰形式,包括同时含有N端与C端结构域的小鼠同源二聚体最小因子H(mHDM-FH)、主要携带N端结构域的融合蛋白CR2-FH,以及删除或单独表达第20个短一致性重复结构域(SCR20)的构建体(图3A)。在EAE诱导前通过AAV实现神经元表达后,mHDM-FH降低慢性期临床评分,并保留更多脊髓腹角神经元;CR2-FH未显示相同改善,提示两者不同的C端组成与保护作用有关(图3B-C)。作者随后在原代皮质神经元中敲除Cfh,并分别给予谷氨酸、丙二醛(MDA)或谷胱甘肽过氧化物酶4(GPX4)抑制剂RSL3刺激。三种处理下,Cfh缺失均降低细胞活力,同时增加活性氧(ROS)及脂质过氧化,说明内源性CFH参与对抗多种氧化损伤(图3D-F)。反向表达实验进一步显示,全长CFH、mHDM-FH和SCR20能够改善受刺激神经元的存活,而删除SCR20的构建体及CR2-FH不能提供同等保护,将关键功能定位到SCR20(图3G-I)。CellROX成像与定量显示,含SCR20的构建体降低谷氨酸、MDA和RSL3诱导的ROS积累(图3J-M);脂质氧化探针BODIPY C11的成像及比值分析则显示,这些构建体同步减轻膜脂过氧化(图3N-Q)。由动物病程到细胞存活,再到氧化损伤指标,多层结果共同表明CFH的神经保护与SCR20介导的抗氧化、抗脂质过氧化作用密切相关。
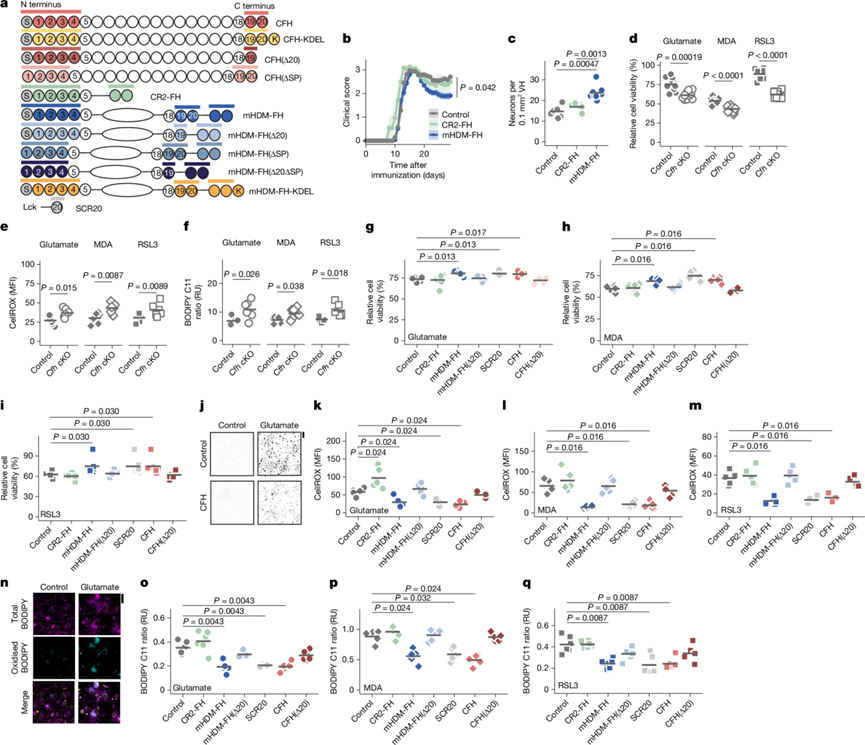
图 3. 神经元CFH表达可抵御EAE中的神经退行性损伤。
(A)本研究所用CFH截短和修饰构建体的示意图,标示N端及C端结构域,包括全长CFH、删除SCR20或信号肽的变体、内质网滞留形式、mHDM-FH系列、CR2-FH及SCR20。(B)雌性C57BL/6J小鼠中,通过AAV在hSYN1启动子驱动下实现神经元特异性GFP、mHDM-FH或CR2-FH表达后的EAE病程,重点比较免疫后20—29天的慢性阶段。(C)上述各组EAE小鼠的脊髓腹角神经元计数。(D-F)以AAV-hSYN1-GFP或AAV-hSYN1-cre转导Cfh条件性小鼠的原代皮质神经元,在谷氨酸、MDA或RSL3刺激后,分别检测细胞活力、CellROX反映的ROS水平以及BODIPY C11反映的脂质过氧化。(G-I)表达所示CFH构建体的神经元在谷氨酸、MDA或RSL3处理后的细胞活力。(J)未刺激及谷氨酸刺激神经元的代表性CellROX图像。(K-M)表达各CFH构建体的神经元在谷氨酸、MDA或RSL3处理后的CellROX平均荧光强度。(N)谷氨酸刺激后的代表性BODIPY C11图像,展示总探针与氧化探针信号。(O-Q)表达各CFH构建体的神经元在谷氨酸、MDA或RSL3处理后的BODIPY C11比值。
04
细胞内CFH的保护作用依赖SCR20且不依赖补体C3
作者进一步在体内检验SCR20的重要性,并区分CFH的细胞内作用与经典补体调控功能。EAE小鼠中,mHDM-FH可减轻临床症状、保留脊髓腹角神经元并降低神经元MDA信号;删除SCR20后,这些保护效应明显减弱,视网膜中被转导RGC的存活也不及完整mHDM-FH组,支持SCR20对体内神经保护的关键作用(图4A-D)。为考察保护是否需要分泌,作者删除分泌信号肽,构建保留于细胞内的mHDM-FH(ΔSP)。该构建体仍能改善谷氨酸、MDA或RSL3处理后的神经元活力,并降低ROS、脂质过氧化及MDA信号;同时删除SCR20和信号肽后则失去相同保护,说明细胞内发挥作用的CFH仍需保留SCR20(图4E-H)。随后,研究在补体成分C3缺失小鼠中表达mHDM-FH,发现其依然能够改善EAE病程、保留腹角神经元并减轻急性期和慢性期视敏度下降,表明保护作用可在缺少C3的条件下维持(图4I-K)。进一步的体内表达实验显示,仅表达不分泌的mHDM-FH(ΔSP),或单独表达SCR20,均能改善疾病表现并减少免疫后30天的神经元丢失(图4L-O)。视觉检测则显示,mHDM-FH、mHDM-FH(ΔSP)和SCR20均有助于保留疾病过程中的视敏度(图4P)。这些互相补充的干预将神经保护定位于CFH的细胞内抗氧化功能,证明SCR20既是关键功能结构域,也可作为独立的保护性模块开展后续研究。
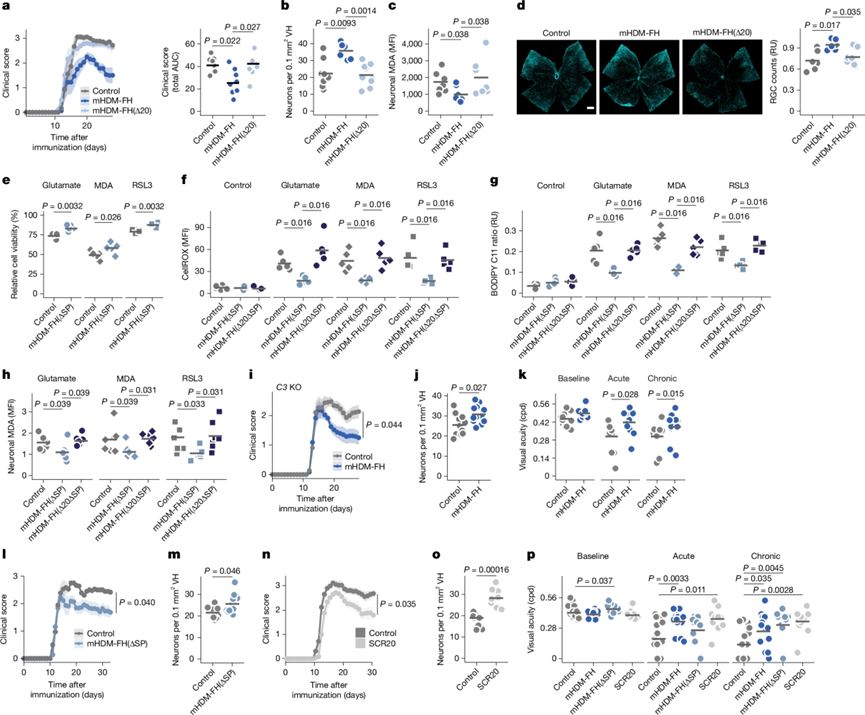
图 4. 细胞内CFH保护神经元抵御氧化应激。
(A)雌性C57BL/6J小鼠经AAV介导神经元表达GFP、mHDM-FH或mHDM-FH(Δ20)后的EAE病程及累计疾病负担。(B-C)免疫后30天脊髓腹角神经元密度及神经元MDA平均荧光强度。(D)免疫后30天GFP阳性RGC的存活图像及相对于健康对照归一化后的计数。(E-H)原代神经元表达mScarlet对照、mHDM-FH(ΔSP)或mHDM-FH(Δ20ΔSP)后,检测谷氨酸、MDA或RSL3刺激下的相对细胞活力、CellROX反映的ROS、BODIPY C11反映的脂质过氧化及神经元MDA信号。(I-K)在C3缺失小鼠中实现神经元GFP或mHDM-FH表达,比较EAE病程、免疫后28天脊髓腹角神经元密度,以及基线、急性期和慢性期视敏度。(L-M)神经元表达GFP或mHDM-FH(ΔSP)后,比较EAE病程和免疫后30天脊髓腹角神经元密度。(N-O)神经元表达GFP或SCR20后,比较EAE病程和免疫后30天脊髓腹角神经元密度。(P)比较表达GFP、mHDM-FH、mHDM-FH(ΔSP)或SCR20的小鼠在基线及疾病急性期、慢性期的视敏度。
+ + + + + + + + + + +
结 论
总之,该研究从人视网膜神经元亚型的选择性易损性出发,鉴定出CFH这一内源性神经保护因子,并通过基因缺失、结构域改造和动物功能实验,揭示其在炎症环境下维持神经元存活的作用。CFH不仅具有传统的细胞外补体调控功能,还能够在细胞内通过SCR20限制ROS积累与脂质过氧化,其保护效应不依赖蛋白分泌,并可在补体C3缺失时维持。结合论文对细胞内定位及铁死亡过程的研究,作者提出增强神经元自身抗氧化防御、尤其是利用CFH及其SCR20功能模块,有望为MS相关神经退行性损伤提供新的干预方向。该工作将治疗思路从控制炎症进一步延伸到提升神经元对炎症的耐受能力,为神经保护策略提供了明确的分子切入点。
+ + + + +