
 English
文献解读|Cancer Cell(56.1):整合临床基因组学分析揭示晚期结直肠癌的演变和转移倾向
✦ +
+
论文ID
原名:Integrated clinicogenomic analysis reveals the evolution and metastatic tropisms of advanced colorectal cancer
译名:整合临床基因组学分析揭示晚期结直肠癌的演变和转移倾向
期刊:Cancer Cell
影响因子:56.1
发表时间:2026.09.01
DOI号:10.1016/j.ccell.2026.08.004
背 景
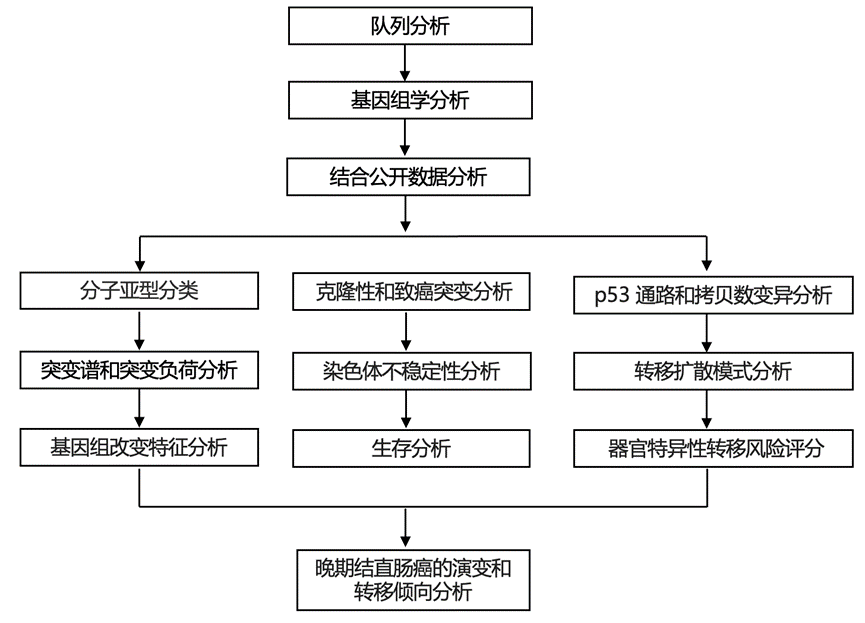
结直肠癌(CRC)是最致命的癌症之一:转移性CRC患者确诊5年后存活率不足五分之一,且发病率不断上升,使其成为50岁以下人群癌症死亡的首要原因。然而,转移发生的时间和程度在不同患者之间差异很大。了解转移的趋向性、每个转移部位的发生时间和预后,以及CRC分子亚型、原发肿瘤位置和肿瘤基因组学的影响,将有助于制定更具针对性的监测策略,并识别潜在的靶点以尝试阻止转移扩散。为了改进 CRC 的治疗方法,当前科学家需要更全面地了解这些靶点的基因组,包括这些改变是否是克隆性的、是否存在于所有转移部位、以及在肿瘤演变过程中是否通过获得突变等位基因或丢失野生型等位基因(等位基因失衡)而增强,以及继发突变的作用、频率和克隆性。
实验设计
结 果
01
本项研究的队列特征
在临床环境中,整合MSK-IMPACT(纪念斯隆-凯特琳癌症中心可操作癌症靶点整合突变分析)基因组分析的 CRC 病例系列共包含来自 6789 例患者的 7238 个结直肠腺癌样本,其中包括 5174 个原发性样本和 2,063 个转移性样本。与 2018 年 TCGA(癌症基因组图谱)CRC 病例系列相比,本系列病例中转移性样本、直肠原发性肿瘤、50 岁以下诊断的患者以及诊断时为 IV 期疾病的患者比例更高,而 MSI-H(微卫星不稳定性高)肿瘤的比例更低(图 1A)。在2018年MSK CRC队列的基础上,本队列纳入了更多早期诊断的患者(反映了患者病程中测序时间提前的趋势),以及更高比例的MSI-H肿瘤和直肠原发肿瘤(反映了MSK的研究方向)(图1A)。与既往研究一致,早发性CRC病例主要位于左侧或直肠原发部位。研究团队定义了两个亚组进行分析:FACETS队列(n = 5520),该队列包含来自FACETS(肿瘤测序的等位基因拷贝数和等位基因特异性拷贝数估计)的完整等位基因拷贝数信息;以及临床队列(n = 4517),该队列包含完整的临床数据(图1B)。按分子亚型分类,有 5946 个微卫星稳定型 (MSS),775 个 MSI-H,以及 68 个超突变型 (致病性 POLE/POLD1、pPOLE/POLD1)(图 1 C)。
在MSK接受治疗且至少有5年随访数据或直至死亡日期数据可用的患者中评估了治疗模式(图1D)。化疗是转移性结直肠癌的主要治疗方法;超过90%的转移性MSS肿瘤患者接受了化疗,正如预期的那样,这些患者中接受免疫检查点阻断(ICB)治疗的患者非常少。对于MSI-H转移性结直肠癌,约一半患者在治疗过程中接受了化疗,约一半患者接受了ICB治疗。对于超高突变转移性肿瘤患者,几乎所有患者仍然接受了化疗,并且很大一部分患者也接受了ICB治疗。所有转移性结直肠癌患者中仅约3%接受了BRAF靶向治疗,而原发肿瘤患者的这一比例增加到4%。MSI-H转移性结直肠癌患者使用EGFR(表皮生长因子受体)抑制剂的比例也低于预期(5%)。对于非转移性结直肠癌,大多数微卫星稳定型(MSS)和超突变型肿瘤患者接受了化疗,而微卫星不稳定性高型(MSI-H)肿瘤患者接受化疗的比例则低得多。在MSS肿瘤中,右侧结肠原发肿瘤和左侧结肠原发肿瘤接受化疗的比例相似,而直肠原发肿瘤接受化疗的比例更高。治疗模式并未因患者年龄而发生显著变化,但年轻患者接受辅助化疗的比例可能更高。对于同时具有治疗前后样本的病例(n = 131),在肿瘤基因组学、基因组改变分数(FGA)、突变谱和肿瘤突变负荷(TMB)的比较中未观察到明显差异。
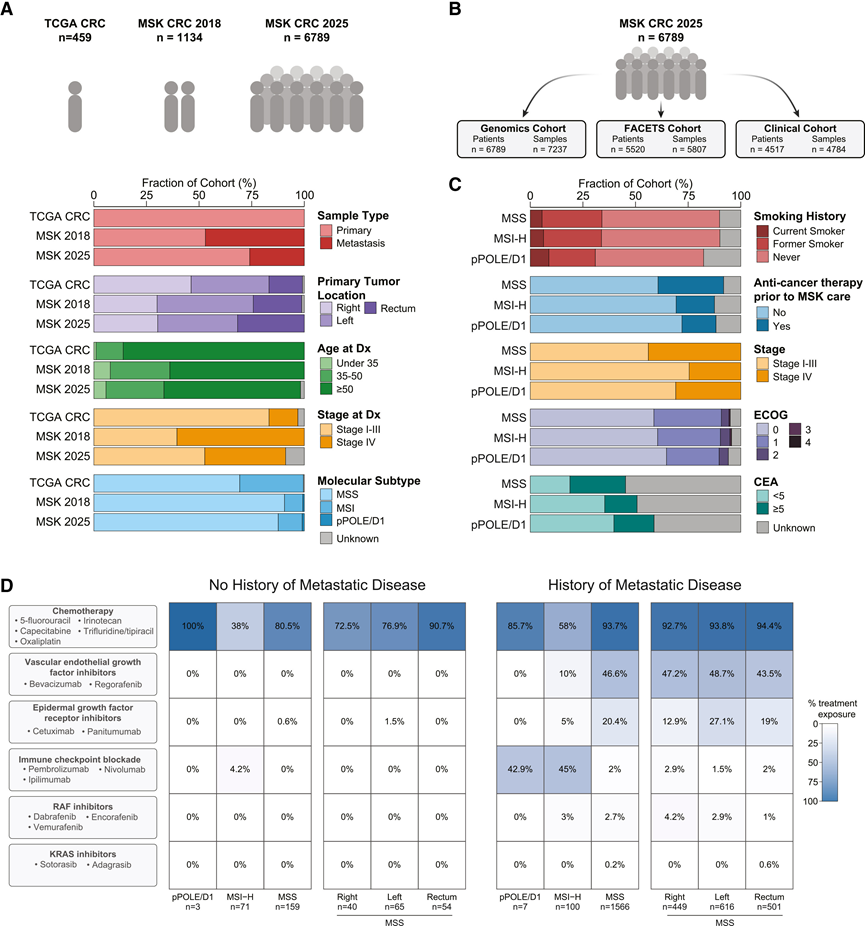
图1. 研究队列特征。
(A) TCGA PanCancer Atlas 结直肠癌(CRC)队列(TCGA CRC)、2018 年 CRC MSK-IMPACT 系列(MSK 2018)和当前 MSK CRC 队列(MSK 2025)的比较。(B) 将 MSK CRC 2025 队列细分为亚组进行分析。(C) 比较微卫星稳定(MSS)(n = 5946)、微卫星不稳定性高(MSI-H)(n = 775)和超突变(致病性 POLE/POLD1、pPOLE/POLD1)(n = 68)病例。(D) 按分子亚型和(对于 MSS 病例)按原发肿瘤位置进行治疗史。
02
MSS CRC 的克隆性和突变分析
他们评估了CRC中常见的基因组改变(图2A,图S2A)。MSS CRC中最常见的改变基因是TP53、APC和KRAS,其次是SMAD4、PIK3CA、FBXW7、SOX9、TCF7L2和BRAF。常见的扩增涉及20号染色体的q臂(BCL2L1、DNMT3B、SRC)、MYC、ERBB2、EGFR和ERBB3(图2A)。对于pPOLE/D1病例,磷脂酰肌醇3-激酶(PI3K)通路内的基因改变(PIK3CA、PIK3R1、PTEN和FBXW7)尤为常见。考虑到原发肿瘤位置的差异,各年龄组的复发性基因组改变相似,早发性 CRC 中TP53突变显著但适度增加, APC突变减少(图 2 B)。
三种分子亚型具有不同的基因组特征。pPOLE/D1 病例的肿瘤突变负荷 (TMB) 最高;微卫星不稳定性高 (MSI-H) 病例的插入/缺失 (InDel) 突变比例最高;微卫星稳定 (MSS) 病例的全基因组关联 (FGA) 最高(58.0%)(图S2B)。在 MSS 队列中,致癌突变比非致癌突变更常呈克隆性(图S2C)。等位基因失衡(即突变等位基因与野生型等位基因的比例与 50% 不同)在 MSS 肿瘤中最常见,且在功能获得 (GOF) 和功能丧失 (LOF) 突变中最为常见(图S2D)。在最常发生突变的基因中,等位基因失衡的频率在不同年龄组的患者中总体相似。
近期基因组研究表明,克隆性和等位基因失衡可能影响癌症预后。在微卫星稳定型结直肠癌(MSS CRC)中,最常发生突变的基因中的致癌突变通常是克隆性的,并且与不常发生突变的基因中的致癌突变相比,其克隆性显著更高(图2C)。对于意义不明的突变,克隆性突变的比例与基因改变频率无关(图2C),并且与罕见改变基因中的致癌突变相似(图S2E)。
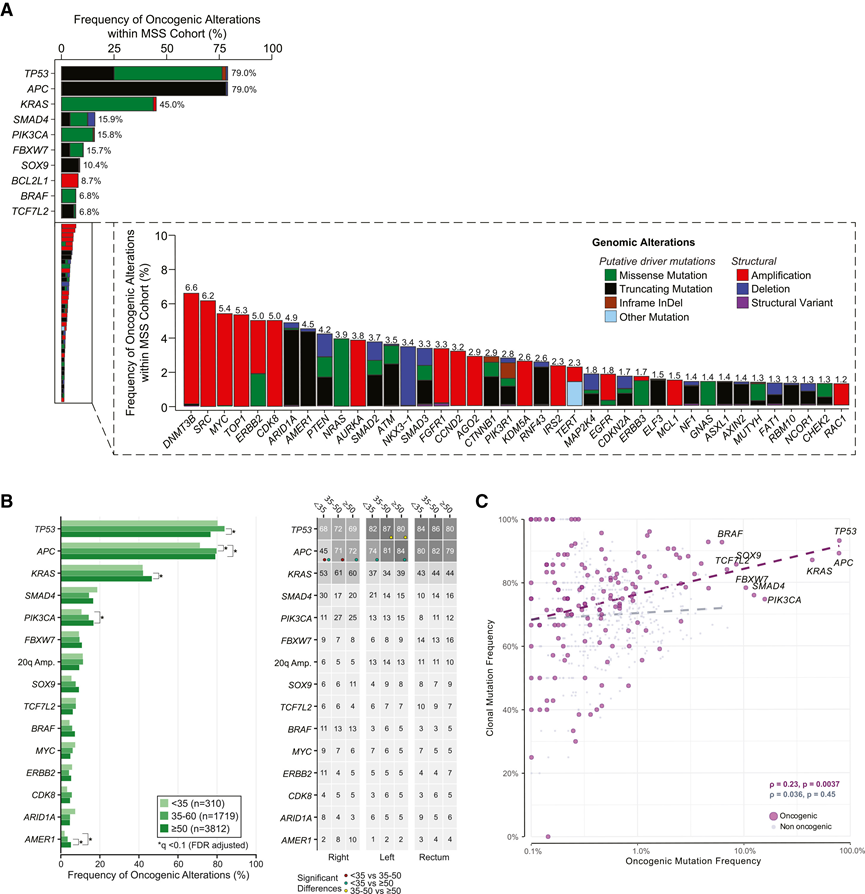
图2. MSS CRC 突变图谱。
(A) 常见变异基因。柱状图颜色代表变异类型。(B) MSS CRC 的复发性改变,按患者年龄组和原发肿瘤位置细分。(C) 突变发生率(x轴)与克隆突变相对比例(y轴)之间的关系。
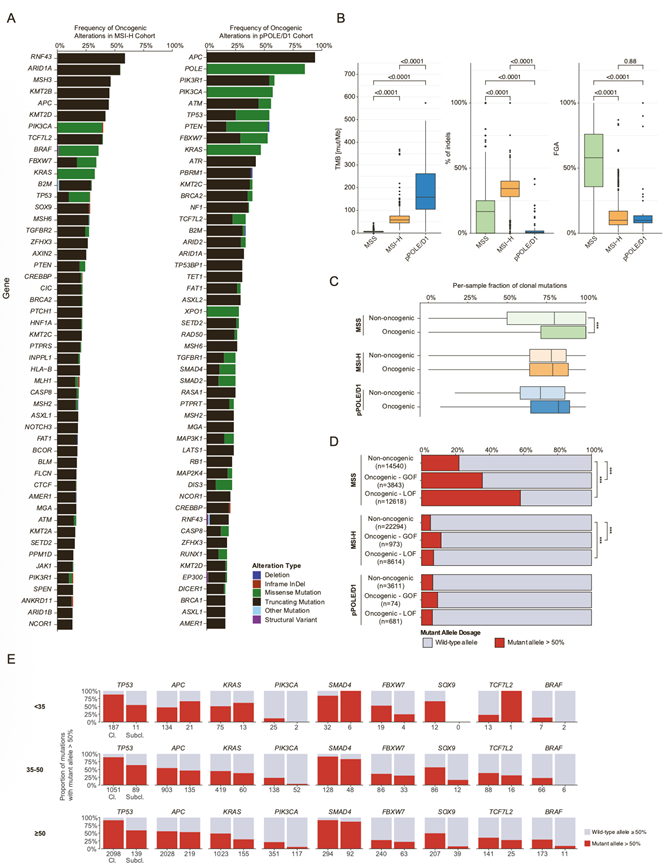
图S2. 不同分子类别和年龄亚组中的突变图谱不同分子类别和年龄亚组中的突变图谱。
(A) MSI-H 和 pPOLE/D1 患者中致癌性改变的发生。(B)三个分子亚组在(从左至右)肿瘤突变负荷(TMB)、每样本插入/缺失(InDel)突变占总变异数的比例以及基因组改变比例(FGA)上的比较。(C) 致癌性与非致癌性突变之间克隆性变异占总变异数比例的比较。(D) 正向突变等位基因选择的相对丰度差异。(E) 按患者年龄组划分,结直肠癌中最常发生改变的基因中克隆性(CL.)或亚克隆性(SUBCL.)突变的等位基因不平衡比例。
03
MSS CRC中的等位基因失衡
TP53、KRAS、PIK3CA、SOX9和BRAF的克隆突变与突变等位基因的阳性选择相关,而APC则不然(图 3A)。他们假设同一样本中共存的APC突变可能影响克隆性和等位基因失衡的压力。与此一致,在具有 ≥2 个APC突变的样本中,亚克隆突变的百分比更高,而在仅具有一个APC突变的肿瘤中,突变剂量显著更高(图 S3C)。因此,仅具有一个APC致癌突变的样本与其他 CRC 基因组驱动基因一样,保持着克隆性和剂量之间的相同关系(图 3B)。单个APC突变伴等位基因失衡和APC中的多个突变而无潜在的拷贝数变化,因此代表了增强这些改变效果的两种机制。
他们研究了139对原发肿瘤-转移灶配对样本中,特有突变与共有突变的克隆性和等位基因失衡是否存在差异。配对的原发肿瘤-转移灶样本之间的致癌突变高度一致,542个原发肿瘤致癌突变中有475个(87.6%)与相应的转移灶样本共存(图S3 D)。在原发肿瘤致癌突变中,与特有原发突变相比,共有突变更常表现出正向等位基因选择,且更常为克隆性突变(图S3 E)。这些数据表明,在原发肿瘤中选择为克隆性突变并受等位基因失衡增强的突变更可能存在于转移灶中。
最后,他们评估了染色体不稳定性及WGD如何影响突变(图3C和图S3F-J)。总体而言,发现WGD+组中具有正向突变等位基因选择的突变比例更高,这是由于野生型等位基因丢失频率更高,而非突变等位基因拷贝数增加所致。然而,对于具有克隆性KRAS突变的样本,突变型KRAS等位基因的获得相对比野生型等位基因的丢失更为普遍(图S3K)。
为了解突变剂量的临床意义,他们分析了CRC中最常见的突变基因的突变剂量对患者生存的影响(图3D、图S3L-M)。正如预期的那样, KRAS或BRAF基因突变的存在与较差的生存率相关。然而,除转移性CRC外,这两个基因突变剂量的增加均不影响生存率;在转移性CRC中,KRAS突变的获得与较短的生存期相关(图3E)。APC基因突变与生存率的提高相关,且突变剂量并未增强这种效应。唯一与生存率相关的其他基因是SMAD4,这是一个已知的预后不良标志物。有趣的是,在SMAD4基因中,即使没有等位基因失衡,杂合突变也会导致更差的预后,而较高的突变剂量似乎具有一定的保护作用,使生存率与野生型SMAD4 CRC相似。
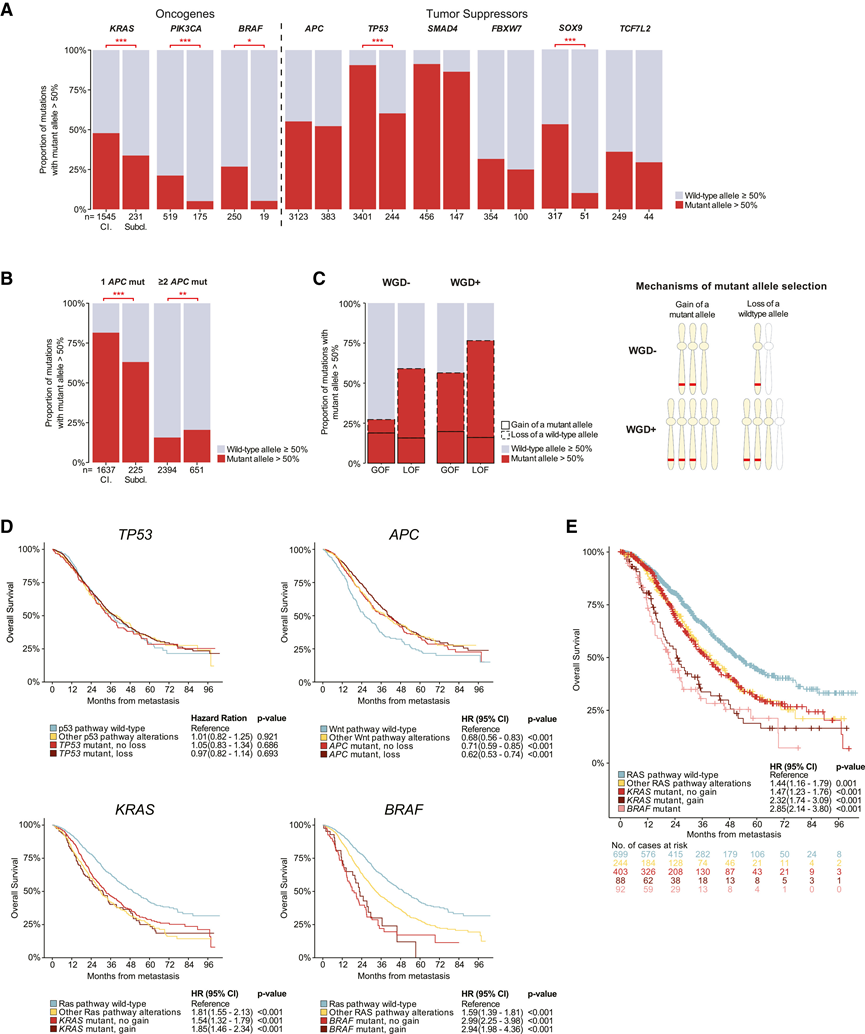
图3. MSS CRC中的等位基因失衡。
(A) 根据克隆(Cl.)或亚克隆(Subcl.)状态,对频繁改变的基因(≥5%)进行阳性突变等位基因筛选。(B) 根据APC突变克隆状态进行阳性突变等位基因选择。(C) 功能丧失(LOF)或功能获得(GOF)突变的正等位基因选择的机制和频率,根据每个样本的全基因组加倍(WGD)状态,由预期突变等位基因的数量定义。(D) 从转移性疾病诊断到总生存期(OS)的 Kaplan-Meier 曲线显示了TP53、APC、KRAS和BRAF突变剂量的影响。(E) 根据左侧或直肠原发肿瘤患者的 RAS 通路改变类型对转移性疾病诊断后的总生存期进行分层的 Kaplan-Meier 曲线。
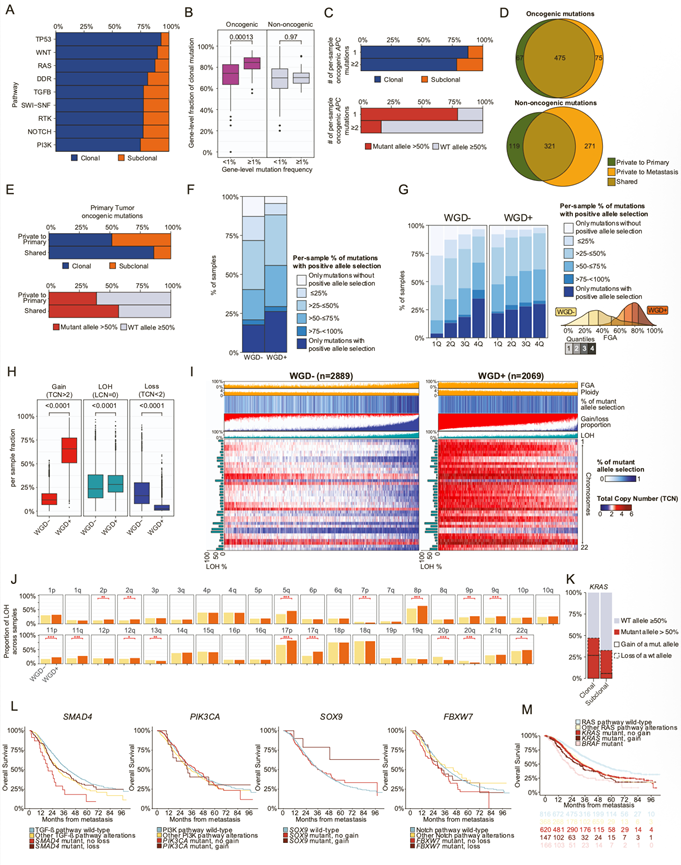
图S3. 克隆性与等位基因失衡。
(A) 在微卫星稳定(MSS)样本中,各通路发生克隆性改变的样本比例。(B) 克隆突变的基因水平分数根据二分类基因改变患病率(x轴);单独进行的分析对于致癌和非致癌突变。(C) 根据样本层面的APC突变数量,克隆性改变样本的比例(上)以及阳性突变等位基因选择样本的比例(下)。(D) 显示原发性与匹配转移样本在致癌突变(上)或非致癌突变(下)之间重叠情况的韦恩图。(E) 根据原发肿瘤突变是否仅存在于原发样本中,或在原发肿瘤与同一患者匹配的转移样本之间共存,分析了克隆性突变的比例(上)以及具有正向等位基因选择的突变比例(下)。(F) 根据全基因组加倍(WGD)的存在情况,不同样本中具有阳性突变等位基因选择的突变比例——以渐变色标示。(G) 根据FGA(基因组改变比例)和WGD状态,各样本中亚克隆突变的分布情况。(H) 根据WGD状态,基因组中总拷贝数(TCN)大于2的样本比例(左)、缺失杂合性(LOH)(中)以及TCN小于2的样本比例(右)。(I) 热图显示了FACETS估算的每条染色体臂的TCN。(J) 根据WGD状态,特定染色体臂的LOH样本比例。(K) KRAS基因突变等位基因选择的相对比例,根据(亚)克隆性(x轴)以及突变等位基因选择的潜在机制。(L) 根据指定基因突变的突变剂量,从转移诊断时的整体生存率(OS)的Kaplan-Meier曲线。(M) 根据原发肿瘤中RAS通路变异类型对转移诊断进行分层的OS Kaplan-Meier 曲线——所有样本均纳入,无论原发肿瘤位置如何。
04
TP53状态对拷贝数变更的影响
为了解基因组改变如何影响肿瘤发展,他们更深入地研究了p53通路改变(TP53、ATM或CHEK2突变,MDM2或MDM4扩增)与基因和染色体水平拷贝数改变之间的关系。从MSI-H到MSS WGD−再到MSS WGD+病例,FGA呈逐渐升高趋势(图S4 A)。与此同时,这些组别中p53通路改变的选择压力也逐渐增大,这体现在p53通路改变的绝对频率、该通路中亚克隆突变的相对比例以及该通路中突变等位基因正向选择的相对比例(图S4 B-C)上,并且这些变化最终转化为更高的FGA(图S4 D)。这些数据表明,p53 通路改变可能是 MSI-H 和 MSS 病例之间以及 MSS 病例内部 FGA 差异的潜在原因。
接下来,他们研究了p53通路状态对MSS/WGD−肿瘤染色体拷贝数的影响。虽然染色体缺失和杂合性缺失(LOH)在p53通路改变的样本中富集,但染色体扩增在p53突变型和野生型病例中分布均匀(图4A-B,图S4E);有趣的是,他们观察到p53通路野生型样本中12号染色体扩增的频率增加:12p和12q,这些臂分别携带KRAS和MDM2基因。
这些数据提示,12号染色体的扩增可能是由于KRAS突变等位基因的选择所致,而MDM2可能在此事件之后继发扩增,从而可能影响p53通路改变的选择性需求。来自一位接受KRAS G12C抑制剂索托拉西布联合EGFR抑制剂帕尼单抗治疗的KRAS G12C CRC患者的治疗前和进展期样本显示, MDM2扩增与KRAS拷贝数增加同时发生(图4C)。事实上,12p染色体扩增率最高的是KRAS突变但p53未改变的病例(图4D),并且12p和12q臂的扩增高度一致。在另一组包含 386 例 MSS CRC 样本且 mRNA 表达数据可用的队列中,他们验证了MDM2和KRAS的显著共表达(图 4E),并且发现MDM2在TP53野生型样本中的表达水平尤其高(图 4F)。此外,在 p53 通路未发生改变的病例中,MDM2 的扩增与较高的 FGA 相关,表明这种扩增具有功能性影响(图 4G)。在TCGA和独立的Caris Life Sciences MSS CRC队列中,与其它TP53/KRAS基因型相比,野生型TP53和突变型KRAS的CRC中MDM2表达最高(图4H)。与此一致,来自癌症药物敏感性基因组学(GDSC)的药物反应数据显示,在MDM2拷贝数中性的TP53野生型CRC细胞系中,MDM2扩增的细胞对MDM2抑制剂Nutlin-3a的敏感性有增加的趋势,中位自然对数IC50分别为1.52和2.38(图S4F)。
CRC 的一些关键基因组驱动基因突变在 p53 通路未发生改变的 CRC 病例中富集,包括KRAS、PIK3CA和SOX9(图 S4 G)。最后,他们使用匹配的原发肿瘤和转移样本来研究假定的“pre-WGD”状态,发现,在MSS病例中,WGD−原发肿瘤伴WGD+转移肿瘤的p53通路改变频率和FGA值高于WGD−原发肿瘤伴WGD−转移肿瘤(图S4 H-J)。
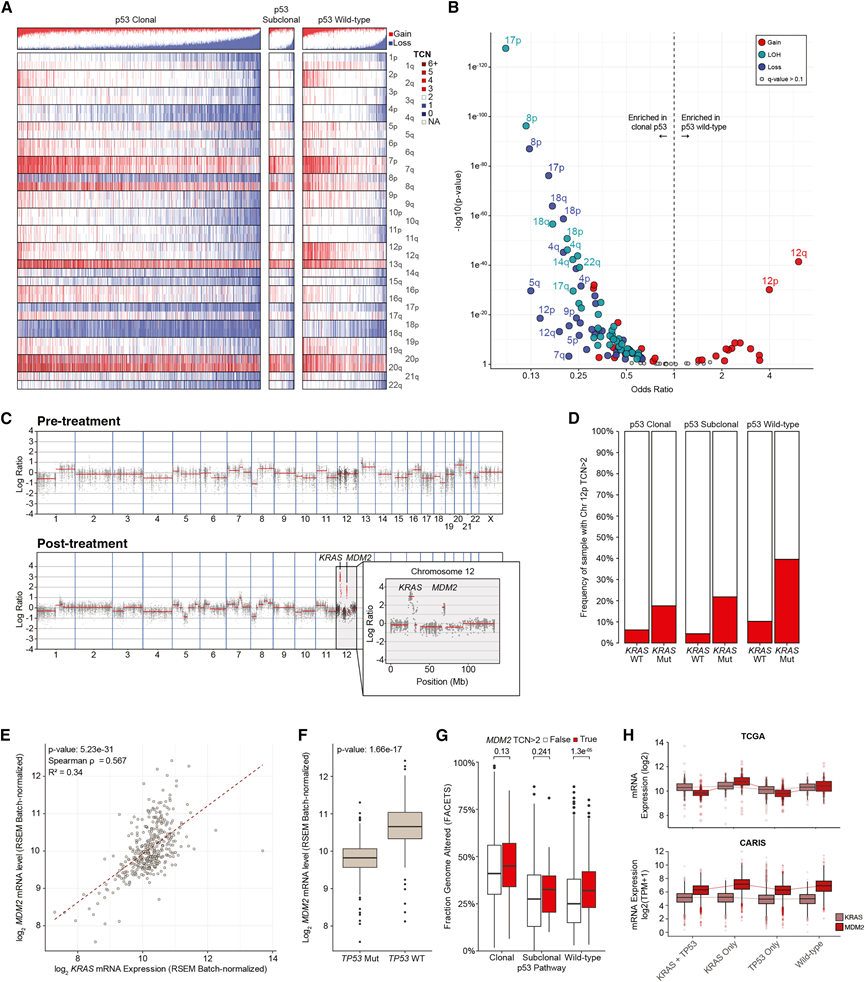
图4. p53 通路和拷贝数变异 (CNA)。
(A) 基于 FACETS 的染色体臂总拷贝数(TCN)(行),取决于样本(列)的 p53 通路克隆性状态(克隆:至少一个克隆突变;亚克隆:只有亚克隆突变)。(B) 根据MSS WGD−样本中p53通路克隆性改变状态,分析染色体臂拷贝数变异(CNA)的差异性富集情况。(C) 基线和进展临床样本显示获得性KRAS扩增和MDM2增益。(D) 根据KRAS突变和 p53 通路克隆性状态,染色体 12p TCN > 2 的样本比例。(E) TCGA PanCan队列中KRAS和MDM2 mRNA的表达。(F) 根据TP53突变状态分析MDM2 mRNA表达。(G) MDM2和 p53 通路突变状态的 TCN 改变的基因组比例。(H) TCGA 和 Caris Life Sciences 队列中TP53/KRAS基因型与MDM2 mRNA 表达的关系。
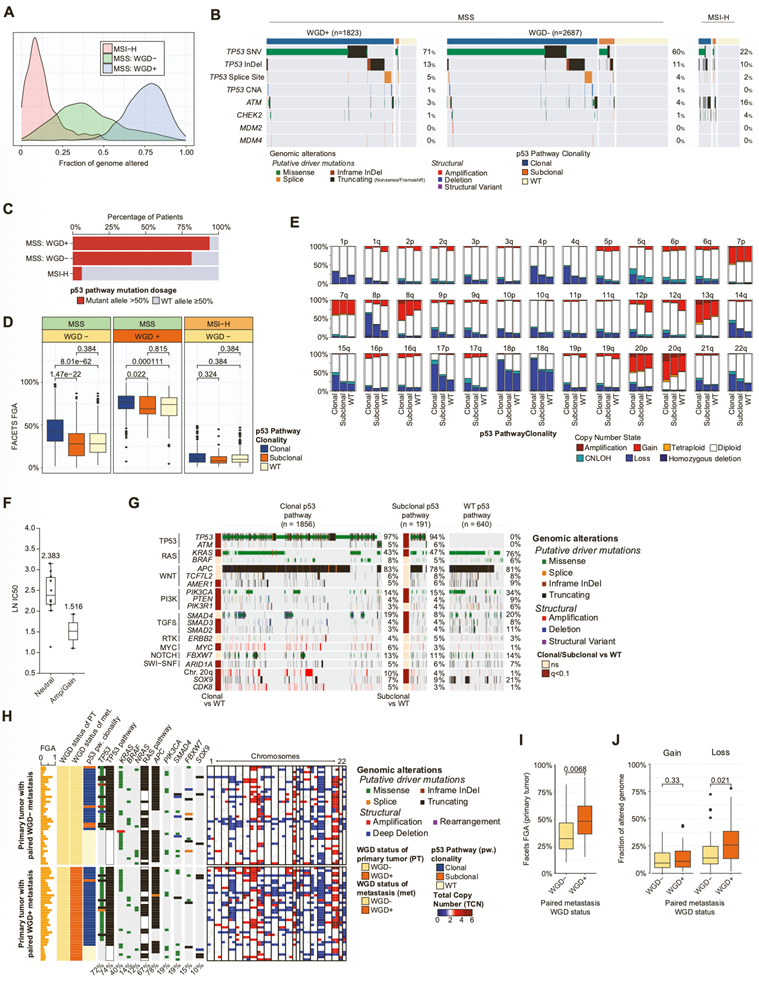
图S4. 拷贝数改变、p53通路与全基因组加倍状态的相互作用。
(A) 根据微卫星不稳定性状态和全基因组加倍(WGD)情况,基因组改变比例(FGA)的密度图。(B) Oncoprint显示MSS WGD+、MSS WGD-和MSI-H样本中p53通路的改变情况。(C) 样本中至少有一个p53通路基因突变且存在阳性突变等位基因选择的比例,取决于微卫星状态和WGD。(D) FGA与p53通路克隆性相关。(E) 根据p53通路的克隆性确定每条染色体臂的拷贝数状态。(F) 根据癌症药物敏感性基因组(GDSC)库中MSS、TP53野生型CRC细胞系的MDM2获益状态,MDM2抑制剂nutlin-3A的IC50值;y轴为对数刻度。(G) Oncoprint显示了根据p53通路状态而变化的MSS和WGD样本;行代表基因,按相应通路分组;每列代表一个样本。(H) 根据配对转移灶的WGD状态比较WGD-原发肿瘤的热图。(I) 根据匹配转移样本的WGD状态,WGD-原发肿瘤的FGA(y轴)。(J) 根据匹配转移样本的WGD状态,WGD-原发肿瘤在基因组中出现增益(左)或缺失(右)的比例。
05
转移扩散模式
他们利用从放射学报告中自动收集的数据,研究了临床队列中七个部位(肝脏、肺、腹膜、生殖系统、骨骼、脑和肾上腺)的转移模式。中位随访时间为44.6个月。每位患者在确诊结直肠癌后平均有11份放射学报告。在MSS型结直肠癌患者中,72.2%存在转移性疾病;在MSI-H型结直肠癌患者中,36.9%存在转移性疾病;在pPOLE/D1型结直肠癌患者中,40.4%存在转移性疾病。
在所有三个关键时间点,MSS CRC患者发生两个或多个不同器官转移的比例显著高于MSI-H CRC患者(图5A)。在转移诊断时,不同的转移模式已经显现。与MSS CRC患者和pPOLE/D1 CRC患者相比,MSI-H CRC患者的肝转移发生率较低。MSS CRC 患者的肺转移发生率也最高,而 MSI-H CRC 患者的腹膜转移发生率更高。
在转移性MSS病例中,转移的中位时间(TTM)范围从肝转移的1.2个月到脑转移的23.2个月(图5B)。相反,在MSI-H病例中,转移部位的顺序不太明显。他们分别研究了原发肿瘤位置对MSS和MSI-H病例转移趋向性的影响。转移模式因原发部位而异,包括MSS直肠癌中肝转移发生率较低而肺转移发生率较高,MSS结肠癌和MSI-H结肠癌中腹膜转移发生率较高,以及直肠癌中骨转移发生率较高(图5C)。在MSS病例中,患者年龄对诊断转移时转移灶的数量和性质基本没有影响。在35岁之前诊断为右侧原发肿瘤的患者中,提示转移负荷可能增加,这可能是由于右侧肿瘤诊断较晚所致,而右侧肿瘤不太可能出现明显的直肠出血。
随后,他们采用包含时间依赖性协变量并校正原发肿瘤位置的多变量Cox回归模型,评估了MSS CRC患者在其他部位发生转移的情况下,各指定部位发生转移的条件风险(图5D)。值得注意的是,在不同的共存模式中,他们发现骨转移或肺转移的存在显著增加了脑转移的风险(图5D-E)。生殖系统转移最常发生于腹膜转移的情况下;而肝脏、生殖系统和肾上腺转移(均为腹部器官)均与腹膜受累风险增加相关。骨转移通常并非作为单一的首发转移部位出现,而是与其他转移部位的既往受累相关,其中与脑和肾上腺受累的相关性最强。为了综合考虑不同的预后因素和转移部位出现时间,他们分析了每个器官从确诊转移至该部位的中位总生存期(图 5H)。在 MSS 队列中,肝转移确诊后的中位总生存期为 33.3 个月,而脑转移和肾上腺转移的中位总生存期均不足一年。这些数据表明,脑转移和肾上腺转移通常是 CRC 转移扩散的晚期事件。
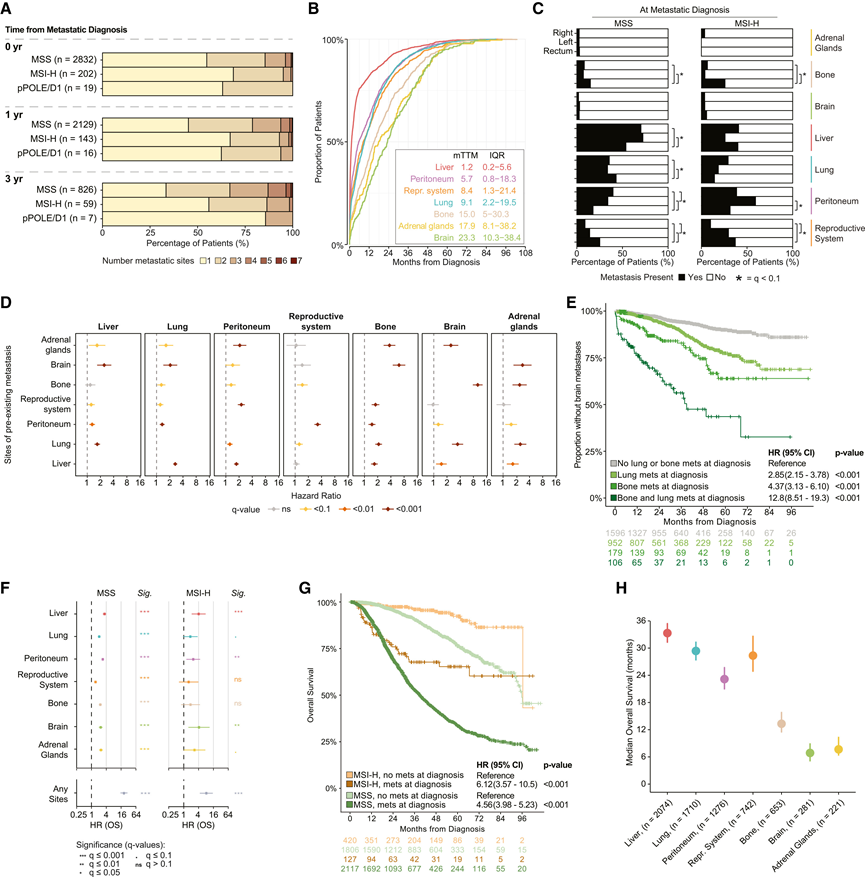
图5. 转移模式分析。
(A) 转移诊断时(第 0 年)以及 1 年和 3 年后,按分子亚组划分的转移部位(肝脏、肺、腹膜、生殖系统、骨骼、脑和肾上腺)数量。(B) MSS CRC 患者发生转移至各部位的累积转移发生率。(C) 按原发肿瘤部位和分子分型划分的转移性结直肠癌患者发生特定器官转移的比例。(D) 多元时变Cox回归分析系数,用于研究不同转移部位之间的相互依赖性。(E) MSS 病例中,脑转移的时间取决于诊断时是否存在骨转移和肺转移。(F) 转移部位与总生存期 (OS) 关联的多变量模型:将转移的存在情况[分别针对七个器官(上图)和任何器官(下图)]作为时间依赖性协变量,分别针对 MSS(左图)和 MSI-H(右图)病例进行建模。(G) OS取决于分子亚组和诊断时是否存在转移性疾病。(H) 从诊断出转移至特定器官之日起的中位总生存期。
06
原发肿瘤基因组学和原发部位在转移趋向性中的作用
他们研究了原发肿瘤基因组特征与MSS CRC转移倾向之间的关联。首先,使用校正原发肿瘤位置的多因素logistic回归分析,考察了关键致癌通路改变的影响。MYC、RAS或TGF-β通路激活的致癌基因改变与转移性疾病的发生率升高相关。相反,在肿瘤中存在DDR(DNA损伤反应)失活突变或NOTCH或WNT通路激活突变的患者中,转移发生率较低(图6A)。他们观察到转移灶数量与SMAD4、KRAS和BRAF基因突变频率呈正相关(图6B),提示这些基因可能在转移中发挥作用。然而,复发性突变基因的突变剂量增加似乎与转移外显率增加无关。他们还检测了复发性拷贝数变异(20q扩增、12p扩增、12q扩增和13q扩增)与转移倾向之间的关联。其中,20q 染色体扩增与转移至任何部位的风险降低相关,对转移至肺、骨、腹膜和生殖系统有明显的保护作用。
影响转移风险的通路因解剖部位而异(图 6C)。他们观察到肺、脑和肾上腺转移之间存在显著的相似性,这些转移在 RAS 和 p53 通路改变的情况下更为常见;腹膜和生殖系统转移之间也存在显著的相似性,这些转移在 RAS 和 TGF-β 通路改变的情况下更为常见,而在 WNT 通路改变的情况下则较少见。RAS 通路激活与所有七个转移部位的转移风险增加相关,提示该通路激活具有更高的转移能力。相比之下,WNT 通路激活仅与肝转移风险增加相关,而肝转移由于结肠引流至门静脉,是结直肠癌更容易发生的转移部位,提示该通路的转移能力有限。
接下来,他们旨在根据原发肿瘤位置和肿瘤基因组特征对特定器官的转移风险进行分层。对于每个转移部位,首先构建了一个多变量逻辑回归模型,以通路改变和原发肿瘤位置作为预测因子。为了验证逻辑回归所选通路的稳健性,他们采用了一系列互补的机器学习方法,包括LASSO、弹性网络和梯度提升,这些方法的结果基本一致。随后,基于预后基因组改变和原发肿瘤位置,为每位患者计算了七个器官特异性“风险评分”;脑和肾上腺器官特异性模型的因素相同。这些风险评分与相应器官的转移风险显著相关,并且能够对不同时间点的转移性疾病患者比例进行分层。因此,结合原发肿瘤位置和通路改变可以有效地对器官特异性转移时间进行分层(图6 D)。他们使用一个独立的队列验证了这些评分。在这个独立的队列中,他们观察到肝脏、肺部和腹膜评分(而非骨骼或脑部评分)与相应的转移风险显著相关。最后,发现了一个与脑转移风险高度相关的特征,该特征由肺转移和骨转移组成,并且 TGF-β 通路的改变进一步增强了这种关联(图 6 E)。
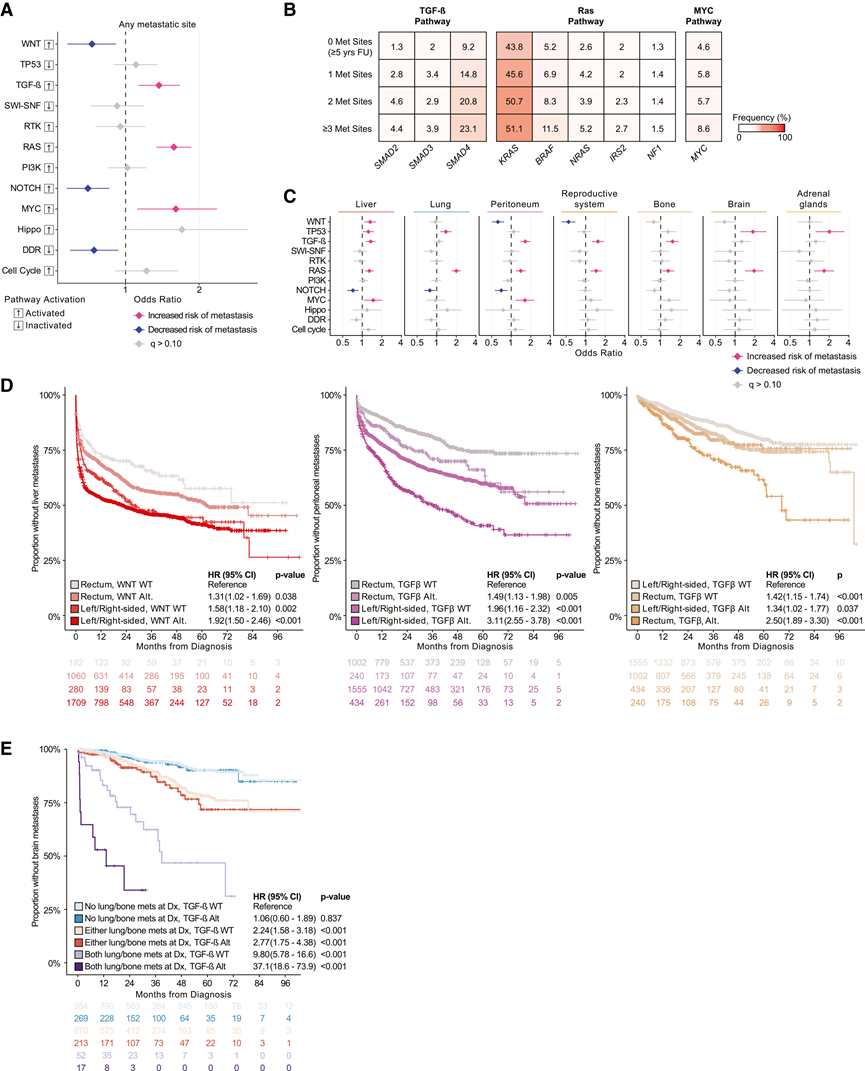
图6. 器官特异性转移风险评分。
(A) 构建多变量Cox回归模型,以原发肿瘤是否存在基因改变以及原发肿瘤位置作为协变量,评估转移(met)至任何部位的风险。(B) 原发肿瘤中所示改变的发生频率,按转移诊断时转移灶的数量划分。(C) 原发肿瘤基因改变与转移至特定器官的风险。(D) 野生型(WT)或改变型(Alt)通路以及原发肿瘤位置对转移时间的影响示例。(E) 转移性 CRC 患者的脑转移无进展生存期与肺转移和骨转移以及肿瘤 TGF-β 通路改变的关系。
+ + + + + + + + + + +
结 论
本研究对超过7000例测序的CRC样本进行了整合的临床和基因组分析,以全面表征CRC的遗传驱动因素和转移倾向。基因组进化改变,例如克隆突变和致癌突变等位基因失衡,会选择性地增强复发性致癌改变的影响。本研究确定了器官特异性转移的相对时间,显示微卫星稳定型CRC的转移进展呈序贯性,脑转移和肾上腺转移为晚期事件;转移部位聚集,例如肺、骨和脑转移;以及增强或降低各转移部位风险的基因组事件,其中WNT通路激活总体上具有保护作用,而RAS通路激活则增加扩散至所有转移部位的风险。数据表明,虽然CRC具有异质性,但基因组进化会增强复发性改变的影响,整合肿瘤原发部位和基因组信息可用于预测器官特异性转移风险。
+ + + + +